来源:Identification and functional validation of a beta-amyrin synthase for Clinopodiside A biosynthesis in medicinal plant Clinopodium chinense(Plant Science)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
风轮菜(Clinopodium chinense)是中药"断血流"的植物基原,其药理活性主要归因于齐墩果烷型三萜皂苷——风轮菜苷A。β-香树脂醇合酶(bAS)催化齐墩果烷型三萜生物合成的第一个关键步骤,但风轮菜苷A的生物合成遗传基础尚不清楚。本研究通过对风轮菜十个组织及发育阶段的转录组进行WGCNA分析,鉴定到一个与风轮菜苷A积累高度相关的候选bAS基因CcbAS,并通过亚细胞定位、瞬时过表达和VIGS沉默三种策略完成了功能验证。
研究背景
风轮菜为唇形科植物,其干燥地上部分作为中药"断血流"入药,收载于《中国药典》(2025年版),以风轮菜苷A(Buddlejasaponin IVb)作为质量控制指标成分。现代药理学研究表明,风轮菜具有止血、抗炎、抗菌、抗病毒及促进子宫收缩等多种药理活性,这些活性主要归因于风轮菜苷A。已有研究证实含风轮菜苷A的复合止血海绵具有显著的促凝血活性,可明显缩短凝血时间;体外血小板聚集实验、TT实验及体内止血实验也进一步验证了其快速促凝作用。在抗炎机制方面,风轮菜苷A与芹菜素协同调节炎症信号通路及促性腺激素释放激素受体通路。
尽管风轮菜苷A的药理价值已获广泛认可,但其生物合成途径在很大程度上仍未被阐明。bAS催化2,3-氧化鲨烯环化生成β-香树脂醇,这是齐墩果烷型三萜皂苷生物合成的首个关键步骤。然而,在非模式药用植物中,风轮菜苷A生物合成的遗传基础研究极为有限。传统的差异表达分析往往产生数百个差异表达基因,难以优先筛选候选基因进行功能表征。加权基因共表达网络分析(WGCNA)通过整合代谢物数据与转录组数据,可将候选基因范围从数千个缩小至可控数量,已在多种非模式药用植物中成功应用。
研究方法
2.1 植物材料与生长条件
风轮菜植物材料种植于中国安徽省霍山县(31.03°N,115.52°E),由安徽农业大学袁艺教授进行分类学鉴定。6月和7月采集根、茎、叶,9月采集根、茎、叶、花。每种组织类型采集三个独立的生物学重复。新鲜组织经液氮速冻后于−80 °C保存至总RNA提取,同时取相同材料的部分样品干燥用于风轮菜苷A定量。收获的种子干燥后保存用于后续实验。风轮菜苷A标准品(Buddlejasaponin IVb;CAS 152580–79–5)购自上海源叶生物科技有限公司(中国上海)。
【数据】种植地点:安徽霍山(31.03°N,115.52°E);采集时间:6月、7月、9月;生物学重复:3个;保存温度:−80 °C;标准品CAS号:152580–79–5
2.2 风轮菜中风轮菜苷A的提取与测定
取2.0 g样品,加入40 mL甲醇超声提取30 min。提取液于4 °C放置12 h,再超声处理30 min。过滤后,滤液浓缩至近干,然后经DM301大孔树脂富集纯化。使用配备Phenomenex C18柱(5 μm,110 Å,250 × 4.6 mm)的高效液相色谱(HPLC)系统(Waters)对风轮菜苷A进行定量。流动相为甲醇/水(80:20,v/v),流速0.8 mL·min⁻¹。柱温维持在30 °C,检测波长为250 nm。校准曲线制备:将5.0 mg风轮菜苷A标准品用流动相溶解于5 mL容量瓶中,然后梯度稀释至0.50、0.25、0.125、0.050和0.025 mg·mL⁻¹。每个标准溶液进样20 μL,记录峰面积,以峰面积(Y)对浓度(X,mg·mL⁻¹)作图构建校准曲线。
【数据】样品量:2.0 g;提取溶剂:40 mL甲醇;超声时间:30 min;静置条件:4 °C、12 h;二次超声:30 min;色谱柱:Phenomenex C18(5 μm,110 Å,250 × 4.6 mm);流动相:甲醇/水(80:20,v/v);流速:0.8 mL·min⁻¹;柱温:30 °C;检测波长:250 nm;标准品浓度梯度:0.50、0.25、0.125、0.050、0.025 mg·mL⁻¹;进样量:20 μL
2.3 转录组测序与共表达分析筛选候选基因
使用FastPure Universal Plant Total RNA Isolation Kit分别从风轮菜各组织的每个生物学重复中提取总RNA。RNA浓度、纯度和完整性通过NanoDrop 2000和琼脂糖凝胶电泳评估。将三个生物学重复的等量RNA混合后进行文库构建和测序。十个混合文库在DNBSEQ-T7平台上测序。原始reads用SOAPnuke(v2.1.9)进行质量过滤以获得clean data,随后使用HISAT2(v2.2.1)比对到风轮菜参考基因组(未发表)。使用StringTie(v3.0.3)对每个样本进行转录本重构。将所有样本的组装结果合并,生成最终统一的转录本和基因集。基因表达水平使用StringTie(v3.0.3)基于reads比对进行定量,并以每百万转录本(TPM)归一化。参照先前在茶树和洋甘菊中描述的分析方法,使用WGCNA构建基因共表达网络。归一化的基因表达矩阵首先经过过滤,去除在十个样本中方差为零的基因和缺失值超过10%的基因。使用pickSoftThreshold函数测试1至10和12至20的软阈值功率,以近似无标度网络拓扑。基于无标度拓扑标准,选择软阈值功率20用于后续网络构建。使用blockwiseModules函数构建无符号共表达网络,参数如下:TOMType = "unsigned",minModuleSize = 20,reassignThreshold = 0,mergeCutHeight = 0.4,pamRespectsDendro = FALSE。计算每个模块的模块特征基因,并使用Pearson相关分析将其与十个组织中的风轮菜苷A含量进行关联。Pearson相关系数 > 0.8且P < 0.001的模块被认为与风轮菜苷A积累显著相关。
【数据】测序平台:DNBSEQ-T7;软件版本:SOAPnuke v2.1.9、HISAT2 v2.2.1、StringTie v3.0.3;软阈值功率:20;minModuleSize:20;mergeCutHeight:0.4;相关系数阈值:r > 0.8,P < 0.001;缺失值过滤阈值:>10%
2.4 OSC鉴定与系统发育分析
为优先筛选参与风轮菜苷A生物合成的候选OSC基因,对风轮菜苷A共表达模块中鉴定到的OSC基因进行进一步分析。基于已表征的拟南芥和人参OSC基因鉴定风轮菜中的推定OSC基因。序列同一性 > 35%且查询覆盖率 > 50%的序列被视为候选OSC。采用相同方法,在唇形科另外四个物种——细风轮菜、南丹参、黄芩和半枝莲——中也鉴定了OSC基因。为阐明OSC基因的进化关系,使用MUSCLE(v5.3)以默认参数对来自人参、拟南芥及本研究中鉴定到的OSC蛋白序列进行多序列比对。使用trimAl(v1.5.0)以默认设置进行序列修剪。随后使用IQ-TREE(v2.3.6)中的MixtureFinder选择最优替代模型,并以1000次bootstrap迭代推断最大似然系统发育树。最终使用Interactive Tree of Life(iTOL)在线资源(版本6)进行树的可视化和优化。
【数据】序列同一性阈值:>35%;查询覆盖率阈值:>50%;软件版本:MUSCLE v5.3、trimAl v1.5.0、IQ-TREE v2.3.6;bootstrap迭代:1000次;iTOL版本:6
2.5 风轮菜中CcbAS基因的克隆与分析
使用逆转录试剂盒(iScience)按照制造商说明将风轮菜总RNA逆转录为cDNA。基于CcbAS基因序列设计CcbAS基因特异性引物(表S1),使用Hieff Canace Plus高保真DNA聚合酶通过PCR扩增编码区。PCR产物使用Mei5bio HiPer pTOPO-Blunt克隆试剂盒(MF021)连接,转化到DH5α中,筛选阳性克隆后由通用生物(安徽,中国)进行测序。使用ProtParam计算CcbAS蛋白的理化性质(氨基酸长度、理论等电点和相对分子质量)。使用DNAMAN 9.0对CcbAS与来自人参、紫苏和丹参的bAS进行多序列比对,以鉴定保守结构域。
【数据】逆转录试剂盒:iScience;高保真聚合酶:Hieff Canace Plus;克隆试剂盒:Mei5bio HiPer pTOPO-Blunt(MF021);感受态细胞:DH5α;比对软件:DNAMAN 9.0;理化性质分析工具:ProtParam
2.6 实时荧光定量PCR(qPCR)分析
使用ChamQ SYBR Color qPCR Master Mix(Vazyme,Q411-02)在CFX06 Real-Time System(Bio-Rad)上进行qPCR。每个20 μL反应体系包含10 μL 2 × Master Mix、各0.5 μmol·L⁻¹引物、2 μL稀释cDNA和无核酸酶水。循环程序为:95 °C 30 s,随后40个循环的95 °C 10 s和60 °C 30 s。进行熔解曲线分析以验证扩增特异性。引物序列列于补充表S1。每个样本进行三个技术重复。相对表达量使用2−ΔΔCt方法计算,以GAPDH为内参基因。数据以三个独立生物学重复的平均值 ± SD表示。使用GraphPad Prism 9.3进行统计分析。
【数据】反应体系:20 μL;Master Mix:10 μL;引物浓度:0.5 μmol·L⁻¹;cDNA用量:2 μL;预变性:95 °C、30 s;循环条件:95 °C、10 s,60 °C、30 s,40个循环;内参基因:GAPDH;技术重复:3个;生物学重复:3个;分析方法:2−ΔΔCt;统计软件:GraphPad Prism 9.3
2.7 CcbAS的亚细胞定位
使用在线网站(http://www.csbio.sjtu.edu.cn/cgi-bin/PlantmPLoc.cgi)预测CcbAS的亚细胞定位。将CcbAS的编码序列与pCAMBIA1305-GFP载体中的GFP融合,生成重组质粒。含有拟南芥PIP2A质膜信号蛋白片段与红色荧光蛋白mCherry ORF融合的pBI221-PM-mCherry载体用作膜定位对照标记。将重组载体和对照载体分别转化到农杆菌中,注射烟草叶片表皮细胞,培养后在激光共聚焦显微镜下观察GFP和mCherry荧光信号。
【数据】载体:pCAMBIA1305-GFP、pBI221-PM-mCherry;膜标记蛋白:拟南芥PIP2A;荧光蛋白:GFP、mCherry;观察对象:烟草叶片表皮细胞
研究结果
3.1 风轮菜中风轮菜苷A的测定
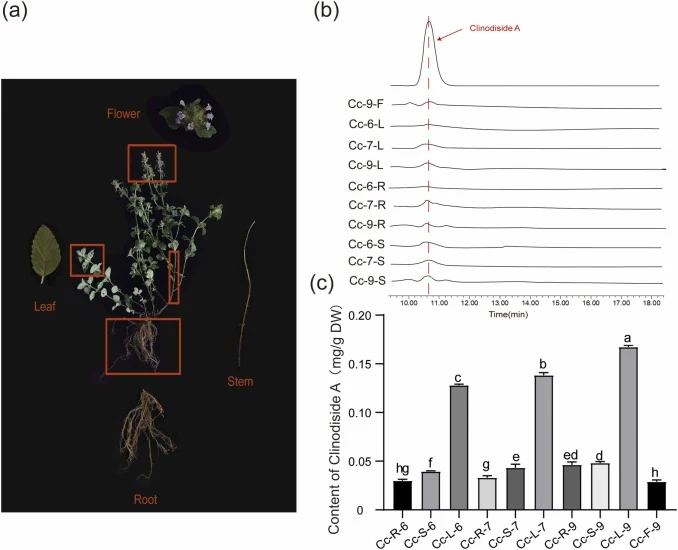
采用HPLC测定了十个风轮菜样品中的风轮菜苷A含量(Cc−6-R、Cc−6-S和Cc−6-L;Cc−7-R、Cc−7-S和Cc−7-L;Cc−9-R、Cc−9-S、Cc−9-L和Cc−9-F)。以浓度X(mg·mL⁻¹)为横坐标、峰面积Y为纵坐标进行校准,得到线性回归方程Y = 2.0 × 10⁷X + 44,747,r² = 0.9999。结果表明,根、茎和花中的风轮菜苷A含量无显著差异(p > 0.05),而叶片中含量最高。9月采集的叶片中含量最高(0.1484 mg/g),其次为7月采集的叶片(0.0866 mg·g⁻¹)和6月采集的叶片(0.0692 mg·g⁻¹)。含量最低的为9月采集的花。这些结果表明,叶片是风轮菜苷A的主要积累部位,其含量呈现发育动态变化,在9月达到峰值(图2)。
【数据】线性回归方程:Y = 2.0 × 10⁷X + 44,747;r² = 0.9999;9月叶片含量:0.1484 mg/g;7月叶片含量:0.0866 mg·g⁻¹;6月叶片含量:0.0692 mg·g⁻¹;根茎花差异:p > 0.05
3.2 风轮菜的RNA-seq与共表达分析
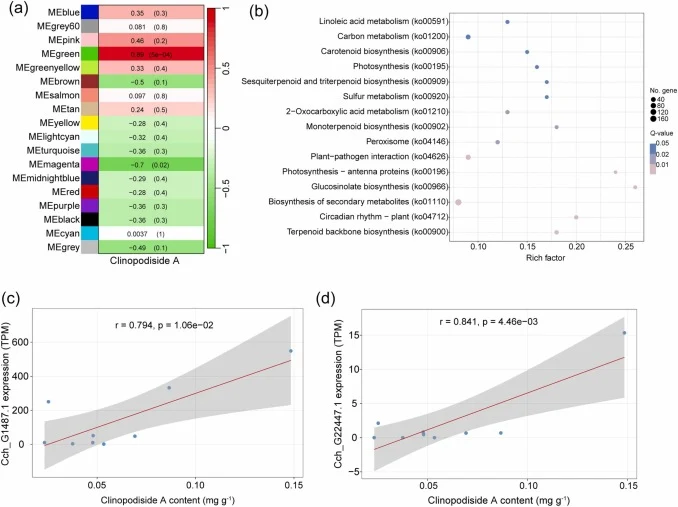
对风轮菜十个发育阶段和组织进行了RNA-seq,产生79.22 Gb clean data(表S2)。转录本组装获得33,998个基因和36,866个转录本,平均转录本长度为1830 nt(表S3)。功能注释将32,231个基因(97.74%)分配至已知数据库,主要GO条目包括细胞过程、细胞解剖实体和催化活性(图S1)。表达谱显示,根、茎、叶和花中分别至少有33,322个(98.01%)、33,421个(98.30%)、33,235个(97.75%)和33,134个(97.46%)基因表达(表S4)。为鉴定与风轮菜苷A积累相关的基因,从表达数据构建了基因共表达模块,并将模块特征基因与代谢物水平进行关联。共定义了18个模块,其中MEgreen与风轮菜苷A含量呈强正相关(Pearson r = 0.89,p < 0.001,图3a)。MEgreen包含1868个基因,显著富集于硫代葡萄糖苷生物合成(ko00966)、倍半萜和三萜生物合成(ko00909)以及萜类骨架生物合成(ko00900)通路(Q < 0.05;图3b)。该模块包含两个OSC,Cch_G1487和Cch_G22447.1,其中Cch_G1487在各组织中的转录丰度远高于另一个。两个OSC的表达模式均与风轮菜苷A积累高度正相关(p < 0.01)(图3c,d)。
【数据】clean data总量:79.22 Gb;基因数:33,998;转录本数:36,866;平均转录本长度:1830 nt;功能注释率:97.74%(32,231个基因);根部表达基因:33,322(98.01%);茎部:33,421(98.30%);叶片:33,235(97.75%);花:33,134(97.46%);模块数:18;MEgreen与风轮菜苷A相关系数:r = 0.89,p < 0.001;MEgreen基因数:1868;富集通路Q值:<0.05;OSC与风轮菜苷A相关性:p < 0.01
3.3 CcbAS基因的鉴定、克隆与分析
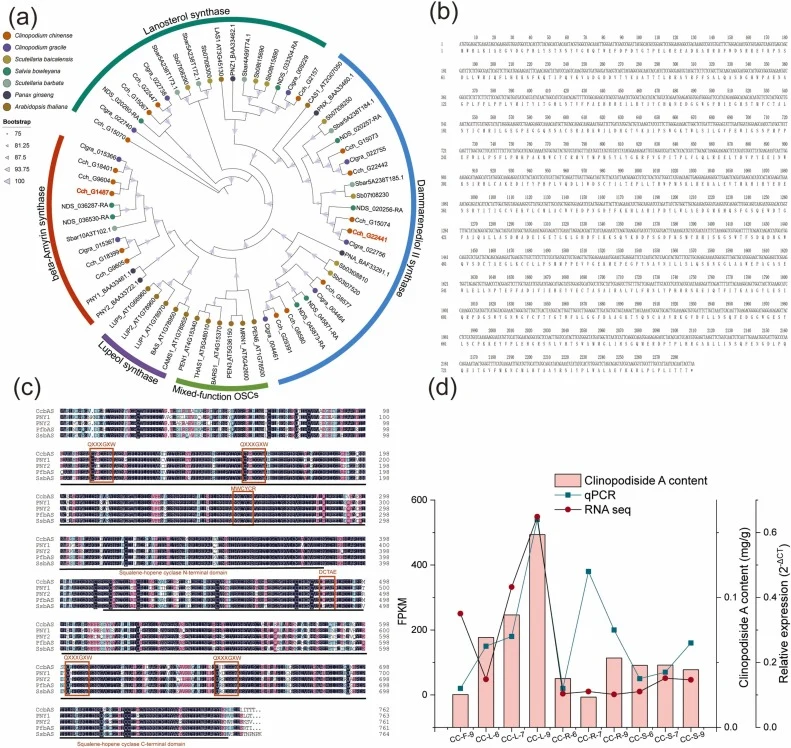
为系统鉴定风轮菜中的OSC基因并研究其与其他唇形科物种OSC的进化关系,对风轮菜及另外四种唇形科植物的OSC基因家族进行了全面表征。结果显示,风轮菜含有16个OSC基因,多于细风轮菜(9个基因)、南丹参(8个基因)、黄芩(8个基因)和半枝莲(6个基因)(表S5)。此外,风轮菜中所有16个OSC蛋白均含有完整的N端结构域(PF13249)和C端结构域(PF13243),进一步证实了这些OSC基因的完整性(表S6)。结合来自人参和拟南芥的功能表征OSC进行的系统发育分析显示,来自风轮菜的5个OSC、细风轮菜的2个、南丹参的2个和半枝莲的1个聚集在bAS分支相关的进化支中(图4a)。这一进化模式进一步表明bAS在唇形科中广泛存在,提示其在进化过程中具有高度的功能保守性。其中,Cch_G1487通过WGCNA显示与风轮菜苷A积累呈强正相关,因此被选用于进一步的功能表征。克隆的Cch_G1487 CDS全长2289 bp,编码763个氨基酸的蛋白,命名为CcbAS(图4b)。我们发现CcbAS与bASs具有高度相似性:与两个人参bAS(AB009030.1、AB014057.1)具有87.96%的序列相似性,与紫苏bAS(KAH6756583.1)和丹参bAS(XP_042046349.1)分别具有91.34%和89.8%的相似性。此外,CcbAS氨基酸序列保守区域的比对分析(图4c)显示,CcbAS具有OSC酶的典型保守区域。CcbAS不仅含有DCTAE基序(被认为是底物结合基序,在真核OSC中高度保守),还具有MWCYCR基序(bAS的特征性基序)。此外,它拥有4个QW基序,可能起到加强酶结构稳定性和稳定碳正离子中间体的作用。因此,这些结果表明CcbAS在序列和系统发育水平上均是一个高度保守的bAS。
【数据】风轮菜OSC基因数:16;细风轮菜:9;南丹参:8;黄芩:8;半枝莲:6;结构域:PF13249、PF13243;CcbAS CDS长度:2289 bp;编码氨基酸:763 aa;与人参bAS相似性:87.96%;与紫苏bAS相似性:91.34%;与丹参bAS相似性:89.8%;保守基序:DCTAE、MWCYCR、4个QW基序
3.4 CcbAS的组织特异性表达
基于克隆的CcbAS序列设计引物,以GAPDH为内参基因(表S1)。标准曲线分析显示,GAPDH的扩增效率为99.2%,CcbAS为105.5%,线性良好(R²分别为0.992和0.993)。对风轮菜不同发育阶段和组织的qPCR分析揭示了明显的组织特异性表达模式:CcbAS基因表达水平在Cc-L−9中最高,在Cc-F−9中最低。为评估CcbAS表达与风轮菜苷A积累之间的关系,使用十个样品进行了相关性分析。风轮菜苷A含量与qPCR测定的CcbAS表达呈显著正相关(r = 0.656,p < 0.05),与基于RNA-seq数据的CcbAS转录本丰度(FPKM)也呈显著正相关(r = 0.798,p < 0.01),表明CcbAS表达与风轮菜苷A含量之间存在正相关关系(图4d)。
【数据】GAPDH扩增效率:99.2%;CcbAS扩增效率:105.5%;R²:0.992(GAPDH)、0.993(CcbAS);最高表达组织:Cc-L−9;最低表达组织:Cc-F−9;qPCR相关系数:r = 0.656,p < 0.05;RNA-seq相关系数:r = 0.798,p < 0.01
3.5 CcbAS的亚细胞定位
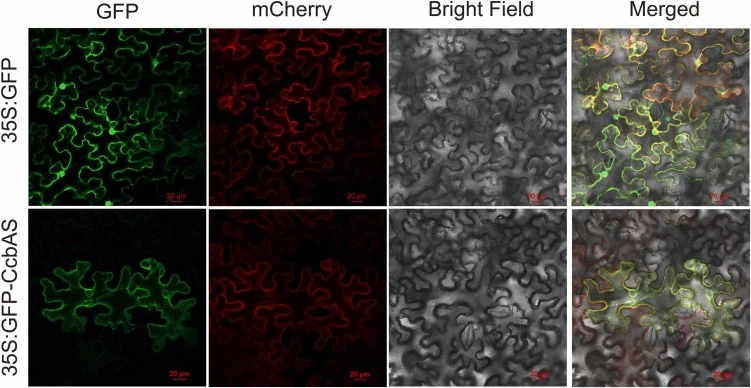
在烟草叶片表皮细胞中进行了亚细胞定位分析。结果显示,在表达pCAMBIA1305-CcbAS-GFP的叶片中,GFP荧光主要分布在细胞质中,并与质膜标记mCherry显示明显的重叠。相比之下,在表达pCAMBIA1305-GFP的对照叶片中,GFP荧光广泛分布于整个细胞,包括质膜、细胞质和细胞核。这些观察结果表明,CcbAS主要定位于细胞质并与质膜相关联(图5)。
【数据】定位结果:细胞质和质膜;对照载体:pCAMBIA1305-GFP;膜标记:mCherry;观察细胞:烟草叶片表皮细胞
3.6 农杆菌介导的风轮菜中CcbAS瞬时过表达
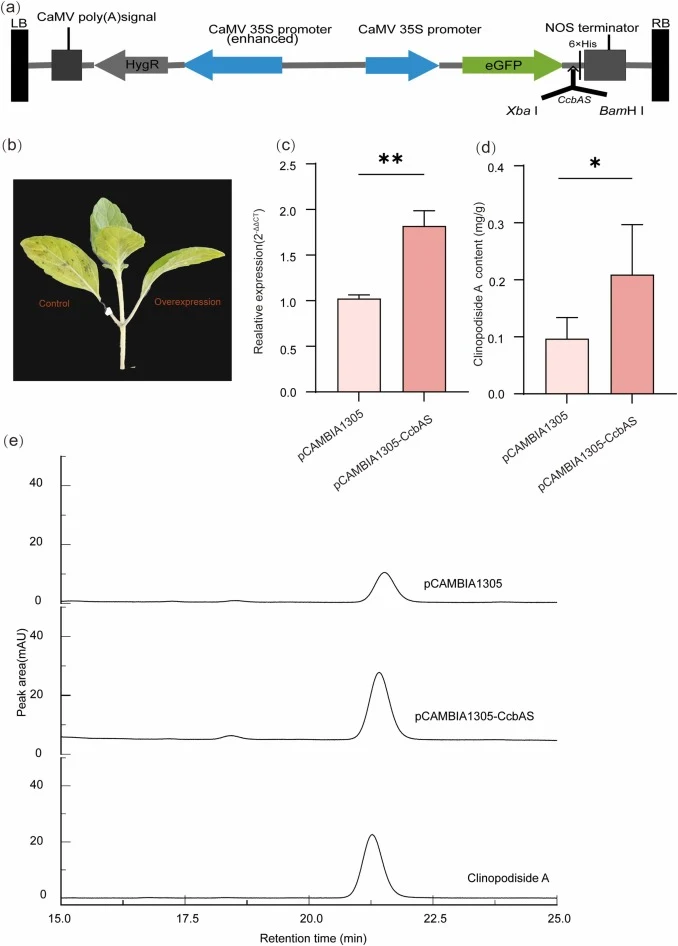
为研究CcbAS的功能,在风轮菜中建立了农杆菌介导的瞬时表达系统。将重组构建体pCAMBIA1305-CcbAS导入根癌农杆菌GV3101并浸润风轮菜叶片,以空载体pCAMBIA1305作为对照。通过优化菌悬液密度、浸润条件和光/暗孵育,建立了最佳瞬时表达系统:用OD600 = 0.8的农杆菌悬浮液注射浸润叶片,随后暗培养48 h,再光照培养72 h。浸润后第5天取样。通过qPCR测定CcbAS基因表达水平,通过HPLC定量风轮菜苷A含量。如图6所示,pCAMBIA1305-CcbAS植株中CcbAS基因表达水平比对照高1.82倍,风轮菜苷A含量比对照高2.18倍,表明CcbAS是参与风轮菜苷A生物合成的关键上游酶。在瞬时表达条件下,未检测到替代三萜骨架或其他皂苷的明显积累,表明CcbAS作为主要的β-香树脂醇合酶发挥作用。
【数据】农杆菌菌株:GV3101;菌悬液OD600:0.8;暗培养:48 h;光照培养:72 h;取样时间:浸润后5天;CcbAS表达倍数:1.82倍;风轮菜苷A含量倍数:2.18倍
3.7 VIGS沉默验证CcbAS功能
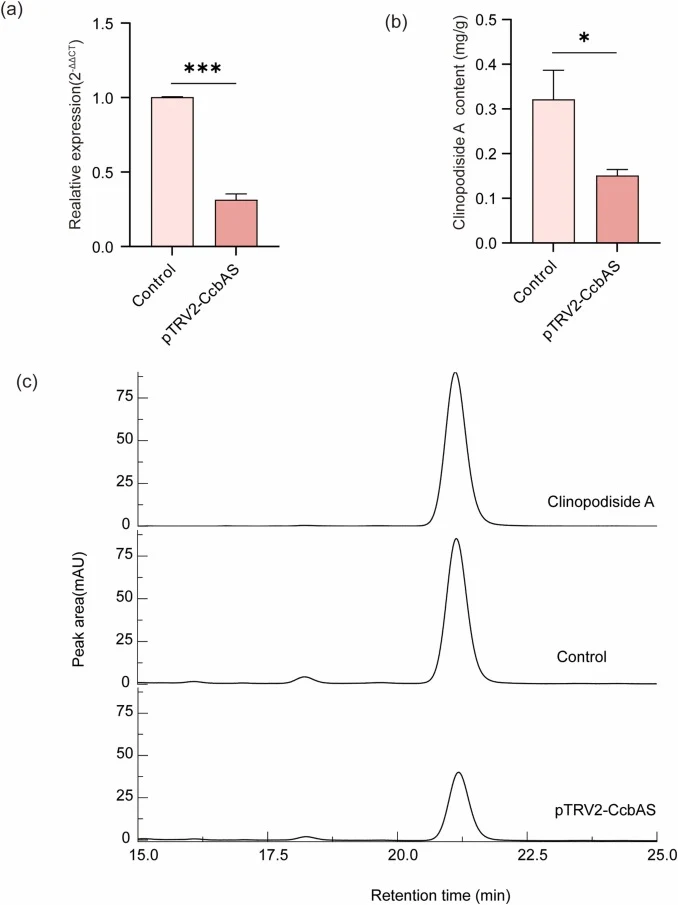
为进一步验证CcbAS在风轮菜苷A生物合成中的功能,采用病毒诱导基因沉默(VIGS)技术在风轮菜叶片中沉默CcbAS。qPCR分析显示,与对照相比,CcbAS沉默植株中CcbAS表达显著降低(图7a)。相应地,CcbAS沉默植株中风轮菜苷A含量比对照降低了53.06%(图7b)。HPLC离子色谱图进一步证实了风轮菜苷A含量的降低(图7c)。这些结果从反向遗传学角度进一步证实了CcbAS在风轮菜苷A生物合成中的关键作用。
【数据】沉默效率:CcbAS表达显著降低;风轮菜苷A含量降低:53.06%;检测方法:qPCR、HPLC
讨论与解读
风轮菜长期用于治疗出血性疾病,其止血和抗炎特性主要归因于风轮菜苷A。尽管其药理价值已获认可,但风轮菜苷A的生物合成途径在很大程度上仍未明确。WGCNA已成为鉴定非模式药用植物候选生物合成基因的有力工具。传统方法依赖差异表达分析,往往产生数百个差异表达基因,难以优先筛选候选基因进行功能表征。本研究将WGCNA应用于风轮菜十个组织和发育阶段的转录组数据。与传统的成对比较不同,WGCNA鉴定出单个模块(MEgreen,r = 0.89,p < 0.001),仅包含1868个基因,显著富集于风轮菜苷A生物合成相关通路,从中快速锁定CcbAS为顶级候选基因。虽然下游酶的功能验证仍在进行中,但当前数据为理解上游生物合成步骤提供了基础,并指导未来研究阐明完整途径。这种整合方法通过整合代谢物数据高效过滤候选基因,将筛选库从数千个减少到可控数量。
本研究通过WGCNA策略从非模式药用植物风轮菜中成功鉴定并功能验证了bAS基因CcbAS。方法上的亮点在于:针对风轮菜缺乏稳定遗传转化体系的瓶颈,建立了瞬时过表达和VIGS两种互补的农杆菌介导快速验证平台,将功能验证周期大幅缩短。瞬时过表达使风轮菜苷A含量提升2.18倍,VIGS沉默使其降低53.06%,正反向验证相互印证,证据链完整。局限在于:仅验证了上游首个关键酶,下游修饰酶(如糖基转移酶、细胞色素P450)尚未鉴定;瞬时表达系统虽快速但无法实现稳定遗传改良。未来若能将CcbAS与下游候选基因共表达于微生物底盘或稳定转化风轮菜,有望实现风轮菜苷A的异源合成或含量提升。
参考来源
期刊:Plant Science, 2026
DOI: 10.1016/j.plantsci.2026.113314
DOI: 10.1016/j.plantsci.2026.113314