来源:CsBADH-mediated glycine betaine biosynthesis confers drought tolerance in tea plants(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
干旱胁迫严重制约全球茶叶生产。本研究以三种茶树品种为材料,发现外源喷施甘氨酸甜菜碱(GB)能显著提升茶树抗旱性,且对干旱敏感品种的效果远强于耐旱品种。通过全基因组ALDH家族分析,研究者鉴定出CsBADH是茶树中唯一具有功能的甜菜碱醛脱氢酶,并经重组酶活性实验、异源过表达和茶树瞬时沉默等多层次验证了其功能。重要的是,外源GB处理不影响茶叶儿茶素品质指数和挥发性风味。该研究为茶园抗旱提供了兼具安全性与品质保障的实用策略。
研究背景
干旱是植物因长期降水不足或土壤水分亏缺而遭受的非生物胁迫,会导致水势下降和内部水分亏缺。这种胁迫引发形态、生化、生理和分子层面的系列变化,损害光合作用、蒸腾和养分吸收,最终降低生长量、生物量积累和作物产量。干旱可发生在植物生长的任何阶段,降低植物生物量的产量和品质,从而对粮食安全产生不利影响。2010至2020年间,全球因干旱造成的作物产量损失估计约300亿美元。
茶树(Camellia sinensis (L.) O. Kuntze)是全球广泛消费的饮品,富含儿茶素、咖啡因等次生代谢物,具有独特风味和健康功效。然而,依赖加工鲜叶的茶叶生产受到干旱胁迫的严重制约。在水分亏缺下,茶叶逐渐卷曲、黄化并出现坏死斑,常最终导致干枯、落叶和枝条回枯,严重时植株死亡。此类干旱损伤给全球产茶区造成了重大经济损失。典型案例如2017年南京干旱(减产30–40%)和2019年江西降水异常事件。
研究方法
2.1 植物材料与生长条件
茶树品种'信阳10'、'龙井43'和'白叶1号'(Camellia sinensis var. sinensis)在青岛农业大学可控环境 chambers 中培养。一年生茶苗维持于25°C/23°C(昼/夜)、60%相对湿度、800 μmol·m⁻²·s⁻¹光合光子通量密度(PPFD)和16小时光周期条件下。拟南芥Col−0和烟草'G28'(Nicotiana tabacum)在相同条件下生长以进行比较分析。
【数据】温度:25°C/23°C(昼/夜);相对湿度:60%;光照强度:800 μmol·m⁻²·s⁻¹ PPFD;光周期:16 h;茶树品种:'信阳10'、'龙井43'、'白叶1号';拟南芥生态型:Col−0;烟草品种:'G28'
2.2 样品采集方案
采摘茶苗一芽二叶用于采样,用于后续基因表达检测、生理指标测定和代谢物测定。拟南芥取样时,从30天龄幼苗中收获全部地上叶片组织。烟草取样时,从90天龄植株中采集发育位置相当的幼叶(具体为从顶芽向下第三和第四片叶)。所有样品立即在液氮中速冻,并在−80°C保存至生化分析前。
【数据】茶树取样部位:一芽二叶;拟南芥取样:30天龄幼苗地上叶片组织;烟草取样:90天龄植株顶芽向下第3、4片叶;保存温度:−80°C
研究结果
4.1 外源GB增强茶树干旱耐受性
为确定外源GB施用是否能缓解茶树干旱胁迫,我们在受控干旱条件下研究了其效应。干旱暴露后,GB处理植株的叶片损伤显著轻于水喷施对照(图1)。GB处理植株维持了展开且健康的叶片外观,而对照组尽管接受了水喷施,仍出现明显的叶片卷曲和坏死——这是典型的干旱胁迫症状。品种间干旱损伤严重程度差异显著,按以下顺序排列:'白叶1号'(最敏感)> '龙井43'(中等)> '信阳10'(最耐受)。
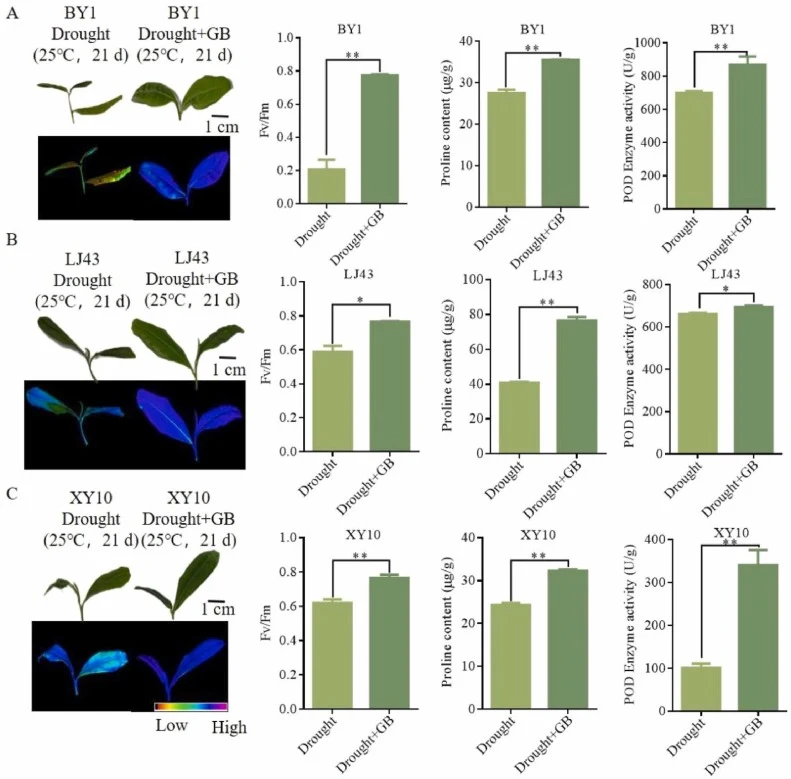
生理测定证实了GB的保护效应,其中在干旱敏感品种'白叶1号'中观察到的改善最为显著。在该品种中,GB处理使光合效率Fv/Fm从0.206提升至0.774(增加3.8倍),脯氨酸含量从27.6提升至35.5 μg/g(增加29%),过氧化物酶(POD)活性从700.6提升至868.7 U/g(增加24%)(图1A-C)。尽管'龙井43'和'信阳10'在这些参数上也表现出显著改善,但GB诱导的增强幅度在更敏感的品种中始终更大。这些结果表明,外源GB施用显著增强了茶树抗旱性,在'白叶1号'等干旱敏感品种中效果尤为突出。
【数据】品种:'白叶1号'、'龙井43'、'信阳10';Fv/Fm:0.206→0.774(3.8倍);脯氨酸:27.6→35.5 μg/g(+29%);POD活性:700.6→868.7 U/g(+24%);干旱敏感性排序:'白叶1号' > '龙井43' > '信阳10'
4.2 茶树GB介导抗旱性的分子基础
鉴于外源GB施用显著增强了干旱耐受性,我们进一步研究了茶树内源GB生物合成途径以阐明其潜在分子机制。GB合成通过胆碱的两步酶促氧化进行,由CMO和BADH催化(图2A)。先前研究报道茶树中仅存在一个有功能的CMO基因(Li et al., 2013);然而,负责GB生物合成第二步也是限速步骤的BADH编码基因在该物种中尚未被系统鉴定。
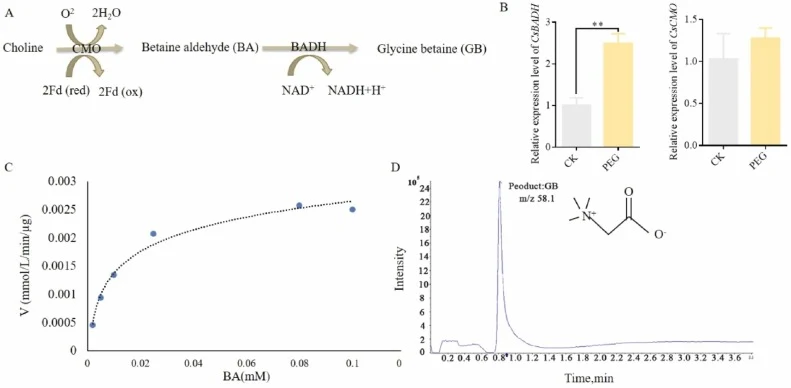
为此,我们聚焦于包含真BADH的ALDH10亚家族,并在不同茶树品种中调查了ALDH基因家族(图S4A)。ALDH基因总数因品种而异,例如耐旱品种'舒茶早'中有43个,'龙井43'中有40个,而干旱敏感品种如'黄旦'、'碧云'和'铁观音'中有56–60个(图S4B)。引人注目的是,在所有这些品种中,只有一个基因属于ALDH10亚家族并具有功能性BADH酶特征的保守十肽基序(图S5A)。结构分析进一步揭示,只有CSS0036645具有BADH活性所需的完整催化活性位点,而其他ALDH10成员缺乏酶功能的关键残基(保守十肽基序)。系统发育和共线性分析确认CSS0036645是拟南芥(AT3G48170、AT1G47920)和水稻(Os02g04690)中已确立BADH基因的直系同源基因(图S5B)。
干旱胁迫下GB途径基因的定量RT-PCR分析揭示了不同的调控模式:CsCMO表达保持稳定,而CsBADH转录本增加了1.5倍(图2B),表明BADH是干旱诱导GB生物合成的限速步骤。为验证CsBADH的酶活性,我们在大肠杆菌中异源表达该蛋白,并使用ELISA对诱导蛋白进行定量。重组CsBADH在37°C诱导时表现出催化活性,在所有测试的诱导时间点均可检测到活性(图S5C–D)。为进行酶学表征,CsBADH通过亲和层析纯化。SDS-PAGE分析确认在约60 kDa处出现单一条带(图S6),与预测分子量一致。使用纯化的重组CsBADH,我们以甜菜碱醛(BA)为底物测定了酶动力学。对含0.002–0.1 mM BA的反应混合物进行分析,通过LC-MS/MS检测确认了GB的生成。Michaelis-Menten动力学揭示BA的Km为9.06 mM(图2C-D),对应中等底物亲和力,与其他植物BADH酶相当,明确验证了CsBADH的催化功能。为探索品种特异性GB积累的调控机制,我们进一步分析了CsBADH的启动子区域并预测了推定的转录因子。启动子序列分析揭示了品种特异性顺式元件多态性,预测有47个推定转录因子(主要为Dof、TCP和MYB家族)可能调控干旱下CsBADH的表达(图S9−11)。
【数据】ALDH基因数:'舒茶早'43个、'龙井43'40个、敏感品种56–60个;CsBADH转录本增加:1.5倍;诱导温度:37°C;蛋白分子量:约60 kDa;BA浓度范围:0.002–0.1 mM;Km:9.06 mM;预测转录因子:47个(Dof、TCP、MYB家族为主)
4.3 CsBADH在异源系统中的功能验证
为验证CsBADH在抗旱中的作用,我们构建了转基因拟南芥和烟草株系。定量结果显示,转基因拟南芥株系#3、#22、#23表达水平最高(图3A和3C),而转基因烟草株系#18、#22表现出最高的CsBADH表达(图4A和4C)。可以看出,干旱胁迫后,两个转基因系统均显示出较野生型对照显著减轻的叶片萎蔫(图3B、4B),表明干旱耐受性增强。
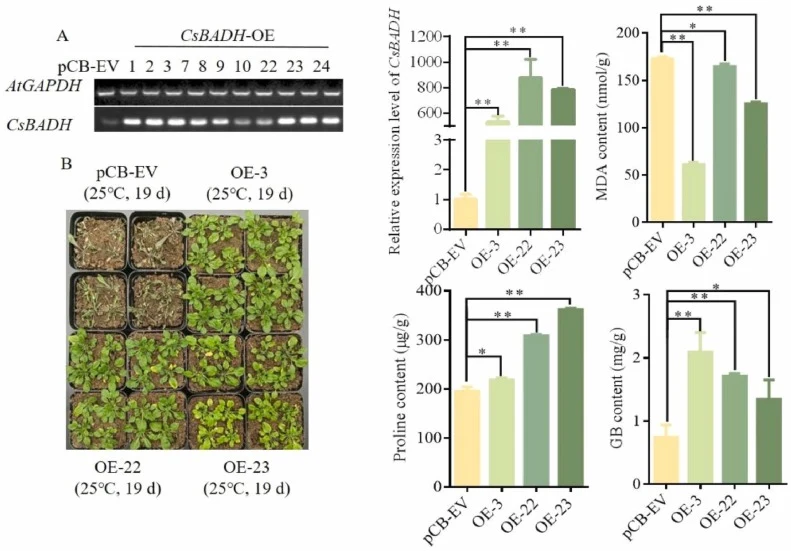
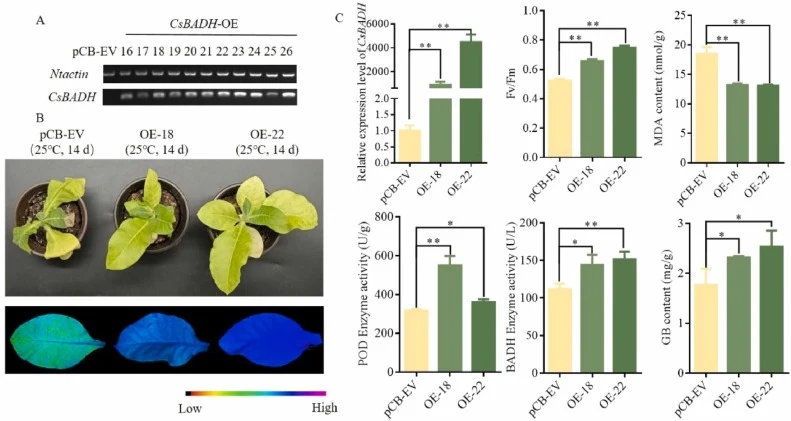
除表型结果外,还检测了植株的抗旱指数。与对照相比,转基因拟南芥的丙二醛(MDA)含量下降了32.2%,脯氨酸含量增加了68.7%,GB含量平均增至1.7 mg/g。转基因烟草的Fv/Fm平均增加了18.5%,MDA含量下降了28.8%,POD活性和BADH酶活性分别增加了43.4%和32.3%,GB含量平均增至2.42 mg/g(图3C和4C)。这些结果表明,CsBADH过表达通过减少氧化应激(MDA降低)、增强渗透保护剂合成(GB积累)和维持光合功能来减轻干旱损伤。
【数据】拟南芥高表达株系:#3、#22、#23;烟草高表达株系:#18、#22;拟南芥MDA下降32.2%、脯氨酸增加68.7%、GB平均1.7 mg/g;烟草Fv/Fm增加18.5%、MDA下降28.8%、POD增加43.4%、BADH增加32.3%、GB平均2.42 mg/g
4.4 茶树瞬时过表达与沉默验证CsBADH在干旱胁迫中的作用
为验证CsBADH增强抗旱性的能力,选择干旱敏感品种'白叶1号'进行瞬时过表达。实验组和对照组农杆菌悬浮液分别浸润'白叶1号'成熟叶片的下表面。随后通过10% PEG−6000叶面喷施和根部灌溉对植株进行渗透胁迫。结果显示,CsBADH相对表达水平在第1至第2天升高,第2天表达水平最高,上调103倍(图5A),第3天随后下降。因此,对第2天叶片进行生理指标分析。CsBADH过表达叶片较对照表现出显著减轻的干旱损伤(图5B)。
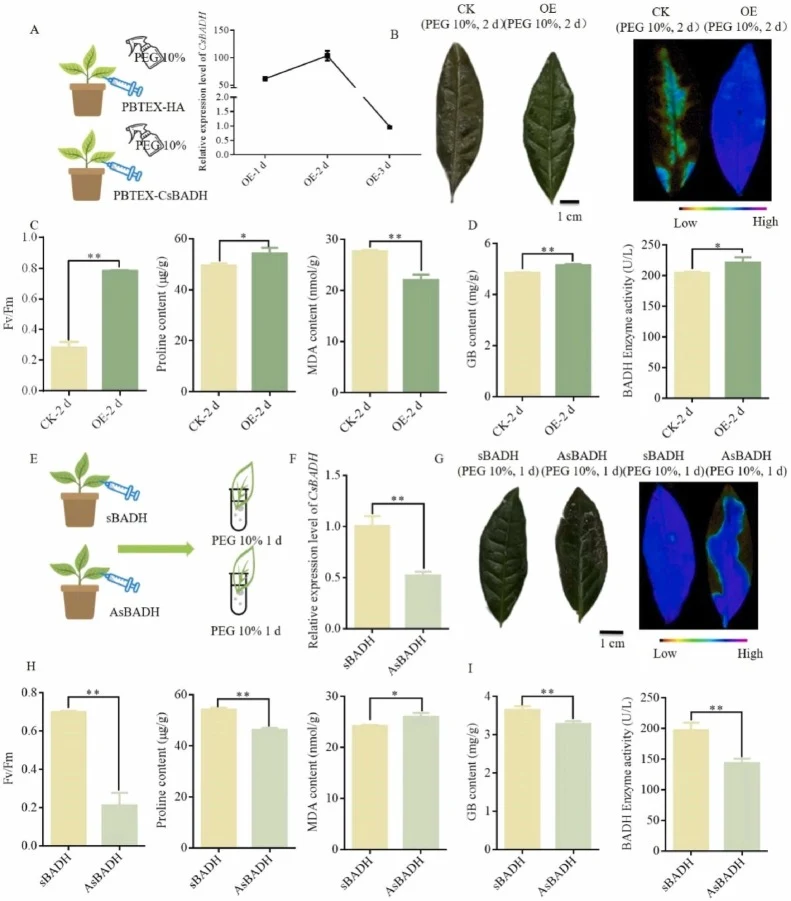
PEG处理后,过表达叶片显示:Fv/Fm提高1.8倍,脯氨酸增加9.6%,MDA下降20.5%,POD活性升高2.9倍(图5C)。此外,GB含量达到5.1 mg/g,BADH活性水平为222.2 U/L(图5D),共同证实了CsBADH在增强茶树抗旱性中的作用。为进一步验证CsBADH在GB生物合成和干旱耐受性中的功能,对耐旱品种'信阳10'进行了反义寡核苷酸沉默。将靶向CsBADH的反义寡核苷酸溶液注射到成熟叶片下表面后,叶片在10% PEG−6000中孵育24小时,然后进行基因表达分析(图5E)。定量评估显示,与正义对照叶片相比,反义处理叶片中CsBADH表达被抑制约49%(图5F)。沉默叶片表现出边缘萎蔫和坏死(图5G)。生理分析表明,相对于对照……
【数据】品种:'白叶1号'(瞬时过表达)、'信阳10'(沉默);PEG浓度:10% PEG−6000;CsBADH表达峰值:第2天,上调103倍;Fv/Fm提高1.8倍;脯氨酸增加9.6%;MDA下降20.5%;POD活性升高2.9倍;GB含量:5.1 mg/g;BADH活性:222.2 U/L;沉默效率:约49%;孵育时间:24 h
4.5 不同茶树品种抗旱性分析
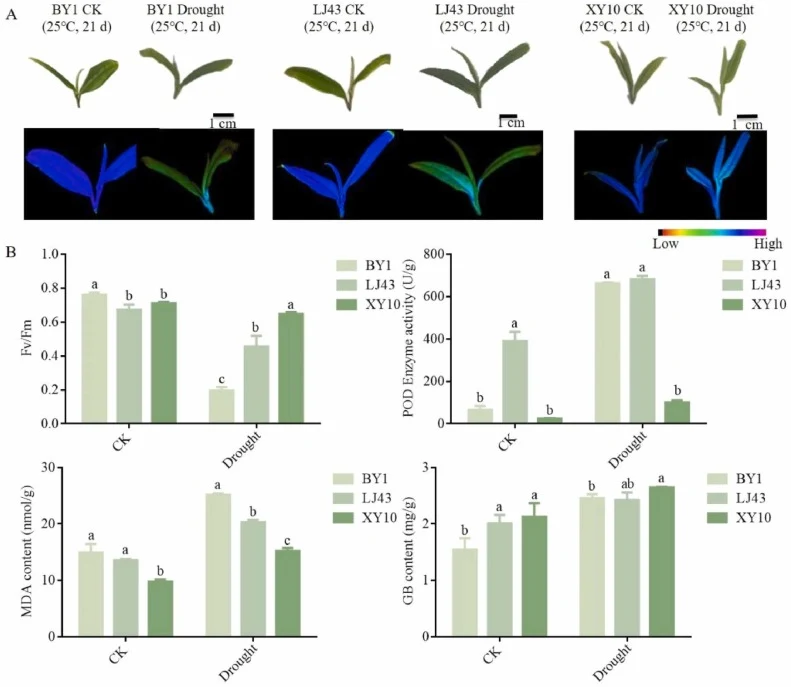
(注:原文该节内容未在节选中完整呈现,图6涉及'白叶1号'、'龙井43'和'信阳10'在干旱处理下的表型、叶绿素荧光及生理指标和GB含量比较。)
【数据】品种:'白叶1号'、'龙井43'、'信阳10';检测指标:表型、叶绿素荧光、生理指标、GB含量;原文未详述具体数值
4.6 GB处理后茶叶电子鼻分析与感官评价
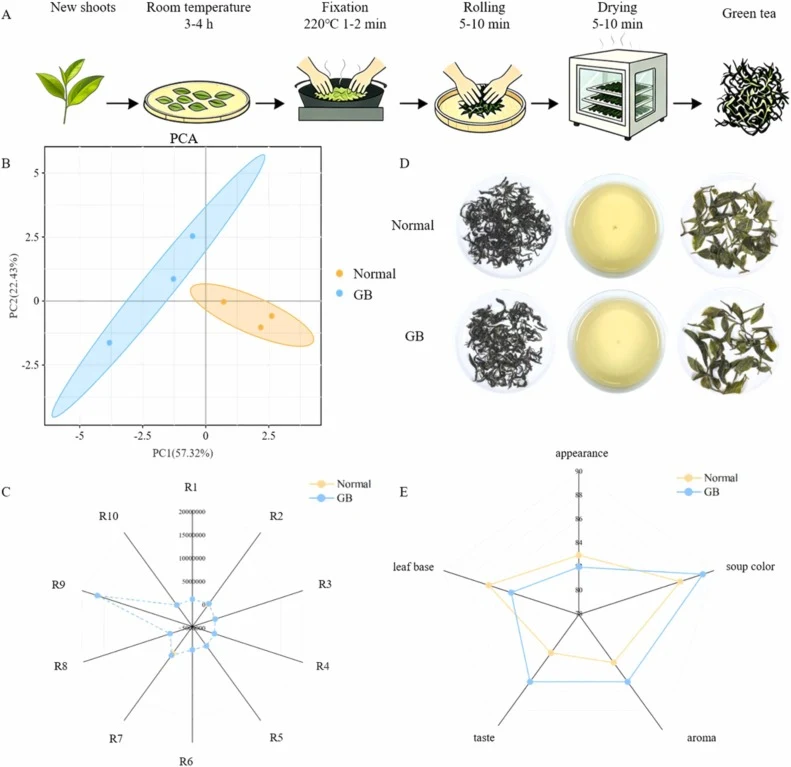
(注:原文该节内容未在节选中完整呈现,图7涉及绿茶加工流程示意图、基于10个电子鼻传感器响应值的挥发性成分PCA得分图及雷达图。摘要中提及UPLC测定显示叶面GB施用未显著改变鲜叶儿茶素品质指数(CQI),电子鼻和感官评价确认未对茶叶挥发性特征和感官品质产生不良影响。)
【数据】检测方法:UPLC、电子鼻、感官评价;传感器数量:10个;品质指标:CQI、挥发性特征、感官品质;结果:无显著不良影响;原文未详述具体数值
讨论与解读
本研究从外源GB增强不同茶树品种抗旱性的观察出发,对GB生物合成酶基因甜菜碱醛脱氢酶进行了全基因组家族分析,鉴定出独特的关键基因CsBADH。其酶功能通过体外酶活性实验得到确认。随后,异源转基因和茶树体内瞬时实验验证了该基因对干旱胁迫的响应。此外,研究者测定了不同抗旱性茶树品种的内源GB含量变化。最后,对田间干旱条件下喷施GB的茶样进行了感官评价。该研究系统揭示了GB在茶树抗旱中的核心作用,阐明了CsBADH作为GB合成关键酶的功能地位。多层次的系统研究为在田间轻度干旱条件下喷施GB以快速修复茶园干旱损伤的可行性提供了支持。研究证实,外源GB喷施有效增强了茶树抗旱性,且该效应强度在品种间差异显著:在干旱敏感品种'白叶1号'中,外源GB处理大幅提升了抗旱性,而在较耐受品种'信阳10'中增强效果较弱。
编译者解读
该研究的亮点在于将基础酶学鉴定与田间应用场景直接对接。从合成生物学视角看,CsBADH作为茶树GB合成途径中唯一的限速酶,是一个清晰的代谢工程靶点——过表达即可同步提升渗透保护剂积累和抗氧化能力。但需注意,异源系统与茶树瞬时实验的数据尚不能完全预测稳定转化茶树的长期表现。此外,外源GB喷施虽安全有效,但成本与持续性仍是茶园大规模应用的现实约束。未来若能在茶树中实现CsBADH的精准调控,或可减少对外源喷施的依赖。
参考来源
期刊:Industrial Crops and Products, 2026
作者:Yuqi Zhou
DOI:10.1016/j.indcrop.2026.124050
DOI: 10.1016/j.indcrop.2026.124050