来源:Effect of Aspergillus niger tea starter pile-fermentation on the metabolism of tea compounds(LWT)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黑曲霉是黑茶渥堆发酵中的核心优势真菌,但其发酵剂如何影响茶叶品质尚不明确。本研究以黑曲霉茶发酵剂(AF)发酵绿茶,追踪主要品质成分与非挥发性代谢物的动态变化。结果显示,AF组茶汤由橙黄转为橙红,茶多酚、儿茶素与可溶性糖下降;代谢组学表明多数代谢物水平降低,且发酵可能促进黄酮类糖基化,而升温至55°C并未改变黄酮苷含量。研究证实微生物作用是黑茶色泽形成的主导因素。
研究背景
黑茶是后发酵茶,其独特风味主要源于渥堆发酵——一种在人工控温控湿条件下由微生物驱动的固态发酵。过程中微生物种类繁多,以真菌为主,包括黑曲霉、冠突散囊菌、青霉、根霉和酵母等。其中黑曲霉被视为核心优势菌,在普洱茶、六堡茶和四川黑茶渥堆中后期持续占优。它能分泌糖苷酶、纤维素酶、α-淀粉酶、果胶酶、氧化酶和过氧化氢酶等多种胞外酶,有效降解细胞壁并催化多酚氧化聚合,为黑茶的色、味、香奠定化学基础。黑曲霉还促进黄酮类转化,通过水解、加成、氧化聚合和B环裂解转化儿茶素,并可能在特定条件下催化糖基化反应。然而,以黑曲霉茶发酵剂发酵对茶叶品质的影响机制仍不清楚。
研究方法
2.1 材料与试剂
黑曲霉菌株此前从藏茶中分离,并通过内转录间隔区(ITS)和β-微管蛋白测序确认。此外,通过高效液相色谱(HPLC)评估了该菌株的产毒能力。绿茶购自中国乐山马边文彬茶业有限公司。Folin & Ciocalteu酚试剂购自上海泰坦科技股份有限公司。茚三酮、乙醇、甲醇、磷酸氢二钠、碳酸钠、乙二胺四乙酸(EDTA)、氯化钠和蒽酮均购自国药集团化学试剂有限公司(北京,中国)。LC-MS级乙腈和甲酸分别购自Thermo(Fisher Scientific,美国)和Merck(Darmstadt,德国)。
【数据】菌株:黑曲霉(藏茶分离株);鉴定方法:ITS和β-微管蛋白测序;产毒检测:HPLC;试剂来源:Titan、Sinopharm、Thermo、Merck;原文未详述其他参数
2.2 黑曲霉茶发酵剂的制备
将保存在−40 °C的黑曲霉菌株转移至室温(25 °C),随后在无菌条件下接种到马铃薯葡萄糖琼脂(PDA)培养基上。在28 °C培养7天后,选取生长良好的黑曲霉集落,用无菌水洗脱。将孢子悬液调整至终浓度1.0 × 10⁵ CFU/mL。随后,将孢子悬液接种到灭菌的绿茶生茶中,进行固态发酵7天,获得黑曲霉茶发酵剂。
【数据】菌株:黑曲霉;保存温度:−40°C;复苏温度:25°C;培养基:PDA;培养温度:28°C;培养时间:7天;孢子浓度:1.0 × 10⁵ CFU/mL;固态发酵时间:7天
2.3 实验设计
如图S1所示,对于黑曲霉茶发酵剂发酵组(AF),将10 g绿茶生茶置于瓶中,121 °C高压灭菌30 min。随后,用无菌水将含水量调整至30%,然后向每瓶中加入0.25 g黑曲霉茶发酵剂。培养物在45 °C(AF-45)或55 °C(AF-55)下孵育。对于自然发酵组(CK),将10 g绿茶生茶调整至30%含水量,不灭菌,在45 °C下孵育。对于湿热处理组(HF),将10 g绿茶生茶在121 °C高压灭菌30 min,然后将含水量调整至30%,随后在45 °C下孵育。所有组发酵21天,在第0、7、14和21天采集样品。每个时间点制备三个重复。
【数据】AF组:10 g绿茶、121°C灭菌30 min、含水量30%、0.25 g发酵剂、45°C或55°C;CK组:10 g绿茶、含水量30%、不灭菌、45°C;HF组:10 g绿茶、121°C灭菌30 min、含水量30%、45°C;发酵时间:21天;采样时间点:0、7、14、21天;重复数:3
2.4 主要生化成分测定
水分和水浸出物含量分别按照国家标准方法GB 5009.3-2016和GB/T 8305-2013测定。总茶多酚(TP)采用Folin & Ciocalteu酚试剂在765 nm下用紫外-可见分光光度计(UV2300,菁华,上海)按GB/T 8313-2018测定。游离氨基酸(FAA)含量采用茚三酮法在570 nm下定量(GB/T 8314-2013)。总可溶性糖用80%(v/v)乙醇在50 °C提取20 min,然后用蒽酮试剂在620 nm下测定。表儿茶素(EC)、儿茶素没食子酸酯(CG)、表没食子儿茶素(EGC)、表儿茶素没食子酸酯(ECG)和表没食子儿茶素没食子酸酯(EGCG)的含量按照我们之前的研究测定(Jia et al., 2022)。所有分析均进行三次重复。
【数据】水分测定:GB 5009.3-2016;水浸出物:GB/T 8305-2013;茶多酚:765 nm、GB/T 8313-2018;游离氨基酸:570 nm、茚三酮法、GB/T 8314-2013;可溶性糖:80%乙醇、50°C、20 min、620 nm、蒽酮法;儿茶素组分:按Jia et al., 2022;重复次数:3
2.5 非靶向非挥发性化合物分析
样品按以下方法处理。简要来说,将500 mg研磨茶样与25 mL 70%(v/v)甲醇水溶液混合,超声提取30 min,期间每10 min振荡一次。在12000g、10 °C离心10 min后,收集上清液用于后续分析。此外,制备质控(QC)样品以评估代谢组学分析的稳定性和重现性。非挥发性成分采用超高效液相色谱-四极杆-静电场轨道阱质谱(UHPLC-Q Exactive-Orbitrap-MS,Thermo Fisher Scientific,美国)测定。分离使用Hypersil Gold C18柱(2.1 mm × 100 mm,1.9 μm;Thermo Fisher Scientific,美国),柱温35 °C,流速300 μL/min。流动相为0.1%甲酸水溶液(A)和0.1%甲酸乙腈溶液(B)。洗脱梯度如下:0-1.5 min:0% B;1.5-1.6 min:0-5% B;1.6-18 min:5-18% B;18-34 min:18-95% B;34-38.4 min:95% B;38.4-38.5 min:95-0% B;38.5-42 min:0% B。进样体积为2 μL。质谱在正离子(3.5 kV)和负离子(2.5 kV)模式下记录,m/z范围100-1500(全扫描)。MS参数设置如下:离子传输管温度325 °C;雾化器温度300 °C,压力45 psi;扫描周期1.5 s;毛细管电压4000 V;碰撞能量35 eV。原始UHPLC-MS数据用Compound Discoverer 3.2软件(Thermo Fisher Scientific,美国)处理,进行峰提取和比对,确定保留时间和峰强度。参数设置如下:前体离子容差5 ppm,产物离子容差10 ppm,产物离子阈值5%。对于提取的数据,去除组内缺失值>50%的离子峰,剩余零值用最小值的一半替换。代谢物鉴定基于精确分子质量、MS/MS碎片模式、人类代谢组数据库(HMDB)、Lipidmaps数据库、Metlin数据库和已发表参考文献进行。
【数据】茶样:500 mg;提取液:25 mL 70%甲醇;超声时间:30 min;振荡间隔:10 min;离心:12000g、10 min、10°C;色谱柱:Hypersil Gold C18(2.1 mm × 100 mm,1.9 μm);柱温:35°C;流速:300 μL/min;流动相:0.1%甲酸水/0.1%甲酸乙腈;进样量:2 μL;离子模式:正离子3.5 kV、负离子2.5 kV;m/z范围:100-1500;离子传输管温度:325°C;雾化器温度:300°C、45 psi;毛细管电压:4000 V;碰撞能量:35 eV;前体离子容差:5 ppm;产物离子容差:10 ppm;缺失值阈值:>50%
2.6 统计分析
数据以均值±标准差表示。统计分析使用SPSS(IBM Corp, v23, Armonk, NY, USA)进行。多重比较采用单因素方差分析(One-way ANOVA)结合Duncan检验。p < 0.05表示统计学显著。非挥发性代谢物的主成分分析(PCA)和正交偏最小二乘判别分析(OPLS-DA)使用R包(v4.1.2)进行。OPLS-DA模型通过计算R2Y和Q2进行验证,并进行置换检验(200次)以避免过拟合。从OPLS-DA结果中提取变量投影重要性(VIP)值。不同组间的差异代谢物(DMs)通过VIP>1和p < 0.05筛选,两组间的DMs通过VIP>1、|Log2(倍数变化)|>1和p < 0.05筛选。Venn、K-means和KEGG分析使用Metware Cloud(https://cloud.metware.cn)进行。
【数据】统计软件:SPSS v23;多重比较:One-way ANOVA + Duncan;显著性阈值:p < 0.05;PCA/OPLS-DA:R包v4.1.2;置换检验:200次;DMs筛选:VIP>1、p<0.05;两组间DMs:VIP>1、|Log2(FC)|>1、p<0.05;分析平台:Metware Cloud
研究结果
3.1 黑曲霉茶发酵剂发酵对茶叶主要品质成分的影响
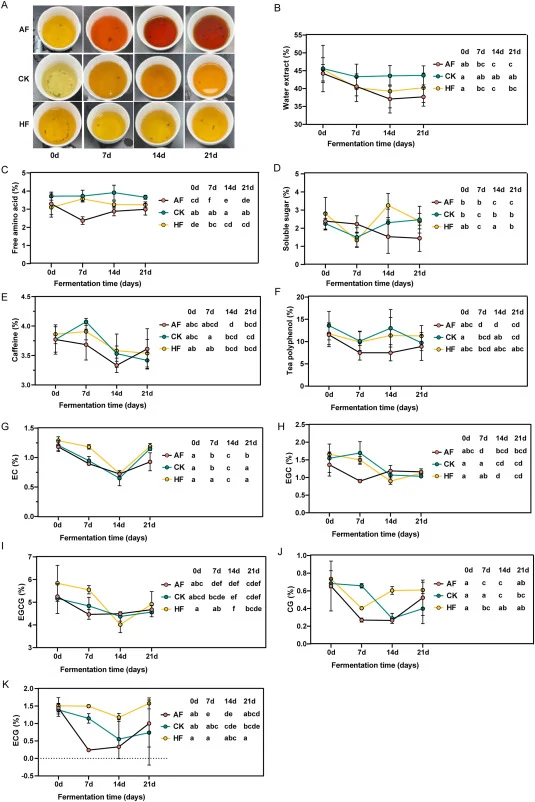
作为渥堆发酵中的优势微生物,黑曲霉在品质成分转化中起关键作用。如图1A所示,随着发酵进行,AF组茶汤颜色逐渐由橙黄变为橙红。这归因于黑曲霉促进的茶红素和茶褐素的形成(Sun et al., 2024)。在CK组中,茶汤从初始的黄绿色变为橙黄色,表明茶叶上的本土微生物和空气微生物也在一定程度上参与了色素转化。相比之下,HF组的茶汤在21天处理期间几乎无变化。尽管单独湿热处理可导致儿茶素部分氧化,但主要产物是茶黄素和茶红素,不足以产生明显的颜色变化(Hu et al., 2012)。这一结果表明,在渥堆发酵中,微生物作用在决定黑茶品质方面占主导地位,而湿热条件主要起调节环境和加速反应的作用。随着渥堆发酵延长,三组的水浸出物含量均下降,其中AF组下降最为明显。到第14天,其含量显著低于初始值(图1B,表S1),HF组也观察到类似趋势。这一结果与先前发现的水浸出物含量在渥堆发酵中先升后降不同(S. Liu, Zhao, Hu, & Lei, 2012),可能归因于本研究中采样间隔较长。相比之下,CK组在整个渥堆期间变化不大(图1B,表S1)。第0天时,HF和AF组的游离氨基酸水平显著低于CK组(图1C,表S1),这可能是高温促进氨基酸降解所致(Weiss et al., 2018)。在整个过程中,CK组的游离氨基酸含量保持不变,HF组先升后降。在AF组中,游离氨基酸含量呈先降后升趋势;在第7天和第14天,含量显著低于CK和HF组(图1C,表S1)。先前研究表明,液体发酵中添加黑曲霉会降低游离氨基酸含量(Sun et al., 2024),这与我们的结果一致。然而,这一发现与早期报道的发酵中添加黑曲霉促进氨基酸释放相矛盾(Cai et al., 2023)。这种差异可能归因于本研究中茶叶用量有限和发酵时间长,期间氮源被微生物消耗。尽管如此,这与先前研究显示自然渥堆和单独水热处理中大多数游离氨基酸下降一致(Li, Hao, et al., 2022; Shi et al., 2021)。类似地,这可能部分解释为何AF组中可溶性糖在整个渥堆期间持续下降(图1D,表S1)。相比之下,HF和CK组的可溶性糖含量先降后升。值得注意的是,第14天时,HF组的可溶性糖含量显著高于CK和AF组(图1D,表S1),表明湿热处理可导致纤维素和淀粉等复杂多糖的水解(Gong et al., 2026)。随着渥堆发酵延长,咖啡因含量逐渐下降,但无显著差异。此外,同一时间点三组间无显著差异(图1E,表S1)。这与先前使用黑曲霉RAF106发酵夏秋绿茶的研究不同(Cai et al., 2023),可能是菌株差异所致。如图1F所示,AF组的多酚含量变化最为明显。随着发酵时间延长逐渐下降,与初始日相比,第7天和第14天观察到显著差异(表S1)。这一结果此前已被证实(Ma et al., 2021)。相比之下,HF组的茶多酚含量变化不大,而CK组呈现先降、后升、再降的趋势(图1F,表S1)。这可能由多种因素引起,需进一步研究。在本研究检测的五种儿茶素中,EC含量的趋势在三组中一致,均先降后升(图1G,表S1)。在AF组中,EC含量总体降低,与先前发现微生物发酵促进儿茶素转化和降解一致(Wang et al., 2022)。EGC、CG和ECG也观察到类似趋势(图1H–J和K,表S1)。发酵后期这些儿茶素增加的具体原因目前尚不清楚,可能与温度、水分或其他因素有关。除HF组外,EGCG在整个渥堆过程中下降(图1I,表S1),表明微生物作用增强了EGCG的氧化聚合和差向异构化(Zhu et al., 2020),此前也观察到类似结果(Guo et al., 2025)。
【数据】AF组茶汤颜色:橙黄→橙红;水浸出物:AF组第14天显著低于初始值;游离氨基酸:AF组第7、14天显著低于CK和HF组;可溶性糖:AF组持续下降,HF组第14天显著高于CK和AF组;咖啡因:逐渐下降、无显著差异;茶多酚:AF组第7、14天显著低于初始日;EC:三组均先降后升;EGCG:除HF组外全程下降;显著性阈值:p < 0.05
3.2 黑曲霉茶发酵剂发酵对茶叶非挥发性代谢物的影响
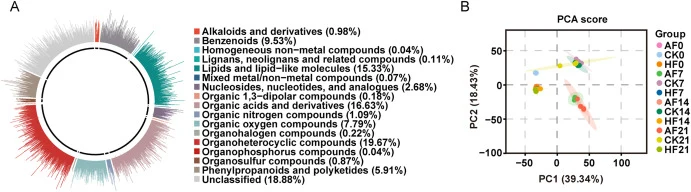
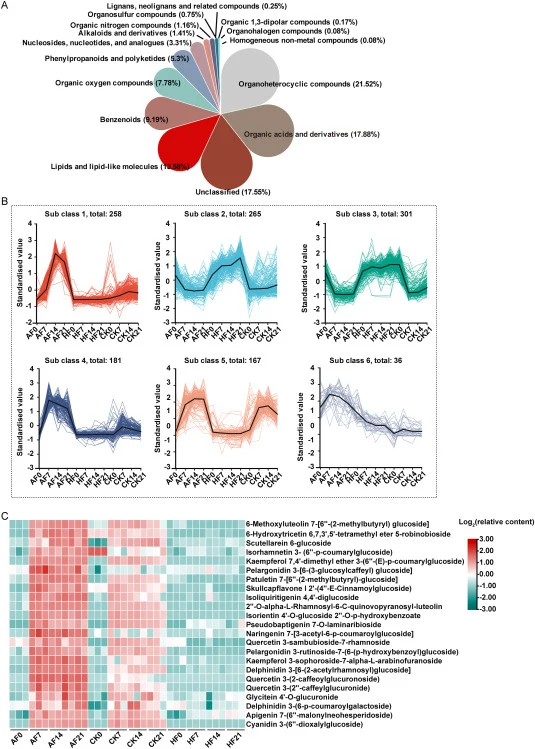
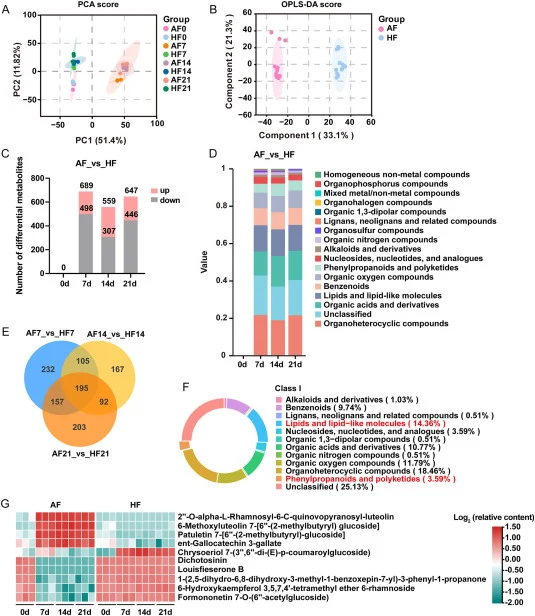
所有组中共检测到2760种代谢物,分为17类,主要包括有机杂环化合物(19.67%)、有机酸及衍生物(16.63%)、脂质及类脂分子(15.33%)、苯环型化合物(9.53%)、有机氧化合物(7.79%)和苯丙素及聚酮类(5.91%)(图2A)。PCA分析显示,这12组形成三个明显聚类,其中HF0、HF7、HF14、HF21和AF0(AF和HF组在第0天接受相同处理)聚在一起;AF7、AF14和AF21形成第二聚类;CK组样品聚为一类。这表明处理方法对非挥发性代谢物谱的影响大于发酵时间(图2B)。进一步分析显示,从所有组中共筛选出1208种DMs(VIP > 1且p < 0.05)(表S2),主要包括有机杂环化合物(21.52%)、有机酸及衍生物(17.88%)、脂质及类脂分子(13.58%)、苯环型化合物(9.19%)、有机氧化合物(7.78%)和苯丙素及聚酮类(5.3%)(图3A)。对这12个样品(AF0、AF7、AF14、AF21、HF0、HF7、HF14、HF21、CK0、CK7、CK14、CK21)中的这些DMs进行K-means分析,鉴定出六个不同亚类(图3B)。其中,亚类1和亚类4在AF组中均呈先升后降,在HF组中几乎不变,在CK组中略有上升(图3B)。这两个亚类含有大量有机酸及衍生物(图S2A和B),以氨基酸为主。除第0天外,这些代谢物的相对含量在AF组中高于HF和CK组。此外,AF组第21天的水平略低于第7天和第14天(图S2C)。这一结果与图1C所示的总游离氨基酸含量基本一致,进一步证实黑曲霉茶发酵剂发酵能有效提高氨基酸水平,而延长处理导致氨基酸被微生物作为能源消耗(Wang et al., 2023)。此外,大量黄酮类化合物……
【数据】总代谢物:2760种;分类:17类;主要类别占比:有机杂环化合物19.67%、有机酸及衍生物16.63%、脂质及类脂分子15.33%、苯环型化合物9.53%、有机氧化合物7.79%、苯丙素及聚酮类5.91%;DMs总数:1208种(VIP>1、p<0.05);DMs主要类别占比:有机杂环化合物21.52%、有机酸及衍生物17.88%、脂质及类脂分子13.58%、苯环型化合物9.19%、有机氧化合物7.78%、苯丙素及聚酮类5.3%;K-means亚类数:6个;PCA聚类数:3个
讨论与解读
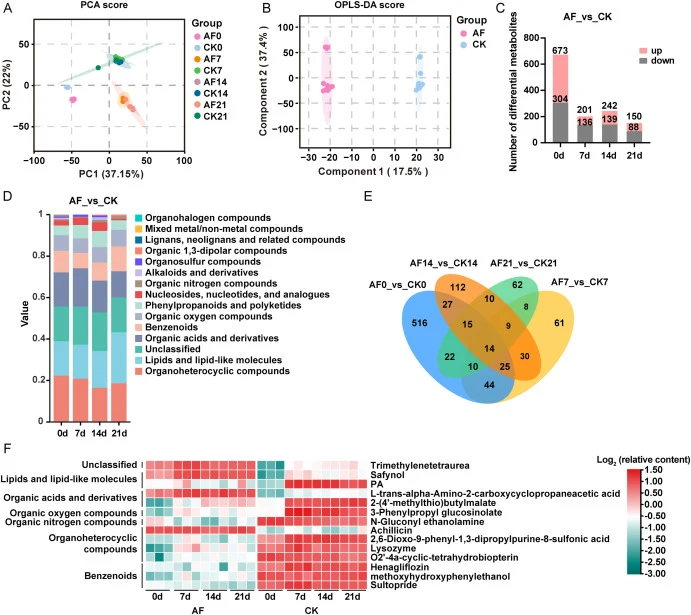
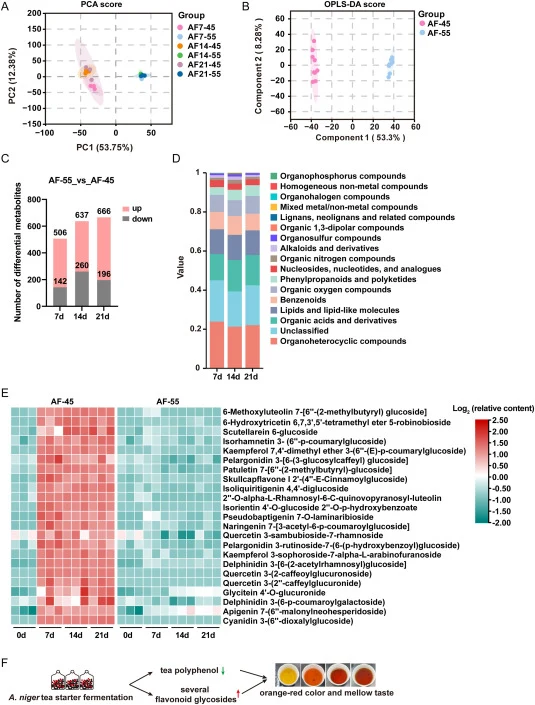
本研究从主要生化成分、黄酮类转化以及区分微生物活性与湿热作用的角度,系统评估了黑曲霉茶发酵剂发酵对茶叶品质的影响。渥堆发酵中添加黑曲霉茶发酵剂有效促进了黑茶的风味转化,使茶汤由橙黄变为橙红,而单独湿热处理对色泽几乎无影响,证实微生物作用是黑茶色泽形成的主导因素。黑曲霉茶发酵剂发酵降低了茶多酚、主要儿茶素(EC、EGC、CG、ECG、EGCG)和可溶性糖含量。此外,黑曲霉可能促进了黄酮类糖基化,从而赋予黑茶独特风味(图6F)。同时,它加速了茶叶成分的消耗。然而,提高发酵温度对黑曲霉茶发酵剂发酵组中黄酮苷含量没有影响。总体而言,黑曲霉茶发酵剂发酵主导了黑茶渥堆过程中的色泽形成和黄酮转化。
编译者解读:该研究用灭菌+接种的设计巧妙剥离了微生物作用与湿热作用的贡献,这是方法上的亮点——HF组作为“无微生物但同湿热”的对照,使AF组效应可归因于黑曲霉本身。黄酮糖基化与温度无关的发现提示糖基转移酶可能具有较宽的温度耐受窗口,这对工业化控温发酵有参考价值。局限在于仅用单一菌株、茶样量小(10 g),且代谢物鉴定依赖数据库匹配,糖基化产物未做结构确证。合成生物学视角下,后续可挖掘黑曲霉糖基转移酶基因并在底盘细胞中重构,实现黄酮苷的定向合成。
参考来源
期刊:LWT, 2026
DOI: 10.1016/j.lwt.2026.119817
DOI: 10.1016/j.lwt.2026.119817