来源:De novo biosynthesis of meroterpenoid grifolic acid in Yarrowia lipolytica(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
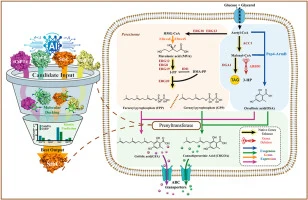
灰绿酸(grifolic acid)是一种真菌来源的萜类-聚酮杂合次级代谢产物,具有抗肿瘤与抗菌活性,但天然丰度低、化学合成困难。本研究以解脂耶氏酵母为底盘,通过重建奥赛林酸(orsellinic acid)合成模块、强化丙二酰辅酶A前体供应、将真菌聚酮合酶ArmB靶向液泡区室化,并结合AI辅助的分子对接与深度学习动力学预测筛选异戊烯基转移酶StbC,再经外排泵工程与β-氧化途径阻断,最终在摇瓶补料培养中实现30.5 mg/L灰绿酸的全新合成。
研究背景
解脂耶氏酵母是生产复杂萜类与聚酮类天然产物的高效非常规酵母底盘。它被认定为GRAS生物,乙酰辅酶A与丙二酰辅酶A通量强,适合合成需要大量酰基辅酶A前体的聚酮化合物。该酵母还能利用糖类、油脂、挥发性脂肪酸和甘油等多种廉价底物,配套的遗传操作工具也日趋成熟,已被用于黄酮类、类胡萝卜素、青蒿素前体与紫色杆菌素等天然产物的合成。这些工作说明,借助其内源的丙二酰辅酶A途径与甲羟戊酸(MVA)途径,解脂耶氏酵母可以承载复杂的生物合成路线。
灰绿酸又称ilicicolinic acid B,由倍半萜部分与酚类骨架连接而成,最初从担子菌Albatrellus confluens中分离。其化学合成难以放大,自然环境中的含量又极低,临床转化因此受阻。本研究的目标是在解脂耶氏酵母中建立灰绿酸的全新生物合成路线,并系统解决前体供应、酶催化效率、产物外排与碳流竞争等瓶颈。
研究方法
2.1 菌株
本研究的亲本底盘为解脂耶氏酵母Po1fk(po1gΔura3Δku70loxP)。所有工程菌株(命名为YX301至YX321)均通过Cre–loxP重组系统进行位点特异性基因组整合依次构建,随后进行标记切除与表型验证。所有重组酵母菌株的完整清单,包括亲本背景、整合表达盒、基因组整合位点及营养缺陷型/抗生素筛选标记,见补充表S1。
【数据】菌株:解脂耶氏酵母Po1fk(po1gΔura3Δku70loxP);工程菌株:YX301–YX321;整合系统:Cre–loxP;原文未详述其他数值
2.2 化学品与实验室试剂
分析标准品包括灰绿酸(CAS #80557-12-6)与奥赛林酸(CAS #480-64-8),分别购自上海阿拉丁生化、上海麦克林与Cayman Chemical(美国)。酵母蛋白胨与酵母提取物等培养基组分由上海生工生物提供。用于菌株筛选与维持的酵母氮源碱基(YNB)及专用缺陷型培养基(CSM-Leu、CSM-Ura)购自Sunrise Science(美国)。额外氨基酸补充物尿嘧啶与亮氨酸由上海麦克林提供。标准微生物培养基,包括营养肉汤粉、LB肉汤粉与琼脂粉,购自生工生物(上海)。
【数据】灰绿酸CAS:80557-12-6;奥赛林酸CAS:480-64-8;YNB及CSM-Leu/CSM-Ura来源:Sunrise Science;原文未详述其他数值
2.3 分子生物学试剂盒与引物
DNA凝胶纯化试剂盒与质粒提取试剂盒分别购自翌圣生物(上海)与天根生化(北京)。所有寡核苷酸由GENEWIZ公司(广州)合成。Gibson组装、测序与菌落PCR所用全部寡核苷酸的具体序列见补充表S2。
【数据】试剂盒:DNA凝胶纯化(翌圣)、质粒提取(天根);引物合成:GENEWIZ广州;原文未详述其他数值
2.4 重组质粒构建
为提升在解脂耶氏酵母宿主中的翻译与表达,异源基因ArmB(来自Armillaria mellea)、tCsPT4(来自Cannabis sativa)、NphB(来自Streptomyces sp. CL190)、StbC(来自Stachybotrys bisbyi)、RdPT1(来自Rhododendron dauricum)、EfmvaS与EfmvaE(来自Enterococcus faecalis)均依据解脂耶氏酵母的偏好密码子进行了密码子优化。所有优化后的合成基因序列由苏州GENEWIZ合成,并已存入补充序列。所有表达构建体均使用YaliBrick pYLXP'载体,该平台此前已被证实可在该酵母中驱动高水平异源基因表达[17,29]。每个转录单元被配置为独立的单顺反子表达盒,由强组成型启动子TEF(含内含子的高表达版本)驱动,并由解脂耶氏酵母XPR2终止子终止[30]。在多基因过表达模块中,如MVA强化表达盒(EfmvaE–EfmvaS)与FPP扩增表达盒(ylERG12–ylERG8–ylERG20),每个开放阅读框均由各自独立的启动子与终止子控制,以防止转录通读、确保化学计量表达并消除重复序列不稳定性。重组质粒在大肠杆菌DH5α中克隆与扩增,构建体完整性由广州GENEWIZ通过Sanger测序验证。
【数据】宿主:大肠杆菌DH5α;启动子:TEF(含内含子高表达版本);终止子:XPR2;载体:YaliBrick pYLXP';原文未详述其他数值
2.5 定点基因组重组系统
为实现解脂耶氏酵母中的精确染色体整合与基因破坏,本研究采用基于Cre–loxP系统的位点特异性重组方法[17,30]。靶向修饰使用整合载体pUrlp-X-loci[30](pYLXP'骨架的衍生物[29])执行。该设置可在预定中性位点与指定代谢破坏靶点上实现高效、标记可回收的基因组修饰。具体而言,基因组整合被定向至以下已验证的染色体位点:Ku70(YALI0C08701g)、ARO8(YALI0E20977g)、DGA2(YALI0D07986g)、LIP1(YALI0E10659g)、GGPPS(YALI0D00789g)以及中性整合位点YALI0A08734g,详见本课题组前期报道[17,30]。HBD1(YALI0E10835g)的染色体基因破坏与多基因表达盒的整合通过诊断性菌落PCR及连接区测序验证。
【数据】整合位点:Ku70、ARO8、DGA2、LIP1、GGPPS、YALI0A08734g;破坏基因:HBD1(YALI0E10835g);系统:Cre–loxP;原文未详述其他数值
2.6 酵母转化与发酵
解脂耶氏酵母的遗传转化按Ma等[7]描述的醋酸锂法进行。简言之,细胞在5 mL YPD培养基中预培养至对数中期(OD600 ≈ 1.5–2.0),3000× g离心5 min收集,用无菌PBS缓冲液(pH 7.4)洗涤两次。收集的细胞沉淀重悬于105 μL转化混合液中,该混合液由以下组分构成:50%(w/v)PEG4000(90 μL)、2 M醋酸锂(5 μL)、热变性鲑鱼精单链DNA(5 μL,10 mg/mL)以及线性化目标DNA片段或质粒(5 μL,约1–2 μg)。转化悬液充分混匀后于39 °C孵育60 min。为增强DNA跨膜摄取,热激孵育期间每15 min短暂涡旋30 s。热激后收集细胞,用无菌水洗涤,涂布于选择性CSM-Ura或CSM-Leu琼脂平板。转化子在30 °C培养48–72 h后分离,并通过诊断性菌落PCR与测序验证。
种子培养在含25 mL种子培养基的250 mL挡板锥形瓶中进行,30 °C、250 rpm振荡培养24 h。此时用M-100生物传感器分析仪(SIEMAN,深圳)确认残余葡萄糖已完全耗尽(<0.2 g/L)。为严格防止碳源或营养物携带进入生产阶段,种子细胞经离心(3000× g,5 min)收集,用无菌PBS缓冲液洗涤两次,并重悬于无菌水中。生产阶段,将10%(v/v)接种量(2 mL,归一化为等效初始细胞密度)转入含20 mL发酵培养基的250 mL平底锥形瓶(或用于流体力学通气比较的250 mL挡板瓶)中。发酵在30 °C、250 rpm下进行,最长120 h。每24 h取样(1 mL),监测细胞生长(OD600)、培养基pH、残余碳源与代谢产物滴度。
对于补料分批摇瓶发酵,培养在含60.0 g/L葡萄糖作为初始碳源的发酵培养基平底瓶中进行,以支持快速生物量积累。待葡萄糖耗尽(约36–48 h)后,通过每日补加浓缩甘油(每24 h补加20.0 g/L)并定期补充浓缩YNB来维持生产阶段。该两阶段补料策略将基于葡萄糖的快速细胞生长阶段与基于甘油的次级代谢产物生产阶段解耦,避免分解代谢阻遏与培养液严重酸化。种子与发酵培养均使用YPD/YPG(酵母–蛋白胨–葡萄糖/甘油)培养基。种子培养基:20.0 g/L葡萄糖、20.0 g/L蛋白胨、10.0 g/L酵母提取物。发酵培养基:60.0 g/L甘油或葡萄糖,补充20.0 g/L蛋白胨与10.0 g/L酵母提取物。
【数据】转化:PEG4000 50%(w/v)90 μL、2 M醋酸锂5 μL、ssDNA 5 μL(10 mg/mL)、DNA 5 μL(1–2 μg)、39 °C 60 min;种子培养:25 mL/250 mL、30 °C、250 rpm、24 h、残糖<0.2 g/L;接种量:10%(v/v,2 mL);发酵:30 °C、250 rpm、120 h、每24 h取样1 mL;补料:初始葡萄糖60.0 g/L,36–48 h后每24 h补甘油20.0 g/L;种子培养基:葡萄糖20.0 g/L、蛋白胨20.0 g/L、酵母提取物10.0 g/L;发酵培养基:甘油或葡萄糖60.0 g/L、蛋白胨20.0 g/L、酵母提取物10.0 g/L
2.7 样品制备与提取
灰绿酸(GFA)及其芳香前体奥赛林酸(OSA)为亲脂性化合物,水溶性差,在胞内脂质体/膜与胞外发酵液之间分配。为在不因细胞沉淀洗涤差异造成损失的前提下捕获真实总体生物合成性能(总滴度),全发酵液被直接用于总代谢物提取。具体而言,将600 μL全发酵液(含完整细胞与培养上清)转入装有0.5 mm酸洗玻璃珠的低温匀浆管中。低温机械细胞破碎使用3D离心式样品匀浆仪(型号JXCL-6K,净信,上海)进行,操作参数原文节选至此截止,后续步骤原文未详述。
【数据】取样体积:600 μL全发酵液;玻璃珠:0.5 mm酸洗;匀浆仪:JXCL-6K(净信,上海);原文未详述后续参数
研究结果
3.1 通过ACC1过表达与Pep4介导的亚细胞靶向提升奥赛林酸产量
灰绿酸由FPP与聚酮前体奥赛林酸缩合而成(图1a)。为在解脂耶氏酵母中建立灰绿酸生物合成,本研究首先通过引入来自Armillaria mellea的迭代I型真菌聚酮合酶ArmB重建上游奥赛林酸合成途径[17]。使用DeepLoc-2.1的生物信息学分析预测,野生型ArmB定位于细胞质(概率0.651)与细胞膜(概率0.6723),并预测存在核定位信号(补充图S5)。在亲本菌株Po1fk中,野生型ArmB在强组成型启动子TEF下异源表达(图1b),建立了OSA合成的功能基线,菌株YX301产生2.20 mg/L OSA(图1c)。
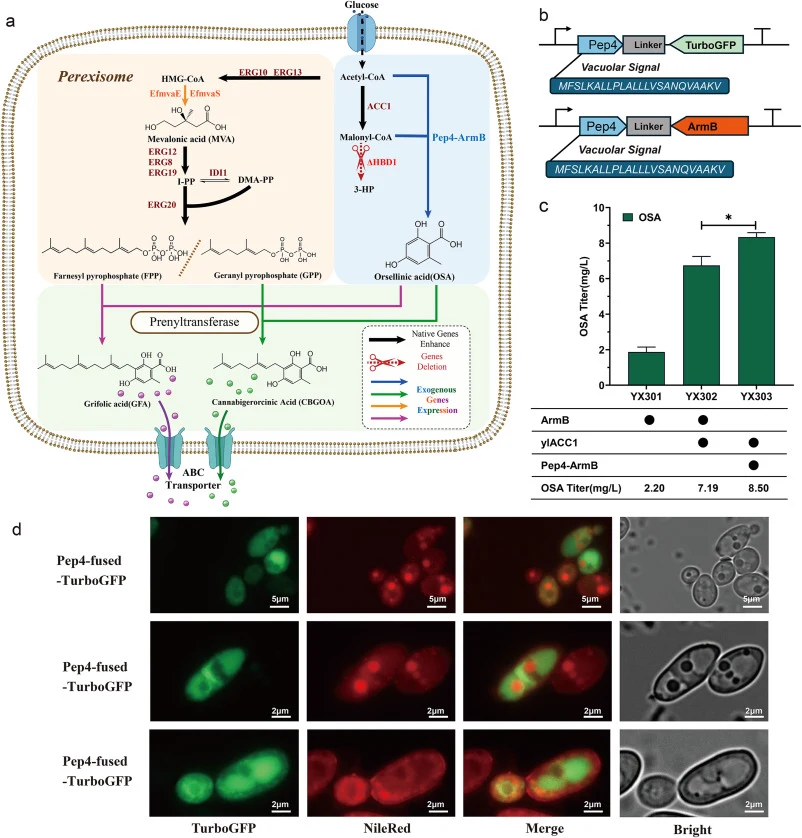
丙二酰辅酶A由乙酰辅酶A羧化酶(ACC1)生成[7,35],是OSA生物合成所需的主要延伸单元。为缓解前体限制,在菌株YX302中过表达天然ACC1。该修饰提升了胞内丙二酰辅酶A供应,使OSA积累提高3.3倍至7.19 mg/L(图1c),凸显了丙二酰辅酶A在促进聚酮生物合成中的重要作用[7,17]。
【数据】菌株YX301:OSA 2.20 mg/L;菌株YX302:OSA 7.19 mg/L(提高3.3倍);ArmB定位预测:细胞质0.651、细胞膜0.6723;启动子:TEF
尽管胞质前体强化提高了滴度,未区室化的聚酮合成仍易受天然脂肪酸合酶的底物竞争、胞质水解酶对中间体的过早降解以及潜在细胞毒性的影响[36,37]。将合成过程区室化到特化细胞器可提供保护性物理微环境,浓缩代谢中间体,并形成驱动生物合成通量的热力学汇[36,38,39]。在酵母中,液泡是一个具有专门腔内储存能力和酸性微环境的大型细胞器,适合隔离疏水性芳香代谢物[38,39]。为检验液泡靶向是否有利于OSA积累,将源自内源液泡天冬氨酰蛋白酶Pep4的24个氨基酸N端前导序列融合至ArmB的N端(图1b和c)[40]。为评估靶向保真度,用Pep4融合TurboGFP融合蛋白确认了Pep4融合蛋白的亚细胞定位,该融合蛋白表现出强烈信号,显著定位于明场显微镜下易于区分的大型球形低折射率液泡区室的外周与腔内(图1d)。用中性脂质选择性荧光团Nile Red复染,证实绿色荧光与红色荧光脂滴完全分离(图1d)。由于实验室仪器限制,未对专用活体液泡染料进行共成像,但TurboGFP信号与明场中液泡形态的对齐、其与胞内脂滴的完全排斥,以及天然Pep4信号肽已被充分确立的靶向功能,强烈表明其定位于液泡区室(图1d)。关键的是,在菌株YX303中同时表达Pep4–ArmB融合构建体与过表达ACC1,获得了最高的OSA,约为8.5 mg/L(图1c),表明液泡定位在促进终产物形成中的重要作用。总体而言,这些结果表明,解脂耶氏酵母中的OSA生产可通过代谢前体扩增与酶亚细胞共定位的双重策略得到改善。所得的高滴度OSA底盘为下游异戊烯基化生成灰绿酸奠定了坚实的前体基础。
【数据】Pep4前导序列:24个氨基酸;菌株YX303:OSA约8.5 mg/L;复染:Nile Red;报告蛋白:TurboGFP;原文未详述其他数值
3.2 AI辅助鉴定与实验验证灰绿酸生物合成的最优异戊烯基转移酶
为确定将OSA与法尼基焦磷酸(FPP)转化为灰绿酸(GFA)催化效率最高的异戊烯基转移酶,本研究通过分子对接、基于AI的动力学预测及在解脂耶氏酵母中的实验验证,系统评估了四种候选异戊烯基转移酶:来自Cannabis sativa的CsPT4[28]、来自Streptomyces sp.的NphB[41]、来自Stachybotrys bisbyi的StbC[42]以及来自Rhododendron dauricum的RdPT1[43]。由于这些酶来源于细菌、植物和真菌等差异较大的物种,其天然底物与活性位点拓扑结构差异显著:StbC在ilicicolinic acid/LL-Z1272生物合成中天然催化将C15法尼基转移至类奥赛林酸芳香核心[42];NphB天然将C10香叶基转移至1,6-二羟基萘[41];CsPT4天然以GPP对橄榄醇酸(携带C5戊基尾)进行异戊烯基化[28];RdPT1天然将FPP转移至地衣酚,后者是缺乏OSA的C-1羧基的脱羧间苯二酚核心[43]。
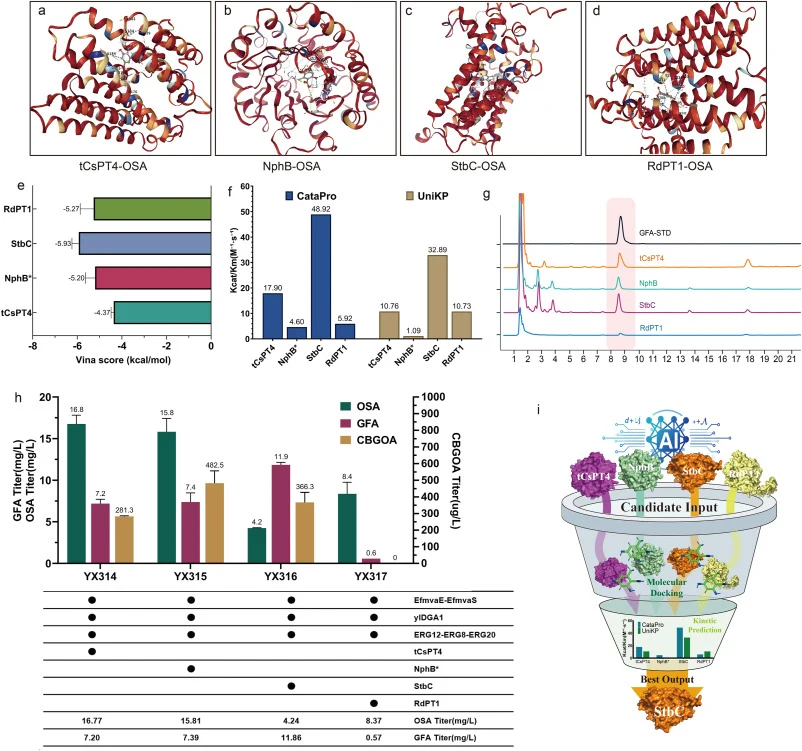
使用CB-Dock2进行分子对接模拟,以建模与OSA的结合构象及空腔相互作用(图2a–d)。如图2e所总结,对接Vina评分显示StbC结合亲和力最强,评分为−5.9 kcal/mol,其次为RdPT1(−5.3 kcal/mol)、NphB(−5.2 kcal/mol)和tCsPT4(−4.4 kcal/mol)。StbC的优越亲和力提示其为异戊烯基转移提供了更有利的催化环境。
【数据】对接评分:StbC −5.9 kcal/mol、RdPT1 −5.3 kcal/mol、NphB −5.2 kcal/mol、tCsPT4 −4.4 kcal/mol;软件:CB-Dock2
为进一步评估酶性能,使用两种互补的基于AI的深度学习模型预测催化效率(kcat/Km):CataPro是一种在多种酶类实验验证催化常数上训练的机器学习模型[34];UniKP是一种整合结构与序列衍生特征的深度神经网络动力学参数预测平台[33]。如图2f所示,StbC在所有测试酶中一致显示最高的预测催化效率。CataPro预测的kcat/Km值为StbC 48.92 M−1 s−1,显著高于tCsPT4(17.9)、RdPT1(5.92)和NphB(4.6)。同样,UniKP预测StbC的kcat/Km为32.89 M−1 s−1,而tCsPT4(10.76)、RdPT1(10.73)和NphB(1.09)较低。双模型一致性提供了有力证据,表明StbC对OSA异戊烯基化具有最高催化潜力,支持其作为下游验证首选候选酶。
【数据】CataPro预测kcat/Km:StbC 48.92、tCsPT4 17.9、RdPT1 5.92、NphB 4.6 M−1 s−1;UniKP预测kcat/Km:StbC 32.89、tCsPT4 10.76、RdPT1 10.73、NphB 1.09 M−1 s−1
通过在各密码子优化异戊烯基转移酶于解脂耶氏酵母中异源表达,对计算机结果进行了实验验证。HPLC色谱图(图2g)证实所有工程菌株均产生灰绿酸;然而定量分析揭示了生产滴度的明显差异。当共表达FPP强化模块(EfmvaE-EfmvaS与ylERG12-ylERG8-ylERG20)时——这些模块在本课题组前期研究中已被证明具有功能[17]——跨生物学重复的定量滴度分析(图2h和i)显示出催化性能的明显差异:表达StbC的菌株YX316产生最高GFA滴度,为11.86 mg/L,优于表达NphB的菌株(YX315,7.39 mg/L)、表达tCsPT4的菌株(YX314,7.20 mg/L)和表达RdPT1的菌株(YX317,0.57 mg/L)。同时,StbC菌株表现出最低的残余OSA积累(4.24 mg/L,而NphB与tCsPT4为15.81–16.77 mg/L),表明高效的体内底物转化。重要的是,将计算机预测与实验滴度数据比较,揭示了值得关注的生物学关联与启示。StbC的计算机排名第一与实验性能相符,证实深度学习模型有效捕捉了StbC对其天然C15异戊烯基供体与芳香核心的天然活性位点兼容性。相反,RdPT1虽被预测具有中等动力学效率,但在体内仅产生痕量GFA(0.57 mg/L)。这一差异可归因于体内生物学因素,而原文节选至此截止,后续分析原文未详述。
【数据】GFA滴度:YX316(StbC)11.86 mg/L、YX315(NphB)7.39 mg/L、YX314(tCsPT4)7.20 mg/L、YX317(RdPT1)0.57 mg/L;残余OSA:StbC 4.24 mg/L、NphB/tCsPT4 15.81–16.77 mg/L;检测方法:HPLC
3.3 碳源、外排泵与β-氧化阻断对灰绿酸生产的影响(据图3、图4、图5)
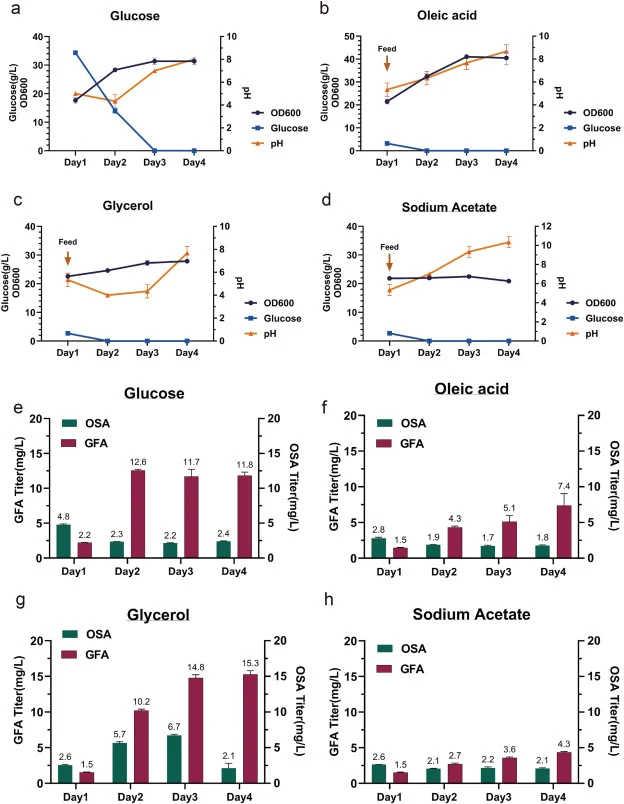
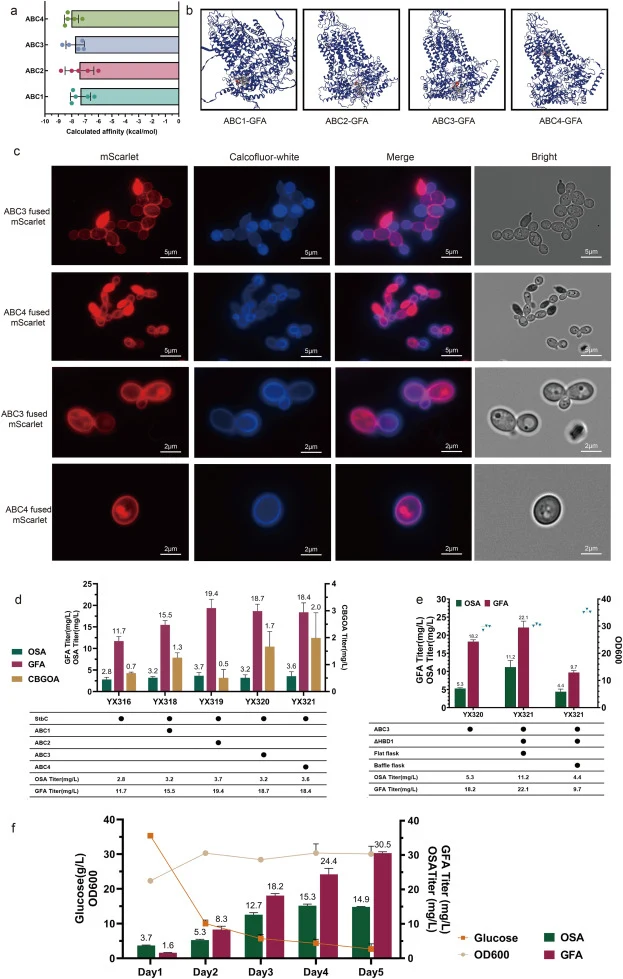
图3展示了摇瓶培养中不同碳底物对生物量积累与灰绿酸生物合成的影响。在初始葡萄糖培养后分别补充葡萄糖、油酸、甘油或醋酸钠,监测了生长(OD600)、pH变化与葡萄糖消耗(图3a–d)。图4显示ABC转运蛋白工程增强了外排能力、菌株耐受性与灰绿酸生产:图4a为GFA对接至四种ABC转运蛋白跨膜通道的计算结合亲和力;图4b为GFA在ABC转运蛋白结合口袋内的3D对接可视化;图4c为共聚焦显微镜结果,原文图注节选至此截止。图5原文未提供图注。
【数据】碳源:葡萄糖、油酸、甘油、醋酸钠;监测指标:OD600、pH、葡萄糖消耗;外排工程:PDR家族ABC转运蛋白;原文未详述具体数值
讨论与解读
本研究构建了一套多层面的代谢工程策略,在解脂耶氏酵母中实现灰绿酸的高效全新生物合成。通过重建奥赛林酸途径、以ACC1过表达扩增前体供应、并借助Pep4介导的液泡区室化,克服了胞质前体竞争与中间体降解,将OSA滴度提升至8.50 mg/L。AI引导的酶筛选、分子对接与CataPro/UniKP预测将StbC鉴定为最优异戊烯基转移酶,在体内实现优越转化。生理性碳源优化表明甘油是理想底物,可维持氧化还原与 precursor 池而不造成培养液酸化。质膜工程采用天然PDR家族ABC外排泵缓解了胞内产物胁迫并促进胞外输出,而删除HBD1则消除了竞争性β-氧化造成的碳流失。结合平底瓶补料分批发酵,工程菌株达到30.5 mg/L灰绿酸的基准滴度。这些结果确立了解脂耶氏酵母作为萜类-聚酮杂合分子生产的实用可调平台。
编译者解读:该工作的亮点在于把"前体-酶-区室-外排-碳流"五个节点串成一条闭环工程链,尤其是用液泡靶向解决疏水产物毒性、用双AI模型缩小酶筛选空间,思路可迁移到其他聚酮-萜类杂合分子。局限也明显:30.5 mg/L仍属毫克级,距工业化克级尚有距离;AI预测与RdPT1体内表现脱节,说明纯序列-结构模型难以覆盖体内微环境;液泡靶向的定量贡献也缺乏对照拆分。后续若结合液泡膜转运蛋白改造与发酵工艺放大,该平台价值会进一步释放。
参考来源
期刊:Synthetic and Systems Biotechnology(2027)
DOI:10.1016/j.synbio.2026.10.015
DOI: 10.1016/j.synbio.2026.10.015