来源:Systematic small regulatory RNA guided pathway attenuation enables high-level riboflavin production in Escherichia coli(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
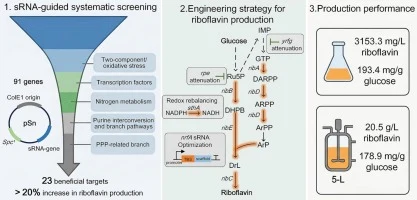
核黄素(维生素B2)工业上主要依赖微生物发酵生产,但大肠杆菌中的核黄素合成受前体供应和全局生理调控的双重制约。本研究以合成小调控RNA(sRNA)为工具,对五个功能模块的91个基因进行系统性弱化筛选,鉴定出23个使核黄素产量提升20%以上的靶点,并经基因组层面验证。通过组合弱化rpe与yrfG、优化nrfA靶向sRNA表达盒、染色体强化核黄素操纵子,构建出菌株SN49M。补料分批发酵72小时产量达20.5 g/L,葡萄糖得率178.9 mg/g,为目前微生物发酵生产核黄素的最高葡萄糖基得率。
研究背景
核黄素是水溶性必需维生素,也是黄素单核苷酸(FMN)和黄素腺嘌呤二核苷酸(FAD)的生物合成前体。FMN与FAD作为众多氧化还原酶的辅因子,参与电子传递、能量代谢、脂肪酸氧化、氨基酸代谢及多种生物合成反应。人类无法从头合成核黄素,必须从膳食中获取,动物营养中也广泛使用膳食补充。核黄素因此广泛应用于食品、饲料、制药和营养保健品行业。
与化学合成相比,微生物发酵在环境相容性、工艺可持续性和可再生碳源利用方面具有优势,已成为商业核黄素生产的主导路线。已开发的核黄素生产微生物包括棉阿舒囊霉、假丝酵母、枯草芽孢杆菌和大肠杆菌。其中枯草芽孢杆菌因生产能力高而成为主要工业平台之一。然而,大肠杆菌中的核黄素生物合成仍受前体可得性和更广泛生理调控的制约,如何系统发现并整合代谢与生理扰动、提高碳效率,是本研究要解决的问题。
研究方法
2.1 菌株与质粒
本研究所用菌株和质粒分别列于表S1和表S2。大肠杆菌DH5α用于质粒构建,所有产核黄素菌株均源自大肠杆菌K-12 MG1655。菌株LS55T(Liu et al., 2021)携带与中心碳代谢、氧化还原平衡和呼吸链活性相关的改造,作为进一步氧化还原工程的亲本菌株,所得菌株SN01T作为sRNA筛选和后续基因组工程的底盘。低拷贝质粒pLS01携带由组成型Ptrc启动子控制的人工核黄素操纵子,用于核黄素生物合成。该人工操纵子由ribA、ribB、ribD、ribE和ribC及其相关核糖体结合位点组成,其组织方式见图S1,相应RBS序列见表S3。合成sRNA表达质粒使用中拷贝载体p20c(Liu et al., 2019)构建,该载体含缺少lacO序列的组成型Ptrc启动子、ColE1复制起点、壮观霉素抗性基因和T1终止子。质粒p20c-MicC(Hu et al., 2021)含大肠杆菌MicC支架,用作合成sRNA构建的骨架。每个合成sRNA由位于MicC支架上游的24核苷酸靶结合序列组成,设计为与相应靶mRNA的翻译起始区域杂交(Yoo et al., 2013)。本研究所用靶结合序列见表S4。为优化nrfA靶向调控模块,将启动子、靶结合序列和sRNA支架变体组装入pLS01衍生质粒。DNA片段用高保真DNA聚合酶(Vazyme Biotech Co., Ltd.,南京,中国)扩增,并用无缝克隆试剂盒(ABclonal Technology Co., Ltd.,武汉,中国)与线性化载体组装。所得构建体转化大肠杆菌DH5α,阳性菌落经菌落PCR和Azenta(苏州,中国)Sanger测序验证。需要时添加抗生素,终浓度为10 mg/L氯霉素和100 mg/L壮观霉素。
【数据】菌株:DH5α、K-12 MG1655、LS55T、SN01T;质粒:pLS01、p20c、p20c-MicC、pTKRED;抗生素浓度:氯霉素10 mg/L、壮观霉素100 mg/L;靶结合序列长度:24 nt;启动子:Ptrc;复制起点:ColE1;终止子:T1
2.2 基因组操作
基因组编辑采用先前描述的无痕方法,结合λ-Red介导的同源重组与I-SceI内切核酸酶系统(Kuhlman & Cox, 2010; Lin et al., 2014)。编辑质粒pTKRED用于提供λ-Red重组蛋白和I-SceI内切核酸酶。携带所需改造、两侧约500–1000 bp同源臂的供体DNA片段通过重叠延伸PCR生成。为精细调节基因表达,天然RBS被替换为设计的变体。候选RBS序列及其预测翻译起始速率(TIR)由RBS Calculator生成(Salis et al., 2009)。本研究设计使用的RBS变体列于表S5–S8。将pTKRED和相应供体DNA电穿孔进入受体菌后,重组菌落经菌落PCR筛选并通过Sanger测序验证。辅助质粒随后在非选择条件下消除,再进行后续基因组操作。
【数据】同源臂长度:约500–1000 bp;RBS设计工具:RBS Calculator;编辑系统:λ-Red + I-SceI;验证方法:菌落PCR、Sanger测序;质粒消除:非选择条件
2.3 核黄素生产的发酵条件
常规培养时,将单菌落接种至5 mL含10 g/L胰蛋白胨、5 g/L酵母提取物和10 g/L NaCl的LB培养基中,于37 °C、220 rpm培养12 h。将适量种子液转入含50 mL MSY培养基的500 mL挡板摇瓶,使初始OD600约为0.025。MSY培养基含10 g/L葡萄糖、3.8 g/L Na2HPO4、1.5 g/L KH2PO4、1.0 g/L (NH4)2SO4、0.2 g/L MgSO4、5 g/L酵母提取物和2%(v/v)微量元素溶液(Liu et al., 2016)。摇瓶发酵于37 °C、220 rpm进行。需要时添加氯霉素(10 mg/L)和/或壮观霉素(100 mg/L)。除另有说明外,所有摇瓶发酵均使用三个独立生物学重复。培养基优化包括在SN36T中逐步调整葡萄糖、硫酸铵和酵母提取物浓度,随后在SN49M中筛选有机氮源(表S11)。采用两因素中心复合设计优化酵母提取物和玉米浆粉浓度,以核黄素效价为响应值(表S12)。拟合二次模型,预测最优点在三次独立摇瓶实验中验证。优化培养基含20 g/L葡萄糖、3 g硫酸铵、3.11 g/L酵母提取物和7.88 g/L玉米浆粉,其余组分与基础MSY培养基相同。菌株SN49M的补料分批发酵在5 L生物反应器中进行,初始工作体积2 L。单菌落接种至5 mL LB培养基,于37 °C、220 rpm过夜培养。一级种子液按2%(v/v)转入200 mL优化培养基,于37 °C、220 rpm培养12 h。二级种子液随后按10%(v/v)接种至生物反应器。生物反应器初始培养基含20 g/L葡萄糖、3.8 g/L Na2HPO4、1.5 g/L KH2PO4、3.0 g/L (NH4)2SO4、0.2 g/L MgSO4、2%(v/v)微量元素溶液、6.22 g/L酵母提取物和15.76 g/L玉米浆粉。发酵于37 °C进行,初始搅拌转速300 rpm,通气量1 vvm。通过自动调节搅拌转速和通气量将溶氧浓度维持在20–30%。pH用氨水(25% w/w)和2 M H2SO4维持在6.8。初始葡萄糖耗尽后开始补糖,并调节补糖速率使残余葡萄糖浓度低于5 g/L。补料液含500 g/L葡萄糖、25 g/L酵母提取物和25 g/L玉米浆粉。定期取样测定细胞生长、残余葡萄糖、核黄素和有机酸浓度。
【数据】种子培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl);种子培养:37 °C、220 rpm、12 h;摇瓶装液量:50 mL/500 mL;初始OD600:约0.025;MSY培养基:10 g/L葡萄糖、3.8 g/L Na2HPO4、1.5 g/L KH2PO4、1.0 g/L (NH4)2SO4、0.2 g/L MgSO4、5 g/L酵母提取物、2%微量元素;摇瓶条件:37 °C、220 rpm;优化培养基:20 g/L葡萄糖、3 g硫酸铵、3.11 g/L酵母提取物、7.88 g/L玉米浆粉;生物反应器:5 L、初始2 L;接种量:一级2%(v/v)、二级10%(v/v);初始搅拌:300 rpm;通气量:1 vvm;溶氧:20–30%;pH:6.8;补料液:500 g/L葡萄糖、25 g/L酵母提取物、25 g/L玉米浆粉;残糖控制:<5 g/L
2.4 分析方法
发酵过程中细胞生长和核黄素效价分别通过Ultrospec 3000分光光度计(Amersham Biosciences,乌普萨拉,瑞典)测定600 nm和444 nm吸光度进行监测。代表性SN49M摇瓶样品中的核黄素另用HPLC(Shimadzu,京都,日本)定量,使用C18-120色谱柱(250 × 4.6 mm,5 μm;Shimadzu)。柱温维持30 °C。流动相为含10 mM NaH2PO4·2H2O的30%(v/v)甲醇,流速0.8 mL/min。进样体积10 μL,紫外检测波长444 nm。使用Sigma–Aldrich购买的核黄素标准品构建校准曲线。代表性色谱图和校准曲线见图S2。总核黄素得率按产生的核黄素总量除以消耗的葡萄糖总量计算。补料分批发酵中,总葡萄糖消耗量由初始葡萄糖量和累计补加葡萄糖量计算,并扣除残余葡萄糖。残余葡萄糖用SBA-40E生物传感器分析仪(山东省科学院生物研究所,山东,中国)测定。乙酸及其他发酵副产物用配备Aminex HPX-87H色谱柱(300 mm × 7.8 mm;Bio-Rad Laboratories,上海,中国)和示差折光检测器的HPLC(Shimadzu,京都,日本)分析。色谱柱维持60 °C,用5 mM H2SO4以0.5 mL/min流速洗脱。灭菌MSY培养基中的亚硝酸盐采用改良Griess反应以磺胺和N-(1-萘基)测定。
【数据】检测波长:细胞600 nm、核黄素444 nm;HPLC柱:C18-120(250 × 4.6 mm,5 μm);柱温:30 °C;流动相:30%(v/v)甲醇+10 mM NaH2PO4·2H2O;流速:0.8 mL/min;进样量:10 μL;检测波长:444 nm;有机酸柱:Aminex HPX-87H(300 mm × 7.8 mm);有机酸柱温:60 °C;有机酸流速:0.5 mL/min;洗脱液:5 mM H2SO4
研究结果
3.1 重新平衡胞内氧化还原辅因子提高核黄素产量
前期工作表明,呼吸链重塑和氧化还原辅因子工程可提高工程大肠杆菌的核黄素产量。破坏低效呼吸链组分产生菌株LS51T(Liu et al., 2021),其核黄素产量为647.9 mg/L。在LS51T中进一步过表达可溶性吡啶核苷酸转氢酶基因sthA产生菌株LS55T,核黄素产量提高至1020.2 mg/L,得率100.0 mg/g葡萄糖,最大OD600为9.4(图S3)。57.5%的提升提示胞内氧化还原辅因子失衡是工程产核黄素底盘的重要制约。本研究所用亲本菌株源自糖酵解减弱且Entner–Doudoroff途径被阻断的背景(Liu et al., 2016)。在此代谢背景下,碳流优先转向PPP,支持核酮糖-5-磷酸的形成——核黄素生物合成的直接前体之一。这种通量重分配可能同时增加NADPH生成并减少NADH可得性,从而造成氧化还原失衡,制约细胞代谢和核黄素生产。为进一步探究额外氧化还原平衡能否提高核黄素产量,在LS55T中于Ptrc启动子控制下染色体整合额外一份sthA,构建菌株SN01T。摇瓶培养中,SN01T在整个培养过程中表现出较亲本菌株LS55T更好的细胞生长和生产效率(图1A和图S3)。核黄素效价达1117.8 mg/L,较LS55T提高9.6%。同时核黄素得率提高至112.5 mg/g葡萄糖,最大OD600从9.4提高至10.6(图1B)。生物量、效价和得率同步提高,与额外sthA表达后氧化还原辅因子平衡改善相一致。第二次sthA整合带来的提升小于从LS51T到LS55T的初始工程步骤,这种递减提示进一步提升需要鉴定氧化还原代谢之外的制约因素。因此选择SN01T作为底盘,利用合成sRNA介导的弱化系统鉴定核黄素提升靶点。
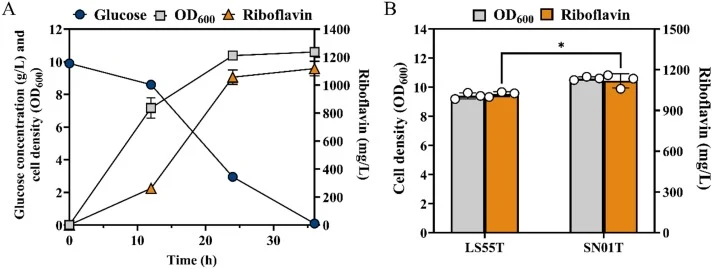
【数据】菌株:LS51T、LS55T、SN01T;LS51T产量:647.9 mg/L;LS55T产量:1020.2 mg/L;LS55T得率:100.0 mg/g葡萄糖;LS55T最大OD600:9.4;提升幅度:57.5%;SN01T产量:1117.8 mg/L;SN01T较LS55T提升:9.6%;SN01T得率:112.5 mg/g葡萄糖;SN01T最大OD600:10.6
3.2 利用合成sRNA系统鉴定并验证核黄素提升靶点
核黄素由Ru5P和GTP合成,二者分别主要由戊糖磷酸途径和嘌呤代谢供应。尽管SN01T中氧化还原辅因子再平衡改善了核黄素产量和细胞生长,但额外sthA整合带来的提升相对温和,提示其他代谢和调控制约仍然存在。因此采用合成sRNA介导的弱化作为一种快速、可调的策略,系统考察参与前体分配、竞争分支途径和更广泛细胞调控的基因(Na et al., 2013)。候选靶点既涵盖与核黄素前体供应直接相关的代谢途径,也涵盖可能影响生产的更广泛生理过程。纳入PPP相关分支基因以及参与嘌呤互变和分支途径的基因,因为它们分别影响核黄素生物合成两个直接前体Ru5P和GTP的分配(Lin et al., 2014; Liu et al., 2021)。此外纳入转录调控因子,因为全局调控网络可显著重塑大肠杆菌中心代谢(Matsuoka & Shimizu, 2011)。纳入与双组分系统、氧化应激响应和氮代谢相关的基因,以探索前体供应之外的生理制约,这基于先前通过呼吸/氧化还原工程和氮调控调节改善核黄素生产的经验(You et al., 2021)。据此从五个功能模块共选取91个候选基因,包括6个PPP相关分支基因、30个参与嘌呤互变和分支途径的基因、21个转录调控因子基因、19个与双组分系统和氧化应激响应相关的基因、15个氮代谢相关基因。完整sRNA文库包括靶基因、功能模块、靶结合序列和预测结合能,列于表S4。每个合成sRNA含一个24 bp靶结合序列,融合于MicC来源的支架(图2B)。靶结合序列选在各靶mRNA翻译起始区域内,该区域与核糖体相互作用,从Shine–Dalgarno序列延伸至起始密码子下游约20–30个核苷酸。靶向该区域旨在干扰翻译起始、弱化靶基因表达。sRNA表达质粒用p20c骨架构建,分别转化SN01T,生成SN01T/pSn文库。携带空p20c载体的SN01T命名为SN01T/pS0,用作对照。全局筛选结果汇总于图2A,圆圈大小和颜色表示相对SN01T/pS0的核黄素产量变化。完整筛选数据集包括全部91个sRNA扰动菌株的核黄素效价和得率,见图S4。在91个测试靶点中,23个基因的sRNA介导弱化使核黄素产量较SN01T/pS0提高20%以上(图2C)。最强的正向效应出现在嘌呤代谢相关靶点中。其中yrfG的sRNA介导弱化使核黄素产量提高至1605.3 mg/L,较SN01T/pS0提高55.4%,得率达155.9 mg/g葡萄糖。pgeF和xdhA的弱化也使核黄素产量提高40%以上。除嘌呤相关靶点外,氮代谢相关靶点nrfA的弱化也显著提高核黄素产量,达1549.0 mg/L,较SN01T/pS0提高50.0%(图2A和C)。PPP模块中也鉴定到正向靶点。talA和rpe的弱化分别使核黄素产量提高32.6%和20.0%,表明非氧化PPP内碳通量重分配可进一步改善前体向Ru5P依赖的核黄素形成的分配。这些结果表明核黄素生产同时受前体相关途径和更广泛细胞调控过程的影响。为将sRNA筛选结果转化为稳定的基因组层面改造,选取五个与Ru5P和GTP分配直接相关的代谢靶点进行个体基因组工程:yrfG、pgeF、xdhA、talA和rpe。这些基因组改造的效果汇总于图2D。对于嘌呤代谢靶点yrfG,直接缺失产生菌株SN02T,其核黄素产量为1242.4 mg/L。虽较SN01T提高,但最大OD600降至9.77,提示yrfG完全缺失对细胞适合度有负面影响。此外SN02T效价显著低于sRNA介导弱化yrfG所得,表明完全缺失并非最优。为精细调节yrfG表达,设计11个预测翻译起始速率递降的RBS变体并引入SN01T背景,产生菌株SN03T–SN13T(相应RBS序列见表S5)。11个变体中有8个显示提高。
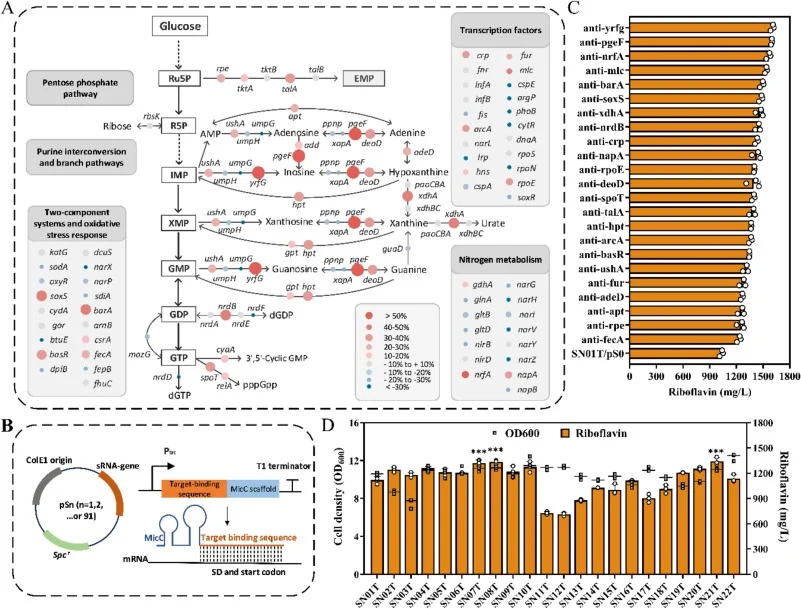
【数据】筛选靶点数:91个;功能模块:5个(PPP分支6、嘌呤互变与分支30、转录调控21、双组分与氧化应激19、氮代谢15);靶结合序列:24 bp;提升>20%的靶点:23个;yrfG弱化产量:1605.3 mg/L(+55.4%);yrfG弱化得率:155.9 mg/g葡萄糖;pgeF/xdhA弱化提升:>40%;nrfA弱化产量:1549.0 mg/L(+50.0%);talA弱化提升:32.6%;rpe弱化提升:20.0%;SN02T(yrfG缺失)产量:1242.4 mg/L;SN02T最大OD600:9.77;yrfG RBS变体数:11个(SN03T–SN13T);显示提高的变体:8个
3.3 组合弱化策略对核黄素产量的影响
在单靶点验证基础上,进一步考察组合弱化策略的效果。图3A显示菌株SN21T–SN24T的核黄素产量和细胞密度(OD600)。SN23T和SN24T代表在rpe弱化背景下测试的两个talA RBS变体。图3B显示携带不同组合改造的菌株的核黄素产量和细胞密度。
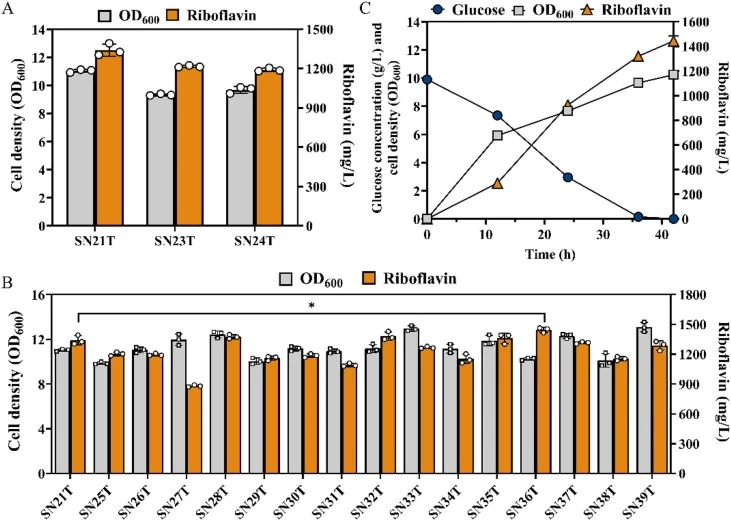
【数据】菌株:SN21T–SN24T;考察指标:核黄素产量、OD600;talA RBS变体:2个(SN23T、SN24T);背景:rpe弱化;具体数值:原文节选未详述
3.4 nrfA靶向sRNA调控模块的优化
图4A为pRFA及工程化nrfA靶向sRNA表达盒的示意图,展示了TBS0–TBS3在nrfA mRNA中的相对靶区域。图4B显示不同构建体的核黄素产量和细胞密度(OD600)。
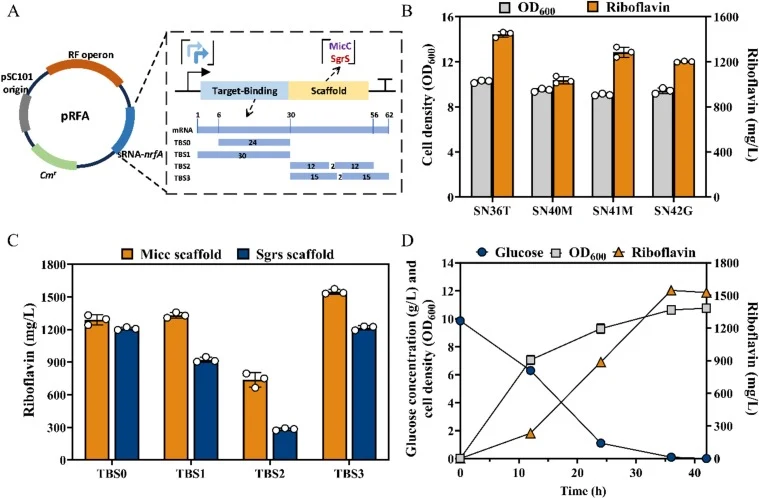
【数据】调控元件:启动子、靶结合序列(TBS0–TBS3)、sRNA支架;靶基因:nrfA;考察指标:核黄素产量、OD600;具体数值:原文节选未详述
3.5 逐步菌株工程与核黄素生物合成模块的染色体强化
图5A比较了菌株开发过程中代表性菌株的细胞密度(OD600)、核黄素产量和得率,包括LS55T、SN01T、SN21T、SN36T、SN45M和SN49M。图5B为摇瓶发酵结果。
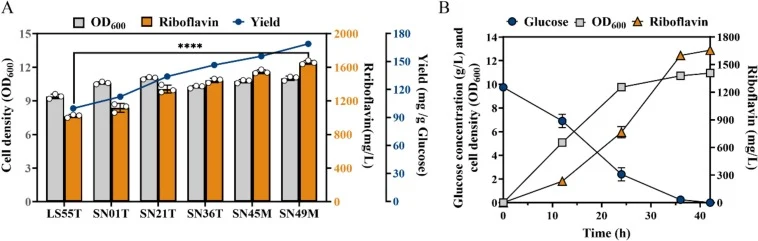
【数据】菌株:LS55T、SN01T、SN21T、SN36T、SN45M、SN49M;考察指标:OD600、核黄素产量、得率;具体数值:原文节选未详述
3.6 SN49M补料分批发酵
图6为SN49M的补料分批发酵曲线,包括葡萄糖浓度、细胞生长(OD600)、乙酸积累和核黄素产量。结合摘要与结论数据,SN49M在摇瓶培养46 h产量达3153.3 mg/L,得率193.4 mg/g葡萄糖;补料分批发酵72 h内产量达20.5 g/L,最大OD600为98.6,总得率178.9 mg/g葡萄糖。
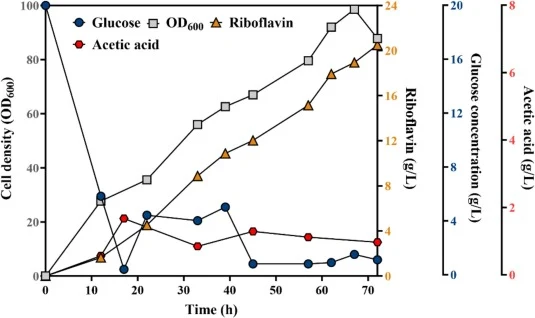
【数据】菌株:SN49M;摇瓶产量:3153.3 mg/L(46 h);摇瓶得率:193.4 mg/g葡萄糖;补料分批产量:20.5 g/L(72 h);最大OD600:98.6;总得率:178.9 mg/g葡萄糖;监测指标:葡萄糖、OD600、乙酸、核黄素
讨论与解读
本研究采用已建立的合成sRNA策略,系统鉴定并优化了大肠杆菌中与核黄素生产相关的代谢和调控靶点。跨五个功能模块筛选91个基因,鉴定出多个与戊糖磷酸途径、嘌呤代谢、转录调控、应激响应和氮代谢相关的有益靶点。基因组层面验证进一步表明,代谢弱化的效果强烈依赖于扰动强度。rpe与yrfG的组合弱化通过结合PPP和嘌呤相关途径的扰动进一步提高了核黄素产量,而nrfA靶向sRNA表达盒的优化表明启动子、支架和靶结合序列共同决定调控结果。随后核黄素操纵子的染色体强化和培养基优化使SN49M在摇瓶培养中产量达3153.3 mg/L,得率193.4 mg/g葡萄糖。补料分批发酵中,SN49M在72 h内生产20.5 g/L核黄素,最大OD600为98.6,总得率178.9 mg/g葡萄糖。据我们所知,这是已报道的微生物核黄素生产的最高葡萄糖基总得率。总体而言,本工作建立了一个有效框架,整合基于sRNA的系统靶点筛选、基因组层面验证和调控精细优化。
编译者解读:该研究的亮点在于用sRNA做"可调弱化"而非直接敲除——yrfG缺失虽提产却损伤适合度,而RBS梯度与sRNA强度调节找到了表达窗口,这对合成生物学中"必需基因/适合度基因"的精细调控很有借鉴意义。组合弱化rpe与yrfG体现了前体分配的多节点协同。局限在于筛选仍依赖摇瓶逐株验证,通量有限;sRNA文库的脱靶效应原文未系统评估。得率178.9 mg/g已接近理论瓶颈,后续或需从能量代谢与辅因子供给再挖空间。
参考来源
期刊:Bioresource Technology, 2027
DOI: 10.1016/j.biortech.2026.136087
DOI: 10.1016/j.biortech.2026.136087