来源:Crystal structure and molecular mechanism underlying broad specificity of racemase RacX from Bacillus subtilis(Journal of Structural Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
细菌D-氨基酸参与细胞壁肽聚糖构建、细胞形态维持与宿主免疫互作,其合成依赖氨基酸消旋酶。枯草芽孢杆菌RacX是一种不依赖PLP的广谱消旋酶,可催化15种氨基酸消旋,却偏好碱性底物、排斥酸性底物,其结构基础此前不明。本文通过1.73 Å与1.53 Å两个晶型的晶体结构解析,结合定点结构比较与酶活抑制实验,揭示了活性位点电荷性质与柔性盖子环决定底物谱的分子机制。
研究背景
细菌中D-氨基酸的生理功能近年逐渐清晰。它们是细胞壁肽聚糖层与肽类抗生素的组成单元——除典型的D-丙氨酸和D-谷氨酸外,D-丝氨酸、D-天冬氨酸、D-赖氨酸等也可作为肽聚糖组分。这些D-氨基酸参与维持细胞形状与结构,并赋予细菌对多种环境胁迫的耐受能力;肽聚糖代谢与生物膜分散亦受其影响。此外,D-氨基酸还介导细菌与动物宿主之间的免疫相关互作,例如益生菌产生的D-色氨酸可抑制过敏性气道炎症的发生。
D-氨基酸主要由氨基酸消旋酶从对应的L-氨基酸合成,该酶催化α-碳构型翻转。消旋酶分为研究较充分的PLP依赖型与表征较少的PLP非依赖型两大类。后者中,谷氨酸消旋酶与天冬氨酸消旋酶研究最为深入。枯草芽孢杆菌RacX属于PLP非依赖型消旋酶,但具有广谱特性:优先转化精氨酸、赖氨酸等碱性氨基酸,共可消旋15种不同氨基酸。这种宽底物谱的分子基础此前知之甚少。本文即针对该问题开展结构生物学研究。
研究方法
2.1 化学试剂
L-鸟氨酸(L-Orn)购自Peptide Institute(日本大阪);邻苯二甲醛(OPA)、咪唑与草氨酸盐购自FUJIFILM Wako Pure Chemical Corporation;N-叔丁氧羰基-L-半胱氨酸(Boc-L-Cys)购自Novabiochem(瑞士Läufelfingen)。其余所有化学试剂均为市售最高等级。
【数据】试剂:L-Orn、OPA、咪唑、草氨酸盐、Boc-L-Cys;纯度等级:市售最高等级;其余参数:原文未详述
2.2 RacX的表达与纯化
将携带racX基因的表达载体pET28b转化至大肠杆菌BL21 (DE3) pLysS细胞(Miyamoto et al., 2017)。转化子在含20 μg/mL卡那霉素的溶菌肉汤培养基中于37 °C培养,至OD600达到0.5–0.6时,向培养基中加入1 mM异丙基-β-D-硫代半乳糖苷。随后在37 °C继续培养3 h。收集的细胞重悬于含500 mM NaCl的20 mM磷酸钠缓冲液(pH 7.4)中,使用Sonifier 250超声破碎仪(Branson,美国Danbury)超声处理。裂解液于4 °C、20,000 ×g离心10 min,向上清中加入50 mM咪唑。重组RacX使用His SpinTrap柱(Cytiva,日本东京)纯化。柱子用含500 mM NaCl和50 mM咪唑的20 mM磷酸钠缓冲液(pH 7.4)洗涤,重组蛋白用含500 mM NaCl和500 mM咪唑的20 mM磷酸钠缓冲液(pH 7.4)洗脱。洗脱的蛋白组分使用Amicon Ultra-0.5离心超滤装置(10 K,Merck,德国Darmstadt)换液至20 mM Tris-HCl(pH 8.0,用于结晶)或含10%甘油的50 mM Tris-HCl(pH 8.0,用于酶活测定)。蛋白浓度使用Bio-Rad Protein assay(Bio-Rad,美国Hercules)以牛血清白蛋白为标准品测定。蛋白纯度通过十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)验证。
【数据】菌株:大肠杆菌BL21 (DE3) pLysS;载体:pET28b;抗生素:20 μg/mL卡那霉素;诱导:OD600 0.5–0.6时加1 mM IPTG;诱导温度/时间:37 °C、3 h;缓冲液:20 mM磷酸钠+500 mM NaCl(pH 7.4);洗脱:500 mM咪唑;离心:20,000 ×g、10 min、4 °C;超滤截留:10 K
2.3 酶活测定
氨基酸消旋酶活性通过测定相应D-氨基酸的生成量确定,方法同前所述(Miyamoto et al., 2017)。标准反应体系(150 μL)含50 mM Tris-HCl(pH 8.5)、20 mM L-Orn、1 mM二硫苏糖醇(DTT)及纯化酶(50 μg)。咪唑和/或草氨酸盐按需加入至终浓度20 mM。反应液于37 °C孵育2 h,加入600 μL甲醇终止反应。氨基酸用OPA/Boc-L-Cys衍生化,取10 μL进样至LC-4000系列高效液相色谱(HPLC)系统(Jasco Corp.,日本东京)。氨基酸衍生物在Mightysil RP-18GP柱(150 × 4.6 mm内径;Kanto Chemical Co.,日本东京)上分离。以50 mM乙酸钠缓冲液(pH 6.0)与乙腈梯度洗脱,流速1 mL/min。乙腈线性梯度10%至29.5%运行15 min,随后29.5%乙腈再运行20 min。激发与发射波长分别为344和443 nm。
【数据】反应体积:150 μL;缓冲液:50 mM Tris-HCl(pH 8.5);底物:20 mM L-Orn;DTT:1 mM;酶量:50 μg;抑制剂:咪唑/草氨酸盐各20 mM;温度/时间:37 °C、2 h;终止:600 μL甲醇;进样量:10 μL;流速:1 mL/min;梯度:10%→29.5%乙腈/15 min,29.5%乙腈/20 min;激发/发射:344/443 nm
2.4 晶体学
#### 2.4.1 结晶
结晶试验按悬滴气相扩散法于293 K设置。48孔VDX板(Hampton Research,美国)的储液池手工加入200 μL结晶筛选液,液滴体积2.0 μL,由1.0 μL蛋白与1.0 μL储液组成。Type-I晶体通过将1.0 μL蛋白溶液(10 mg/mL)与等体积Morpheus筛选液ID 2–25混合培养,该筛选液含30%沉淀剂混合物(20%(v/v)PEG500MME与10%(w/v)PEG20000)、各0.02 M的羧酸(甲酸钠、乙酸铵、柠檬酸三钠、酒石酸钾钠或草酸钠)以及0.1 M MES-咪唑缓冲液(pH 6.5)。Type-II晶体通过将1.0 μL含30 mM Lys的蛋白溶液(9 mg/mL)与等体积Morpheus筛选液ID 1–16混合培养,该筛选液含37.5%沉淀剂混合物(12.5%(v/v)MPD、12.5%(w/v)PEG1000与12.5%(w/v)PEG3350)、各0.03 M的卤化物(氟化钠、溴化钠或碘化钠)以及0.1 M MES-咪唑缓冲液(pH 6.5)。
【数据】方法:悬滴气相扩散;温度:293 K;储液体积:200 μL;液滴:2.0 μL(1.0 μL蛋白+1.0 μL储液);Type-I蛋白浓度:10 mg/mL;Type-I沉淀剂:20%(v/v)PEG500MME+10%(w/v)PEG20000;Type-I添加剂:0.02 M羧酸;Type-I缓冲液:0.1 M MES-咪唑(pH 6.5);Type-II蛋白浓度:9 mg/mL;Type-II添加:30 mM Lys;Type-II沉淀剂:12.5%(v/v)MPD+12.5%(w/v)PEG1000+12.5%(w/v)PEG3350;Type-II卤化物:0.03 M
#### 2.4.2 X射线数据收集
对于Type-I晶体的低温数据收集,向液滴中加入1.0 μL收获液[100%甘油与储液按3:7混合]。将液滴中的Type-I晶体 mounted 于尼龙环上,液氮速冻后装入Unipuck。Type-II晶体则直接从液滴中mount于尼龙环,液氮速冻后装入Unipuck。数据在100 K下以旋转法收集,使用Photon Factory的DECTRIS EIGER X 4 M探测器(BL1A)与DECTRIS PILATUS3 S6M探测器(BL5A)。Laue群与晶胞参数使用xia2/DIALS软件包确定(Winter et al., 2018)。所得数据汇总于表1。同步辐射实验在Photon Factory结构生物学光束线(1A、5A)完成(提案编号:2024G035)。
【数据】低温:100 K;防冻液:甘油:储液=3:7;探测器:DECTRIS EIGER X 4M(BL1A)、DECTRIS PILATUS3 S6M(BL5A);光源:Photon Factory BL1A/BL5A;提案编号:2024G035;软件:xia2/DIALS
#### 2.4.3 结构解析
RacX Type-I晶体的初始相位通过分子置换法确定,以来自Pyrococcus horikoshii OT3的PLP非依赖型天冬氨酸消旋酶(PhRacD)(Liu et al., 2002)(PDB ID: 1JFL)的坐标集为搜索模型,使用ccp4套件(Collaborative Computational Project, No. 4, 1994)中的MOLREP程序(Vagin and Teplyakov, 2010)。1.73 Å分辨率的模型搭建与精修使用ARP/wARP(Morris et al., 2003)、REFMAC5(Murshudov et al., 2011)与COOT(Emsley and Cowtan, 2004)程序完成。模型立体化学使用RAMPAGE程序(Lovell et al., 2003)验证。Type-I晶体的精修模型随后作为Type-II晶体结构精修的模板。Type-II晶体模型在1.53 Å分辨率下精修。RacX的结构同源物使用DALI服务器搜索(Holm, 2020)。基于结构的多序列比对使用PROMALS3D完成(Pei et al., 2008)。Type-I与Type-II晶体的精修统计汇总于表2。所报道结构的原子坐标集已存入蛋白质数据库,登录码为46KC(Type-II晶体:RacX无配体形式)与46KD(Type-I晶体:RacX–草氨酸盐–咪唑复合物)。结构比较与分子图制作使用UCSF Chimera X(Meng et al., 2023)。
【数据】初始相位:分子置换(搜索模型PDB 1JFL);Type-I分辨率:1.73 Å;Type-II分辨率:1.53 Å;软件:MOLREP、ARP/wARP、REFMAC5、COOT、RAMPAGE、DALI、PROMALS3D、UCSF Chimera X;PDB登录码:46KC(无配体)、46KD(草氨酸盐–咪唑复合物)
研究结果
3.1 RacX的整体结构
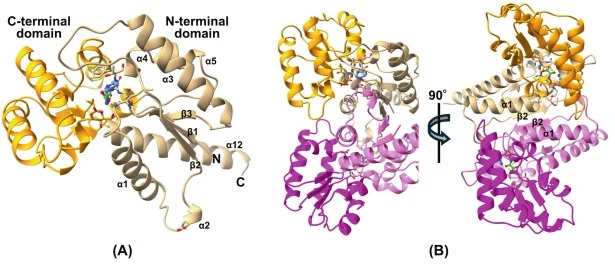
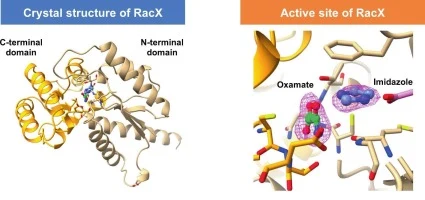
RacX的晶体结构分别在1.73 Å(Type-I)与1.53 Å(Type-II)分辨率下解析。两种晶型虽由不同结晶条件获得,但晶胞常数相似,属同一空间群(表2)。两种晶型的非对称单元均含两个RacX亚基,表明RacX以二聚体形式发挥功能。这与Blue-Native PAGE分析结果一致(Miyamoto et al., 2017)。正如氨基酸序列同一性所预期,RacX整体结构与PhRacD相似(27%氨基酸序列同一性),后者被用作分子置换法相位确定的搜索模型。RacX模型搭建与结构精修完成后,使用DALI服务器进行结构同源物搜索(Holm, 2020)。该分析鉴定出与RacX结构相似度高于PhRacD(无配体形式,1JFL,对RacX的RMSD为2.6 Å)的酶(RMSD <2.0 Å)。与RacX结构最相似的是3S7Z(鼠伤寒沙门菌推定天冬氨酸消旋酶,琥珀酸结合形式),其次是2DX7(PhRacD,柠檬酸结合形式)(Ohtaki et al., 2008)与5B19(Picrophilus torridus天冬氨酸消旋酶,酒石酸结合形式)(Aihara et al., 2016)。RacX原体由两个相似的α/β结构域组成:N端结构域(残基1–102与210–232)与C端结构域(残基103–209)(图1A)。两结构域通过假2重对称相关。每个结构域由中央三条平行β-折叠构成,两侧各排列三个α-螺旋。在RacX二聚体中,N端结构域似乎有助于稳定二聚体状态。一个原体的第二条β链(β2)与另一原体的β2相互作用,在二聚体界面形成反平行β-折叠。此外,一个原体的第一个α-螺旋(α1)通过疏水相互作用与另一原体的α1接触(图1B)。PhRacD的晶体结构分析(Liu et al., 2002; Ohtaki et al., 2008)表明,这些酶中底物结合诱导结构变化,使结构域相对排布从开放构象(PDB ID: 1JFL)转变为闭合构象(PDB ID: 2DX7)。就RacX而言,Type-I与Type-II晶体中RacX的主链结构非常相似(图S1A),仅在C端区域观察到细微结构差异,且两者均对应PhRacD中观察到的闭合构象。
【数据】分辨率:Type-I 1.73 Å、Type-II 1.53 Å;空间群:两种晶型相同;非对称单元:2个亚基;序列同一性:与PhRacD 27%;RMSD:PhRacD 2.6 Å、同源物<2.0 Å;结构域:N端(1–102、210–232)、C端(103–209);最相似结构:3S7Z,其次2DX7、5B19
3.2 RacX的活性位点
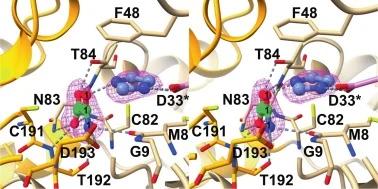
RacX的活性位点位于原体两结构域之间的裂隙中。两个在半乳糖消旋酶中高度保守的半胱氨酸残基Cys82与Cys191位于活性位点中心,通过关联N端与C端结构域的假2重轴满足假对称性。两个半胱氨酸残基各自硫原子之间的距离在Type-I与Type-II晶体中分别为7.7与7.3 Å。在Type-I晶体精修过程中,活性位点处观察到两个电子密度簇,二者均呈平面分子状,无法归属为水分子(图2)。考虑到簇的大小与形状,以及用于RacX纯化与结晶的溶液成分,我们推断其中一个簇与草氨酸盐一致——它是羧酸混合物组分的成分,另一个为咪唑——它是Morpheus筛选液2–25中缓冲液组分的成分。为确认草氨酸盐与咪唑是否结合于RacX活性位点,在草氨酸盐、咪唑或二者同时存在下测定了RacX对L-Orn的消旋酶活性(表3与图S2)。如表3所示,草氨酸盐或咪唑存在时RacX活性均显著受抑制,表明两种化合物均可结合于RacX活性位点。相比之下,Type-II晶体的活性位点裂隙被水分子占据,尽管晶体是在30 mM L-Lys(RacX的优良底物/产物)存在下生长的(图S1B)。将草氨酸盐与RacX的结合模式同有机酸(琥珀酸结合的3S7Z、柠檬酸结合的2DX7(Ohtaki et al., 2008)与酒石酸结合的5B19(Aihara et al., 2016))及氨基酸(Asp结合的5HRC(Liu et al., 2016)与Glu结合的5ELM(Ahn et al., 2015))同RacX结构相似酶的结合模式进行比较,发现草氨酸盐是氨基酸主链的更佳类似物(图S3)。具体而言,草氨酸盐的N1原子与羧基分别对应氨基酸主链的氨基与羧基,而草氨酸盐的C1原子对应氨基酸的α-碳(图2)。草氨酸盐的N1原子被Thr192的OG1原子与Met8-Gly9顺式肽键的羰基氧识别。此外,草氨酸盐的一个羧基氧被Asn83与Thr192的主链NH基团识别,另一个羧基氧被Thr84的侧链OH与主链NH识别。草氨酸盐分子位于假2重对称中心,Cys82与Cys191两个Cys残基位于草氨酸盐C1原子两侧大致等距处。假设后者位置对应结合于RacX的氨基酸的α-碳位置,这一空间排布解释了为何RacX催化的消旋反应可双向进行。因此,我们提出RacX催化的可逆消旋反应机制与PhRacD催化者等效(Ohtaki et al., 2008),其中两个半胱氨酸残基作为酸碱催化剂发挥关键作用。随后,我们聚焦于咪唑的结合模式,将其解释为与草氨酸盐共同结合于活性位点。观察到咪唑位于Met8-Gly9(在PLP非依赖型消旋酶活性位点中保守)的顺式肽键平面与Phe48侧链之间(图2)。该位点对应PhRacD活性位点中的氨基酸侧链结合位点。咪唑的一个氮原子与草氨酸盐的酰胺氧(O1)形成氢键,另一个氮原子与属于二聚体另一亚基的Asp33残基侧链形成氢键(以下简称Asp33*,图2)。
【数据】关键残基:Cys82、Cys191;硫原子间距:Type-I 7.7 Å、Type-II 7.3 Å;抑制剂浓度:草氨酸盐/咪唑各20 mM;L-Lys浓度:30 mM;氢键供体:Thr192 OG1、Met8-Gly9羰基氧、Asn83/Thr192主链NH、Thr84侧链OH/主链NH;咪唑氢键:草氨酸盐O1、Asp33*侧链
3.3 RacX的宽底物偏好
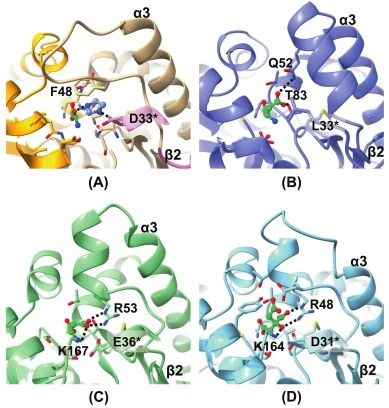
RacX是一种具有宽底物特异性的氨基酸消旋酶,优先作用于Arg、Lys等碱性氨基酸,而对Asp、Glu等酸性氨基酸无活性(Miyamoto et al., 2017)。RacX这种偏好正电荷、排斥负电荷的较明确电荷偏好,可由活性位点中氨基酸侧链的排布解释。在RacX活性位点的氨基酸侧链结合位点处,属于二聚体另一亚基的Asp33*促进带正电荷氨基酸侧链的结合,同时抑制带负电荷氨基酸侧链的结合(图2与图3A)。RacDs的晶体结构分析揭示,这些酶活性位点对酸性氨基酸的精确识别通过精细的氢键网络(Asp结合的Escherichia coli YgeA(EcYgeA),5HRC,图3B(Liu et al., 2016)与Glu结合的5ELM(Ahn et al., 2015))或与碱性侧链的相互作用(Asp结合的Microcystis aeruginosa RacD(MaRacD),5WXY,图3C(Cao et al., 2019)与Glu结合的5XNJ)实现。此外,已有研究……
【数据】底物谱:共15种氨基酸;偏好底物:Arg、Lys等碱性氨基酸;无活性底物:Asp、Glu等酸性氨基酸;关键识别残基:Asp33*;对照结构:EcYgeA 5HRC、MaRacD 5WXY、5XNJ、5ELM
3.4 结构比对与柔性盖子
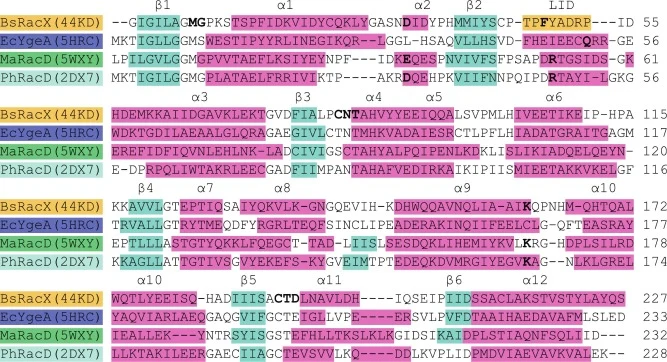
基于结构的氨基酸序列比对显示,PLP非依赖型消旋酶的二级结构元件高度保守(图4)。RacX与RacDs之间的一个显著差异位于β2与α3之间覆盖活性位点的区域。在RacD中,该区域采用螺旋构象;而RacX中对应区域形成柔性环,从而允许容纳更广泛的底物。
【数据】比对结构:PLP非依赖型消旋酶;差异区域:β2–α3之间;RacD构象:螺旋;RacX构象:柔性环;原文未详述其他数值
讨论与解读
RacX的晶体结构分析为其反应机制提供了新见解,并揭示了可能造成该酶宽底物特异性特征的分子机制。活性位点残基(包括两个Cys残基)的假2重旋转对称性,解释了RacX消旋酶催化活性的可逆性。RacX与RacDs(催化酸性氨基酸消旋的酶类型)的结构比较表明,RacX基于电荷的特异性(不接受酸性氨基酸为底物、偏好碱性氨基酸)由活性位点中碱性侧链的有无决定。此外,我们认为RacX能容纳多样底物的原因在于覆盖活性位点的盖子由柔性环结构组成。阐明RacX底物广谱性的分子基础可为定制酶工程与基于结构的药物设计提供依据。
编译者解读:该研究以两个晶型(1.73 Å与1.53 Å)捕捉了RacX的闭合构象,并用草氨酸盐/咪唑双配体占位巧妙标定了α-碳与侧链结合口袋的空间关系。Asp33的电荷门控与β2–α3柔性盖子两项结构要素,为合成生物学中消旋酶底物谱改造提供了明确的突变靶点——删除或替换Asp33有望打开酸性底物通道,而将柔性环置换为螺旋则可能收窄底物谱以提高选择性。局限在于本文以静态结构推断机制,未提供突变体的动力学验证,且柔性环的构象系综仍待溶液态方法补充。
参考来源
期刊:Journal of Structural Biology, 2026
DOI: 10.1016/j.jsb.2026.108387
DOI: 10.1016/j.jsb.2026.108387