来源:Heme-proximal loop dynamics modulate Mn(II) oxidation in Pseudomonas putida MET94 DyP-type peroxidase(Journal of Biological Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
细菌DyP型过氧化物酶是木质纤维素增值转化的重要 biocatalyst 候选,但其Mn(II)氧化活性的结构基础长期不清楚。本文解析了恶臭假单胞菌PpDyP与Mn(II)结合的晶体结构(2.43 Å),鉴定出由E135、E188、E204构成的血红素近端Mn结合位点,并发现非配位残基E209突变为丙氨酸后,表观Mn(II)氧化转换数提升约5倍。结合结构、分子动力学与动力学实验,作者提出"环区网络调控"策略,并证明Mn(II)可使PpDyP对木质素相关底物的氧化速率最高提升100倍。
研究背景
酶促Mn(II)氧化既参与自然界木质素降解,也与新型工业生物催化剂的开发相关。DyP型过氧化物酶在木质纤维素增值利用中潜力可观,然而决定其Mn(II)氧化活性的结构要素仍未被完整认识。PpDyP来自恶臭假单胞菌MET94,前期已获得无底物结合形式的结构(PDB 7QYQ),但Mn(II)结合位点的位置、残基组成以及环区如何影响催化,均缺乏直接证据。与细菌Rhodococcus jostii DyP中已被提出的Mn(II)结合酸性残基patch(E156、E215、E239,金属-残基距离4.0–4.7 Å,配位球由水分子补全)相比,PpDyP是否存在对应位点、其环区构架是否赋予不同的调控方式,是本研究要回答的问题。作者由此切入:先解结构定位Mn结合位点,再用定点突变与稳态动力学拆解各残基贡献,最后通过E209A变体检验环区柔性与血红素暴露对催化的影响。
研究方法
菌株、质粒与培养基。 使用大肠杆菌Tuner(DE3,Novagen)表达ppDyP基因,该基因此前已克隆至pET15b(+)质粒(Novagen)。在Tuner菌株中,基因受T7启动子控制,由IPTG诱导表达。大肠杆菌DH5α(Novagen)用于扩增质粒构建体。大肠杆菌菌株用LB培养基培养,补加100 μg mL⁻¹氨苄青霉素。
【数据】菌株:E. coli Tuner(DE3)、DH5α;质粒:pET15b(+);抗生素:氨苄青霉素100 μg mL⁻¹;培养基:LB;诱导剂:IPTG
定点突变构建PpDyP变体。 单氨基酸替换采用QuikChange定点突变方案构建。以含ppDyP和ppDyP_E209A基因的pET15b(+)质粒为模板,使用相应引物(表S8)。PCR在50 μl反应体系中进行,含3 ng DNA模板、2 μM引物、200 μM dNTPs、NZYProof聚合酶缓冲液和1.25 U NZYProof聚合酶(NZYTech)。94 °C初始变性5 min后,在热循环仪(MyCycler,Biorad)中按以下步骤循环25次:94 °C 1 min,57–72 °C 2 min,72 °C 8 min,最后72 °C延伸10 min。变体F229L、F239L和Y268L为例外,其PCR在50 μl体系中进行,含3 ng DNA模板、2 μM引物和1× Platinum SuperFi II Green PCR Master Mix(ThermoFisher)。98 °C初始变性30 s后,在热循环仪(MyCycler,Bio-Rad)中按以下步骤循环35次:98 °C 10 s,60 °C 10 s,72 °C 4 min,最后72 °C延伸10 min。扩增产物用GFX PCR DNA and Gel Band Purification Kit(GE Healthcare)纯化。最终PCR产物先用DpnI(Thermo Scientific)消化以去除野生型模板。消化产物转化电感受态大肠杆菌DH5α细胞。DNA测序确认所得质粒含目标突变,且插入片段其他区域无意外突变。含ppDyP基因的质粒转化至大肠杆菌Tuner菌株。重组PpDyP变体在T7lac启动子控制下生产。
【数据】模板DNA:3 ng;引物:2 μM;dNTPs:200 μM;NZYProof:1.25 U;循环:25次(94 °C 1 min/57–72 °C 2 min/72 °C 8 min);例外变体:F229L、F239L、Y268L用Platinum SuperFi II,35次循环(98 °C 10 s/60 °C 10 s/72 °C 4 min);消化酶:DpnI
酶生产与纯化。 重组酶在0.5 L LB培养基中于2 L-SHOTT挡板锥形瓶(SHOTT)中生产并纯化。细胞沉淀悬浮于20 mM Tris–HCl缓冲液、20 mM咪唑、pH 7.6中,含DNase I(10 μg mL⁻¹提取物)、MgCl₂(5 mM)以及蛋白酶抑制剂混合物antipain和leupeptin(2 μg mL⁻¹提取物)。细胞在French press(Thermo EFC)中破碎。细胞碎片经离心(18,000×g,2 h,4 °C)去除,所得粗提物用于在AKTA purifier(GE Healthcare, BioSciences)上室温纯化蛋白。为纯化PpDyP野生型及其变体,粗提物上样至用20 mM Tris–HCl、pH 7.6、含20 mM咪唑平衡的HisTrap(Cytiva)柱。用缓冲液中1 M咪唑洗脱。用于结晶实验时,PpDyP进一步用6 ml RESOURCE Q阴离子交换色谱柱(Cytiva)纯化,柱先用20 mM Tris-HCl、pH 7.6平衡。用缓冲液中1 M NaCl洗脱。合并含PpDyP的组分,进行SDS-PAGE评估纯度。纯化蛋白于−20 °C保存。纯化蛋白浓度用PpDyP的摩尔吸光系数(ε280 = 34,850 M⁻¹ cm⁻¹)估算,该系数由蛋白序列经ExPASy Bioinformatics Resource Portal(http://web.expasy.org)计算。
【数据】培养体积:0.5 L LB;悬浮缓冲液:20 mM Tris–HCl、20 mM咪唑、pH 7.6;DNase I:10 μg mL⁻¹;MgCl₂:5 mM;antipain/leupeptin:2 μg mL⁻¹;离心:18,000×g、2 h、4 °C;洗脱:1 M咪唑;阴离子交换洗脱:1 M NaCl;保存温度:−20 °C;ε280 = 34,850 M⁻¹ cm⁻¹
光谱分析。 室温下,纯化酶的紫外–可见吸收光谱在Nicolet Evolution 300分光光度计(Thermo Scientific)上记录。血红素含量用吡啶血色原法测定,采用556 nm处εR-O = 28.32 mM⁻¹ cm⁻¹的消光系数(36)。
【数据】仪器:Nicolet Evolution 300;方法:吡啶血色原法;检测波长:556 nm;消光系数:28.32 mM⁻¹ cm⁻¹
表观稳态动力学分析。 对还原性底物2,2′-联氮-双(3-乙基苯并噻唑啉-6-磺酸)(ABTS)和四水合氯化锰(II)估算表观动力学参数(kcat和Km),使用Synergy2酶标仪(BioTek)于25 °C测定。Mn(II)氧化通过Mn(III)–乳酸复合物的形成监测,该复合物可稳定酶促生成的Mn(III),检测波长270 nm(Mn(III) + Lactate,ε270nm = 3.5 mM⁻¹ cm⁻¹)。Mn(II)反应(0.01–100 mM)在100 mM乳酸钠缓冲液、pH 6.0、含0.5 mM H₂O₂中进行。ABTS氧化在420 nm监测(ABTS,ε420nm = 36,000 M⁻¹ cm⁻¹),动力学参数用ABTS(0.1–3 mM)在100 mM乙酸钠缓冲液、pH 4.3、含0.5 mM H₂O₂条件下测定。用于测定动力学参数的酶浓度按各变体血红素含量校正。动力学数据用Origin软件直接拟合至Michaelis–Menten方程。
【数据】温度:25 °C;Mn(II)浓度:0.01–100 mM;缓冲液:100 mM乳酸钠、pH 6.0;H₂O₂:0.5 mM;检测:270 nm,ε270nm = 3.5 mM⁻¹ cm⁻¹;ABTS:0.1–3 mM,420 nm,ε420nm = 36,000 M⁻¹ cm⁻¹,100 mM乙酸钠、pH 4.3;拟合:Michaelis–Menten,Origin
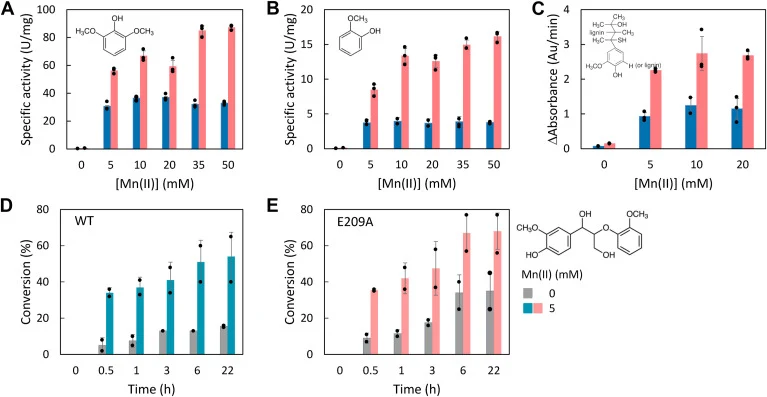
木质素模型化合物与碱木质素氧化。 木质素模型化合物2,6-二甲氧基苯酚(DMP)、愈创木酚以及碱法Kraft木质素(Sigma-Aldrich)的酶促氧化在100 mM乳酸钠缓冲液(pH 6.0)、含0.5 mM H₂O₂、25 °C条件下进行。DMP、愈创木酚和碱木质素反应在不加或加入MnCl₂(5–50 mM)条件下开展。DMP和愈创木酚氧化分别于468 nm(ε468 = 49,600 M⁻¹ cm⁻¹)和465 nm(ε465 = 26,600 M⁻¹ cm⁻¹)分光光度监测。碱木质素氧化以465 nm吸光度变化速率(ΔA465 min⁻¹)监测。对碱木质素,由于更高Mn(II)浓度下底物沉淀,未评估高于20 mM的MnCl₂浓度。Kraft木质素的摩尔浓度按平均分子质量10,000 Da估算。愈创木基甘油-β-愈创木基醚(GGE)氧化在100 mM乳酸钠缓冲液(pH 6.0)、含2.5 mM H₂O₂、25 °C条件下,在不加或加入MnCl₂(5 mM)条件下进行,并用HPLC分析。在指定时间点,加入等体积甲醇终止反应,离心(17,000×g,5 min),上清液进行HPLC分析(30)。用于测定酶活性的酶浓度按各变体血红素含量校正。
【数据】缓冲液:100 mM乳酸钠、pH 6.0;H₂O₂:0.5 mM(GGE用2.5 mM);温度:25 °C;MnCl₂:5–50 mM(碱木质素≤20 mM);DMP检测:468 nm,ε468 = 49,600 M⁻¹ cm⁻¹;愈创木酚/碱木质素检测:465 nm,ε465 = 26,600 M⁻¹ cm⁻¹;木质素平均分子质量:10,000 Da;离心:17,000×g、5 min
结晶与冷冻保护。 PpDyP野生型和E209A变体(10–15 mg mL⁻¹,于20 mM Tris-HCl、pH 7.6、200 mM NaCl中)的结晶筛选使用Molecular Dimensions(英国Sheffield)的商业筛选试剂盒Structure Screen 1 + 2 HT-96(MD1-30)和JCSG-plus(MD1-37)。气相扩散结晶滴用Mosquito机器人(SPT Labtech)和96孔坐滴iQ板(SPT Labtech)设置,按2:1、1:1和1:2的蛋白:池液比例混合,池液体积40 μl。晶体在20 °C下2天内生成,最佳结晶条件为:0.1 M乙酸钠pH 4.6、8%(w/v)PEG 4000,以及0.2 M六水合氯化镁、0.1 M Tris pH 8.5、30%(w/v)PEG 4000——来自Structure Screen 1 + 2;0.2 M二水合甲酸镁、20%(w/v)PEG 3350,以及0.2 M硫氰酸钠、20%(w/v)PEG 3350——来自JCSG-plus。结晶命中条件在微升尺度上用悬滴气相扩散在XRL 24孔结晶板(Molecular Dimensions)中优化。最佳晶体在0.1 M二水合甲酸镁、17%(w/v)PEG 3350中获得,蛋白:池液滴比为1:2。晶体挑取后在20 mM MnCl₂中浸泡2–10 min,转入补加17%(v/v)甘油的池液中,随后在液氮中速冻。
【数据】蛋白浓度:10–15 mg mL⁻¹;缓冲液:20 mM Tris-HCl、pH 7.6、200 mM NaCl;温度:20 °C;结晶时间:2天;最佳条件:0.1 M二水合甲酸镁、17%(w/v)PEG 3350,蛋白:池液=1:2;MnCl₂浸泡:20 mM、2–10 min;甘油:17%(v/v)
数据收集与处理。 PpDyP-Mn和E209A-Mn复合物的衍射数据于100 K在ALBA同步辐射光源收集(原文此处节选截断,后续内容未详述)。
【数据】温度:100 K;光源:ALBA synchrotron;其余参数:原文未详述
研究结果
PpDyP含有一个嵌入环区的血红素近端Mn结合位点。 野生型PpDyP酶在大肠杆菌中异源表达并纯化至均一(图S1 A)。PpDyP晶体经Mn(II)浸泡,与金属离子复合的结构解析至2.43 Å分辨率(表S1)。晶体结构中锰离子的氧化态未测定。总体而言,Mn结合结构与无底物形式(PDB 7QYQ)几乎相同,对齐Cα原子的均方根偏差为0.3 Å。PpDyP–Mn单体采用此前描述的典型α+β铁氧还蛋白样折叠(24),晶体结构显示不对称单元中为四聚体组装(图1 A)。在Mn(II) K吸收边以上收集的异常Fourier图确认每个单体血红素进入腔中存在锰离子。锰离子为亚化学计量占据,占有率为0.45至0.70。四条链中,Mn与E135、E188和E204羧基氧原子之间的距离为2.8至5.2 Å(图1 B)。这些观察鉴定出一个位于酸性血红素近端环境中的可重复Mn结合位置,但并未定义常规金属配位球。作为对比,在细菌Rhodococcus jostii DyP的Mn(II)结合位点中,酸性残基距金属4.0至4.7 Å,但配位球由水分子补全(17)。在PpDyP中,2.3 Å分辨率下无法可靠建模等效配位水。尽管如此,与其他该家族酶一样,PpDyP中Mn结合位置位于血红素进入腔内,该腔被认为是从结合底物到卟啉自由基的电子传递路径(24)。锰离子附近的酸性残基位于环绕血红素口袋的环区上:E135位于环L1,E188和E204位于环L2(图1 C和图2)。
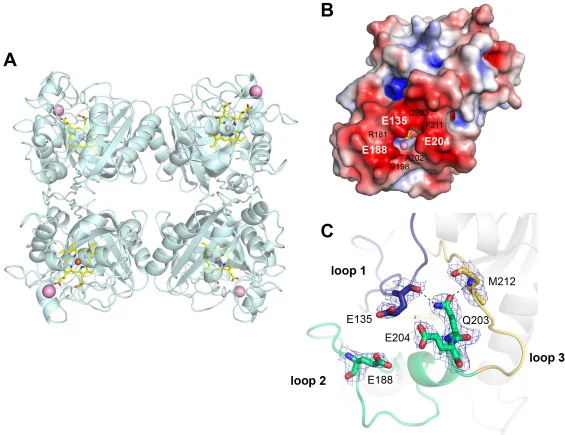
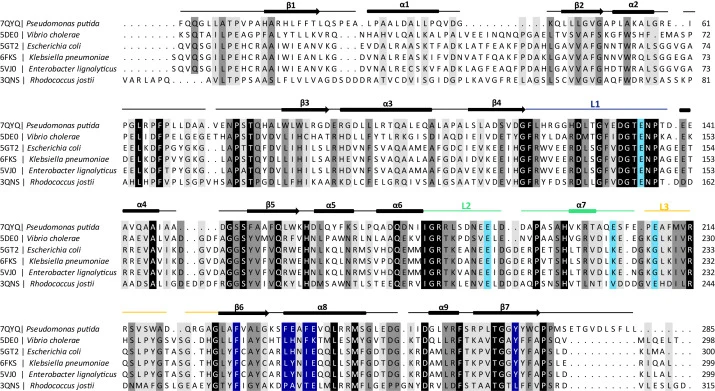
因此,Mn结合位点并非仅由一组酸性侧链定义,而是由血红素近端环区的空间组织定义。这一基于环区的构架进一步得到Q203位置的支撑:Q203在环L2中与E204相邻,与环L1中E135及环L3中M212的主链形成氢键,这些相互作用在全部链中保守。这些相互作用连接血红素腔周围的环L1、L2和L3,提示Mn结合环境嵌入一个环间相互作用网络中。在PpDyP中,其功能相关性由保守催化残基D132和R214的位置凸显——二者分别位于环L1和L3的血红素远端侧,为过氧化物还原所必需。在R. jostii DyP(PDB 4HOV)中,Mn(II)结合位点位于血红素腔附近类似的酸性patch内,由E156、E215和E239定义,并被认为介导从Mn(II)到血红素丙酸基团的直接电子传递(17)。结构比对显示,其中两个残基E156和E215在PpDyP中分别保守为E135和E188(图2)。第三个酸性残基R. jostii DyP中的E239对应PpDyP中的E209——该残基靠近E204但不直接参与Mn(II)结合(见图3)。在多数P类DyP中,对应PpDyP E204和E209的残基为非酸性(图2)。相反,这些酶通常在相当于PpDyP A202的位置含第三个酸性残基(常为天冬氨酸),位于血红素进入腔内。比对结果强调,P类DyP中的Mn(II)结合环境由环区定义的血红素进入区域内酸性残基的空间分布塑造,而非由严格保守的线性序列motif决定。
【数据】结构分辨率:2.43 Å;与PDB 7QYQ的Cα RMSD:0.3 Å;Mn占有率:0.45–0.70;Mn–羧基氧距离:2.8–5.2 Å;R. jostii DyP中酸性残基–金属距离:4.0–4.7 Å;PpDyP建模分辨率下配位水:2.3 Å处未详述
血红素近端位点酸性环区残基协同支持Mn(II)氧化。 Mn(II)氧化通过监测Mn(III)–乳酸复合物形成定量,该复合物提供酶促生成Mn(III)的直接分光光度读数(27)。野生型酶Mn(II)氧化的转换数为2.9 ± 0.2 s⁻¹,与I类和P类细菌DyP的催化活性一致,但低于V类真菌DyP及MnP或VP的报道值(表1和图S2;表S2)。为评估环区嵌入Mn(II)结合区域中鉴定出的酸性残基的功能贡献,将E135、E188和E204分别替换为丙氨酸(图1 B和C,表S3)。所有变体保留特征性UV–Vis光谱,并在加入一当量H₂O₂后形成Compound I,表明所引入突变未破坏血红素掺入或基本过氧化物酶催化循环(图S1和S3,表S3)。Mn(II)动力学分析显示,E135或E188替换导致kcat下降6至15倍,同时Km降低,催化效率无重大损失(表1和图S4)。因此,去除任一残基强烈影响催化转换,同时降低表观Km。由于这些是在固定H₂O₂下测得的表观稳态参数,不能用于将效应归因于Mn(II)结合亲和力或电子传递等特定微观步骤。相比之下,E204替换仅使kcat modest下降,但使Km增加约2倍,导致催化效率总体下降3倍。这些结果表明E204可能贡献于局部Mn(II)氧化环境。然而在此阶段,仅凭稳态动力学数据无法确定该贡献反映的是结构组织、静电效应、底物或金属定位,还是催化循环的其他步骤。结合Mn结合结构(图1 B和C),各变体间一致的kcat和Km变化支持E135、E188和E204具有不同作用。由于PpDyP催化为双底物并遵循ping-pong机制(21),固定H₂O₂下测得的表观Km不应解释为直接的Mn(II)亲和力;需预稳态和直接结合测量来细化残基特异性归属。
协同效应的证据在双变体和三变体分析中显现。双替换使kcat相对野生型下降20至30倍,表明这些酸性残基共同建立具催化能力的Mn(II)氧化环境(表1和图S4)。多数双变体显示更低的表观Km,但如前所述,这些表观稳态参数不能解释为Mn(II)结合亲和力的直接度量。例外是E188A/E204A,其Km为33 mM,约为野生型的6倍,催化效率下降约20倍。最后,同时替换E135、E188和E204完全消除Mn(II)氧化,确认血红素近端环区相关酸性位点为高效催化所必需。热力学和动力学稳定性实验显示这些变体保持与野生型相当的稳定性(图S5和S6;表S4),支持所观察到的动力学效应源于Mn氧化环境的局部变化而非整体结构破坏。
【数据】野生型kcat:2.9 ± 0.2 s⁻¹;E135/E188单突变:kcat下降6–15倍;E204单突变:kcat modest下降、Km升高约2倍、催化效率下降3倍;双突变:kcat下降20–30倍;E188A/E204A:Km = 33 mM(约6倍)、催化效率下降约20倍;三突变:Mn(II)氧化完全丧失
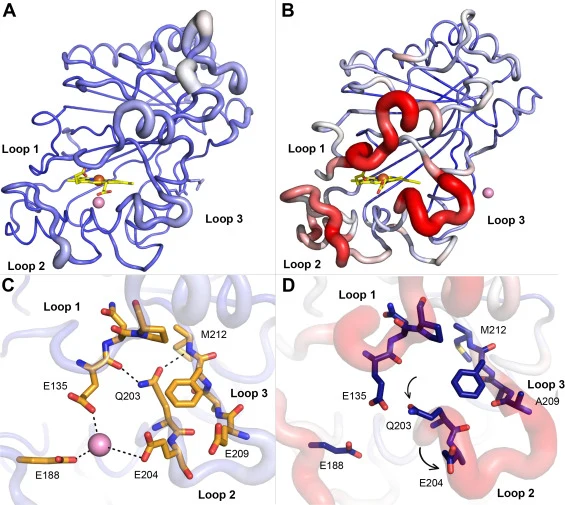
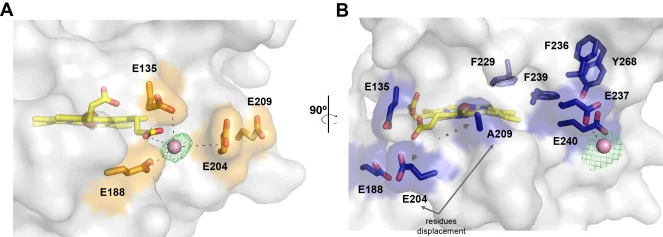
E209A提高Mn(II)氧化转换数并保留血红素近端位点。 由于残基E209靠近E204但未直接观察到参与Mn结合位点,作者接下来检验其是否可通过影响局部环区环境调节Mn(II)氧化。E209A变体kcat较野生型提高5倍,达到15 ± 1 s⁻¹,而Km基本不变(表2和图S2)。结果,催化效率提高约5倍(原文此处节选截断,后续数值未详述)。
【数据】E209A kcat:15 ± 1 s⁻¹(较野生型提高5倍);Km:基本不变;催化效率:提高约5倍;其余参数:原文未详述
讨论与解读
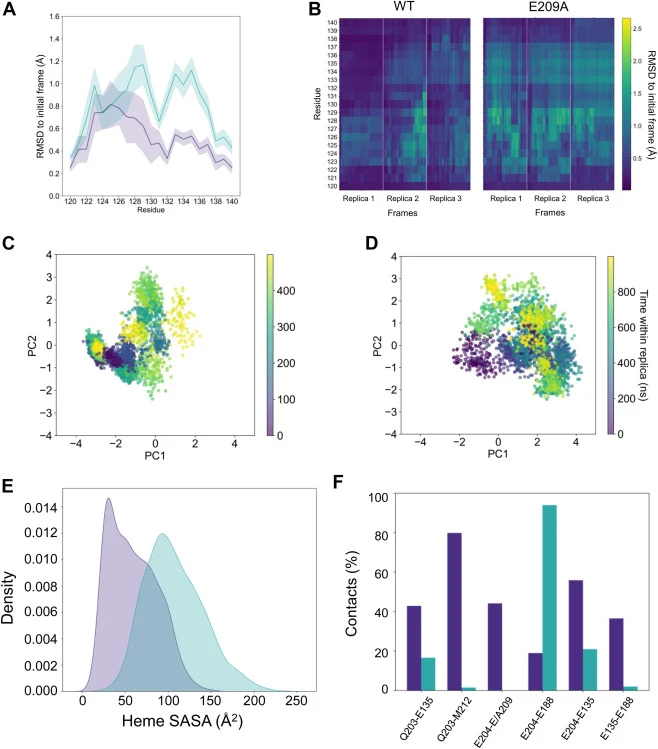
本研究确立PpDyP的Mn(II)氧化依赖由E135、E188、E204构成的、位于框定血红素腔的环区上的血红素近端位点,三者共同贡献于高效的Mn(II)依赖催化。在细菌DyP型过氧化物酶中,这些环区是连接二级结构motif的柔性结构元件,影响底物结合、产物释放、电子传递和整体酶稳定性(21, 22, 24, 25)。环区大小与柔性在DyP各类间差异显著:P类酶环区最短,I类尤其是V类酶则呈现逐渐更长、更柔性的区域。这种结构多样性很可能调控血红素可及性、底物容纳与催化效率。三个酸性残基协同作用,稳态动力学趋势提示E135和E188主要影响催化转换,而E204对表观Mn(II)依赖动力学行为有独特贡献;仅凭稳态数据尚不能为E204指定具体结构机制。同时替换E135、E188和E204后Mn(II)氧化活性完全丧失,确认该环区嵌入酸性位点的功能重要性。基于结构叠合的序列比对表明,P类DyP中的Mn(II)结合并非由严格保守的线性序列motif决定,而更取决于环区定义的血红素进入区域内酸性残基的空间分布(原文讨论节选至此截断)。E209A的结构分析显示E204发生位移、Q203介导的环间接触重排,伴随环区柔性增加与血红素暴露增大;E209A中观察到的E237/E240远端Mn(II)结合位点经突变分析表明主要贡献于血红素近端位点受扰动时的残余活性。Mn(II)氧化使PpDyP对DMP、愈创木酚、GGE和碱木质素的氧化提升最高达100倍。
编译者解读。 该研究的聪明之处在于绕开"提高亲和力"的常规思路:E209A并未增强Mn(II)结合(Km不变),而是通过放松环区网络让血红素更暴露、电子传递更顺畅,从而把kcat推高5倍。对合成生物学而言,这提示DyP的工程改造靶点可以落在"构架柔性"而非活性位点残基上,且此类突变通常不牺牲稳定性。局限也明显:表观稳态参数无法拆分结合与催化步骤,Mn(II)氧化态与配位水未定,100倍提升的底物转化产物谱亦未在节选中给出,距离工业木质素流中的应用仍有距离。
参考来源
期刊:Journal of Biological Chemistry, 2026
DOI: 10.1016/j.jbc.2026.113622
DOI: 10.1016/j.jbc.2026.113622