来源:Metabolic profiling of lignin degradation products of Pseudomonas nitroreducens JYQ3(Bioresource Technology Reports)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
木质素是木质纤维素中最难降解的组分,其微生物转化是绿色生物制造的关键环节。本研究以从乳品废水中分离的硝基还原假单胞菌(Pseudomonas nitroreducens)JYQ3为对象,在0.05%–0.25%五个稻草木质素浓度下进行7天 submerged 发酵,追踪胞外蛋白、三种木质素分解酶活性、A280芳香度变化及GC–MS代谢谱。结果显示0.25%木质素下第4天蛋白产量达88.27 mg/L,木质素过氧化物酶活性最高约4.32 IU L⁻¹,代谢物呈现脂肪酸/醇类→羟基酮/醛类→脂肪酸/酯类的三阶段演替,并检出香草醛及其衍生物。
研究背景
木质纤维素是地球上最丰富的可再生还原碳库,由纤维素、半纤维素和木质素三大部分构成,三者合计贡献每年超过2000亿吨的生物合成量。其中木质素约占植物干重的15%–30%,是结构最复杂、最顽固的组分。它由对香豆醇、松柏醇和芥子醇三种单体经自由基偶联形成,产生对羟基苯基(H)、愈创木基(G)和紫丁香基(S)结构单元,单元间通过β-O-4、β-β、5–5等多种醚键和碳碳键连接。木质素-碳水化合物复合物(LCCs)的存在、内在的芳香稳定性、结构异质性以及疏水相互作用,共同加剧了其抗降解性,限制了其在集成生物炼制中的高效利用。
正因如此,木质素长期被视为制浆和生物燃料产业的低值副产物,多被焚烧产能。但换个角度看,它是自然界唯一可再生的芳香族资源库——若能被微生物解聚为香草醛、阿魏酸等平台化合物,其价值将远超燃料。微生物木质素 valorization 因此成为研究热点,而筛选能耐受并转化高浓度木质素的菌株、厘清其酶系与代谢时序,是走向应用的前提。本研究即以硝基还原假单胞菌JYQ3为对象,系统考察不同木质素浓度下的生长、酶活与代谢产物变化。
研究方法
2.1 微生物与培养维护
本研究所用 Pseudomonas nitroreducens JYQ3 由实验室保藏菌种复苏,该菌株此前分离自乳品工业废水(Kaur and Yogalakshmi, 2019)。菌株维持于4 °C的Luria Bertani(LB)琼脂斜面,并按月定期传代以确保活力。接种后,培养物在30 °C、150 rpm摇床培养箱中培养24 h,获得活跃生长的预培养物。
【数据】菌株:Pseudomonas nitroreducens JYQ3;培养基:LB琼脂斜面;保藏温度:4 °C;传代间隔:每月;预培养温度:30 °C;预培养时间:24 h;转速:150 rpm
2.2 底物制备与木质素提取
稻草采集自印度旁遮普邦巴廷达Ghudda当地农田。收集的稻草用自来水洗涤去除泥土和杂物,常温风干,随后用实验室研磨机研磨成300 μ的细粉。木质素采用超声碱法提取处理从粉末生物质中分离,方法参照Dinh Vu等(2017)并稍作修改。简言之,将10 g稻草粉末悬浮于200 mL 2 M NaOH(氢氧化钠)溶液中,在80 °C下超声辐照2 h以增强木质素溶解(提取)。所得混合物随后过滤,分离出富含纤维素的固体残渣(即纤维素组分),并依次用0.1 M NaOH和蒸馏水洗涤,以确保可溶组分完全去除(过滤)。去除纤维素后,含半纤维素和木质素的滤液进行分级。用HCl(盐酸)将pH调至5.5使半纤维素沉淀,沉淀物经离心分离,用70%乙醇洗涤并风干,即为半纤维素组分。剩余上清液继续用HCl酸化至pH 1.5使木质素沉淀。木质素组分经离心回收,用蒸馏水充分洗涤去除残留杂质,干燥至恒重,即为木质素组分(沉淀)。木质素提取率按干燥木质素重量相对提取所用稻草初始干重的比例计算(式1)。
(1)木质素提取率 % = 干燥提取木质素重量 / 稻草初始干重 × 100
提取木质素的结构表征和元素组成分别采用傅里叶变换红外光谱(FTIR)和EDX(能量色散X射线光谱)进行。
【数据】稻草研磨粒径:300 μ;稻草粉末用量:10 g;NaOH浓度:2 M;NaOH体积:200 mL;超声温度:80 °C;超声时间:2 h;半纤维素沉淀pH:5.5;乙醇浓度:70%;木质素沉淀pH:1.5;洗涤液:0.1 M NaOH、蒸馏水
2.3 submerged 发酵降解木质素
木质素转化研究通过 submerged 发酵在100 mL锥形瓶中进行,瓶内装50 mL灭菌基础最小培养基,补充不同浓度的稻草来源木质素(0.5%、0.10%、0.15%、0.20%和0.25% w/v)。木质素浓度依据碱性条件下的溶解度选择,旨在评估底物可利用性对微生物活性的影响,同时尽量减少潜在的底物抑制。最小培养基组成如下:NaCl 1 g/L;NH₄Cl 2 g/L;2 mM MgSO₄;100 μM CaCl₂;18 μM FeSO₄;Na₂HPO₄ 13.56 g/L;KH₂PO₄ 6 g/L(Vardon et al., 2015)。灭菌前将培养基pH调至7.0。随后以1%(v/v)活跃生长的 Pseudomonas nitroreducens JQY3预培养物接种锥形瓶,于30 °C、120 rpm培养7天。保持振荡以确保好氧发酵过程中足够的氧传递。设置两个对照:(i)100 mL未接种的相同最小培养基(以木质素为唯一碳源),用于校正非生物变化;(ii)100 mL接种的LB培养基,作为生长对照。每24 h间隔无菌从各发酵瓶取样,于4 °C、5000 rpm离心10 min。随后收集澄清的无细胞上清液,用于胞外酶活性测定和总蛋白定量。此外,分析木质素转化和代谢谱。所有实验均设三次重复,结果以平均值±标准误表示。
【数据】发酵瓶体积:100 mL;装液量:50 mL;木质素浓度:0.05%、0.10%、0.15%、0.20%、0.25% w/v;NaCl:1 g/L;NH₄Cl:2 g/L;MgSO₄:2 mM;CaCl₂:100 μM;FeSO₄:18 μM;Na₂HPO₄:13.56 g/L;KH₂PO₄:6 g/L;pH:7.0;接种量:1% v/v;温度:30 °C;转速:120 rpm;时间:7天;取样间隔:24 h;离心:5000 rpm、10 min、4 °C;重复数:3
2.3.1 木质素转化(紫外分光光度法)
培养期间木质素的转化或分解通过280 nm吸光度进行光谱评估。然而,280 nm吸光度的变化是木质素与发酵过程中形成的紫外吸收芳香化合物两者的指示性度量。根据既往研究,该波长常用于测量木质素相关变化,因为芳香结构在此区域有吸收(Gu et al., 2024; Ley et al., 2023; Xu et al., 2018)。因此,所得结果结合胞外酶活性测定和基于GC–MS的代谢谱进行解读,以提供对木质素转化更全面的评估。Sumranwanich等(2024)在此前研究中亦采用类似流程。
【数据】检测波长:280 nm;检测方法:紫外分光光度法;辅助手段:胞外酶活测定、GC–MS代谢谱
2.3.2 酶活性与蛋白测定
木质素分解酶活性采用标准氧化测定法通过分光光度法测定。木质素过氧化物酶活性以藜芦醇为氧化底物、在过氧化氢(H₂O₂)存在下于310 nm波长测定(ε = 9300 M⁻¹ cm⁻¹)。反应体系包含1.0 mL酒石酸钠缓冲液(125 mM,pH 3.0)、0.5 mL藜芦醇(10 mM)和0.5 mL酶提取液。反应通过加入0.5 mL 2 mM H₂O₂启动(Arora and Gill, 2001)。锰过氧化物酶活性以酚红为氧化底物、在H₂O₂存在下于610 nm波长测定(ε = 22,000 M⁻¹ cm⁻¹)。反应体系包含0.1 mL乳酸钠(0.25 M)、0.05 mL硫酸锰(2 mM)、0.2 mL牛血清白蛋白(0.5%)、0.1 mL酚红(0.1%)、0.5 mL酶提取液和0.05 mL H₂O₂(2 mM),溶于0.2 M磷酸钠缓冲液(pH 8.0)。反应在室温下启动5 min,随后加入0.04 mL 2 N氢氧化钠终止(Kuwahara et al., 1984)。漆酶活性以ABTS(2,2′-叠氮-双(3-乙基苯并噻唑啉-6-磺酸))为氧化底物于420 nm波长测定(ε = 3600 M⁻¹ cm⁻¹)(Bourbonnais and Paice, 1990)。反应体系包含1 mL ABTS(0.5 mM)溶于20 mM乙酸钠缓冲液(pH 4.5)和0.25 mL酶提取液。所有反应均在适当缓冲体系和受控pH与温度条件下进行。吸光度变化对照适当空白记录。反应监测固定时间间隔3 min。酶活性以国际单位每升(IU L⁻¹)表示,定义为在测定条件下每分钟产生0.001吸光度变化所需的酶量。各酶活性按式2计算。蛋白定量参照Bradford法(Bradford, 1976)。
(2)酶活性 IU L⁻¹ = (ΔA/Δt) / (ε·l) × 总测定体积 / 酶样品体积
其中,ΔA = 吸光度变化,Δt = 反应时间,ε = 摩尔消光系数,l = 光程。所有酶测定均设三次重复,结果以平均值±标准误表示。
【数据】LiP测定波长:310 nm;ε:9300 M⁻¹ cm⁻¹;酒石酸钠缓冲液:125 mM、pH 3.0、1.0 mL;藜芦醇:10 mM、0.5 mL;H₂O₂:2 mM、0.5 mL;MnP测定波长:610 nm;ε:22,000 M⁻¹ cm⁻¹;乳酸钠:0.25 M、0.1 mL;硫酸锰:2 mM、0.05 mL;BSA:0.5%、0.2 mL;酚红:0.1%、0.1 mL;H₂O₂:2 mM、0.05 mL;磷酸钠缓冲液:0.2 M、pH 8.0;MnP反应时间:5 min;终止液:2 N NaOH、0.04 mL;漆酶测定波长:420 nm;ε:3600 M⁻¹ cm⁻¹;ABTS:0.5 mM、1 mL;乙酸钠缓冲液:20 mM、pH 4.5;酶提取液:0.25 mL;监测时间:3 min;重复数:3
2.4 代谢物谱分析
木质素降解过程中获得的代谢物采用GC–MS分析。简言之,在设定时间间隔收集的培养物样品于12,000 rpm离心10 min去除细胞碎片,用HCl酸化至pH 2.0,并以乙酸乙酯(1:1,v/v)连续三份萃取。合并的有机提取物经硫酸钠干燥……
【数据】离心:12,000 rpm、10 min;酸化pH:2.0;萃取剂:乙酸乙酯;萃取比例:1:1 v/v;萃取次数:3次;干燥剂:硫酸钠(原文节选至此中断)
研究结果
3.1 木质素提取
提取木质素产率基于生物质初始干重确定为13.2%(w/w)。提取木质素的组成和结构特征进一步通过EDX和FTIR分析评估。FTIR光谱在3262 cm⁻¹处显示宽吸收带,对应酚羟基和脂肪族羟基的OH伸缩振动;2932 cm⁻¹处的峰归属为甲基和亚甲基的CH伸缩。1583和1421 cm⁻¹处的显著峰代表芳香骨架振动,证实木质素芳香结构的存在。1261 cm⁻¹处的谱带对应愈创木基环呼吸和CO伸缩,而1129和1027 cm⁻¹处的峰与醇和醚中的CO伸缩振动相关。此外,812 cm⁻¹处的峰表明芳香CH面外弯曲(图S1)。EDX分析显示碳(70.7%)和氧(21.5%)占主导,与木质素的芳香和含氧结构一致。Na(1.51%)、Si(4.44%)和Cl(1.75%)等微量元素的存在表明源自提取试剂和生物质矿物的残留无机杂质。综合来看,这些结果表明从稻草中成功提取了木质素,尽管少量无机组分的存在提示提取组分仅部分纯化。
【数据】木质素提取率:13.2% w/w;FTIR峰位:3262、2932、1583、1421、1261、1129、1027、812 cm⁻¹;EDX元素组成:C 70.7%、O 21.5%、Na 1.51%、Si 4.44%、Cl 1.75%
3.2 生长估计
胞外蛋白作为 Pseudomonas nitroreducens JYQ3 在不同木质素浓度(0.05–0.25% w/v)下代谢活性和酶分泌的间接指标进行监测。无论浓度如何,蛋白水平在初始阶段(第1–3天)普遍较低,第4天达到峰值,此后逐步下降(图1)。数据以三次重复实验的平均值±标准差表示。在0.05%木质素浓度(L1)下,培养初始阶段蛋白水平约为8.9–9.6 mg/L。随后在第4天升至60.9 mg/L,第7天降至4.93 mg/L。初始低蛋白水平反映生长的滞后期,而培养中期观察到的升高可能与参与木质素转化的胞外酶分泌增强有关,这是木质素利用细菌中常见的趋势(Salvachúa et al., 2020; Xu et al., 2022)。其他木质素浓度下也观察到类似生长趋势,在0.15%(L3)、0.2%(L4)和0.25%(L5)木质素浓度下最大蛋白浓度分别为69.6 mg/L、79.6 mg/L和88.3 mg/L。胞外蛋白随浓度增加而升高,提示较高底物可利用性下代谢活性增强,这与既往细菌木质素利用研究一致(Beckham et al., 2016; Linger et al., 2014)。后期蛋白浓度下降可能与多种原因有关,如易利用底物耗尽、抑制性化合物积累、细菌进入稳定期、蛋白水解及其被细菌重新同化用于生长(Cezairliyan and Ausubel, 2017; Whooley et al., 1983)。然而,这些解释并非基于证据,因为本研究中未直接测定。Hori等(2014)此前研究中报道了木质纤维素降解过程中蛋白谱的类似时间依赖性变化。相比之下,对照瓶呈现不同趋势,初始阶段蛋白水平相对较高,但后期低于木质素补充培养物。初始阶段较高的蛋白水平反映细菌因养分易得而活跃生长和分泌蛋白。随后养分耗竭和向稳定期推进导致后期蛋白下降。与对照瓶不同,暴露于木质素的细菌必须经历大量生理适应。双因素重复测量ANOVA证实蛋白产量受木质素浓度和培养天数显著影响,且培养天数×木质素浓度交互作用显著(p < 0.001)。由于球形度假设不满足,对受试者内效应采用Greenhouse-Geisser校正。Bonferroni校正的事后比较进一步证实木质素浓度与培养天数组合间存在显著差异。Salvachúa等(2020)和Xu等(2022)在木质素降解细菌中报道了类似的蛋白或酶相关活性时间模式,即初始滞后期、中期升高和随后下降。这些观察表明测试条件下蛋白分泌的时间依赖性变化。
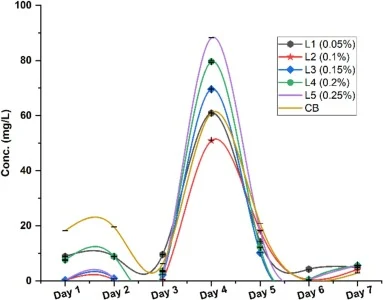
【数据】木质素浓度:0.05%、0.15%、0.20%、0.25% w/v;L1蛋白:初始8.9–9.6 mg/L、第4天60.9 mg/L、第7天4.93 mg/L;L3最大蛋白:69.6 mg/L;L4最大蛋白:79.6 mg/L;L5最大蛋白:88.3 mg/L(摘要载88.27 mg/L);峰值时间:第4天;统计:双因素重复测量ANOVA,p < 0.001,Greenhouse-Geisser校正,Bonferroni事后检验
3.3 木质素转化
Pseudomonas nitroreducens JYQ3 转化木质素的能力通过280 nm波长(A280)分光光度法评估,该波长对芳香木质素衍生物和酚类中间体敏感。图2描绘了暴露于不同木质素浓度的JYQ3的280 nm吸光度变化。吸光度变化被解读为培养基中芳香化合物变化的指示。吸光度下降可能反映芳香部分的利用或转化,而升高可能表明可溶性芳香中间体(如酚类)在培养基中的积累(Aufischer et al., 2022)。从图中可清楚看出,在整个7天培养期间,所有木质素浓度均表现出可测量的A280变化,表明芳香含量的动态变化。较高木质素浓度显示相对较高的吸光度值,0.25%(L5)吸光度最高,第1天约为39.67,并持续保持高位(33.19)至第7天;其次为0.2%木质素(L4),数值在26.63–37.52之间。中间浓度(0.1%和0.15%)产生中等吸光度水平(12.7–22.7),而最低浓度0.05%(L1)变化最小(4.1–6.77)。双因素重复测量ANOVA证实培养天数和木质素浓度均对吸光度有显著影响(p < 0.001)。还观察到显著的培养天数×木质素浓度交互作用(p < 0.001),表明木质素浓度的效应随……(原文节选至此中断)
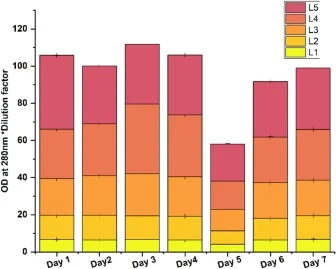
【数据】检测波长:280 nm;L5第1天A280:39.67;L5第7天A280:33.19;L4 A280范围:26.63–37.52;中间浓度(0.1%、0.15%)A280:12.7–22.7;L1 A280范围:4.1–6.77;统计:双因素重复测量ANOVA,p < 0.001,交互作用p < 0.001
3.4 木质素分解酶活性谱
在五个木质素浓度(L1–L5)下监测了JYQ3的三种木质素分解酶活性随时间的变化(图3)。木质素过氧化物酶(LiP)在所测酶中活性最高,尤其在较高木质素浓度下,0.25%木质素时活性约为4.32 IU L⁻¹。锰过氧化物酶(MnP)和漆酶活性相对较低且变化较大。
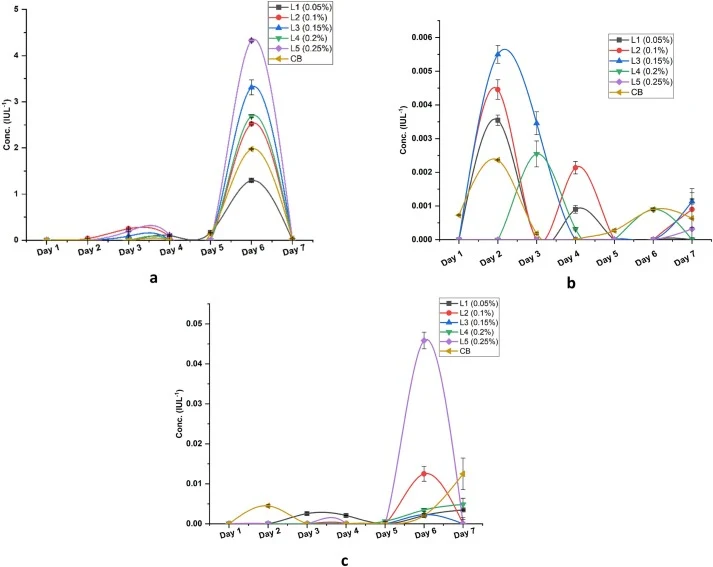
【数据】LiP最高活性:约4.32 IU L⁻¹;对应木质素浓度:0.25%;MnP与漆酶:活性较低且变化(原文未给出具体数值);酶活单位:IU L⁻¹
3.5 代谢物谱与化学类别动态
GC–MS检测到的化合物按化学类别归类,不同木质素浓度下各类别丰度存在差异(图4)。代谢物产生具有时间依赖性:早期阶段(第1、2天)以脂肪酸、醇类、多元醇和抗氧化化合物为主;中期(第3–6天)富含羟基酮和醛类;后期(第7天)组成更为多样,包括脂肪酸、酯类和醇类(图5)。GC–MS色谱图展示了木质素降解过程中产生的代谢物(图6)。香草醛及相关衍生物(包括3-香草基丙醇和乙基高香草酸)在培养不同阶段被检出(图7)。基于上述结果,提出了JYQ3可能的木质素降解机制示意(图8)。
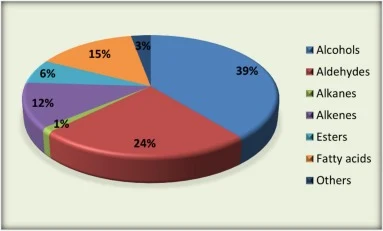
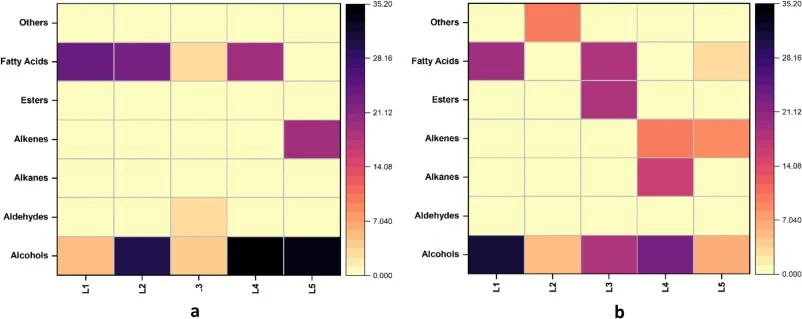
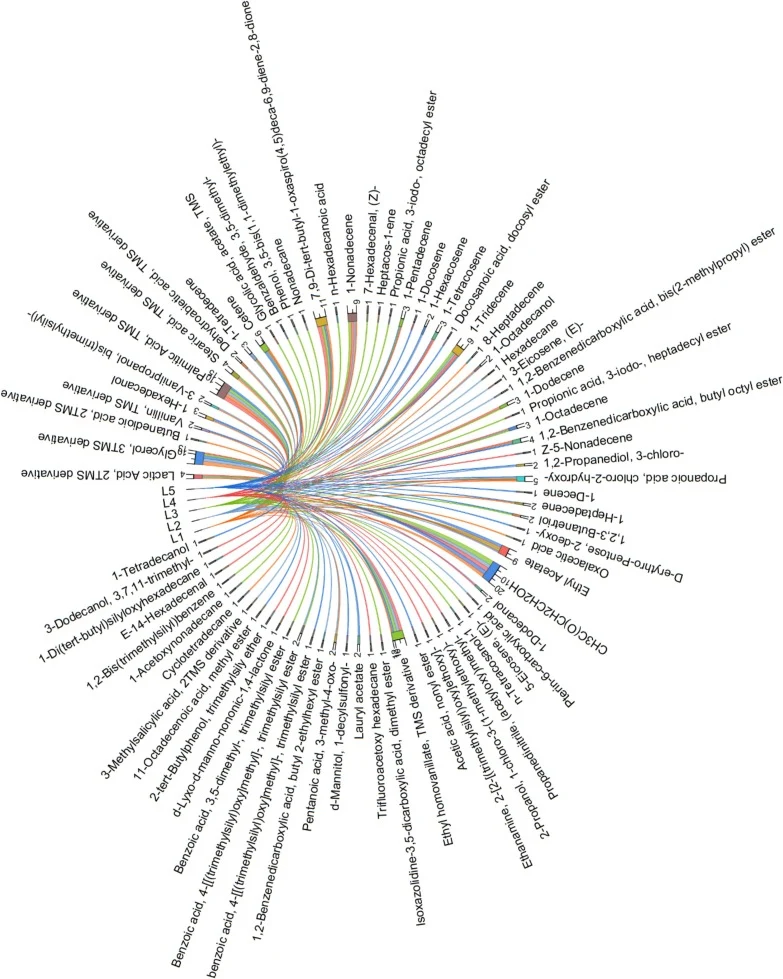
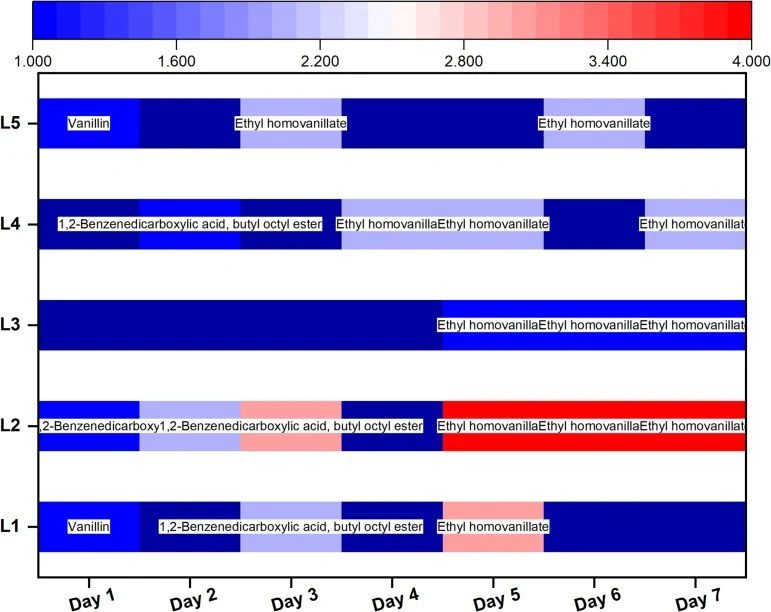
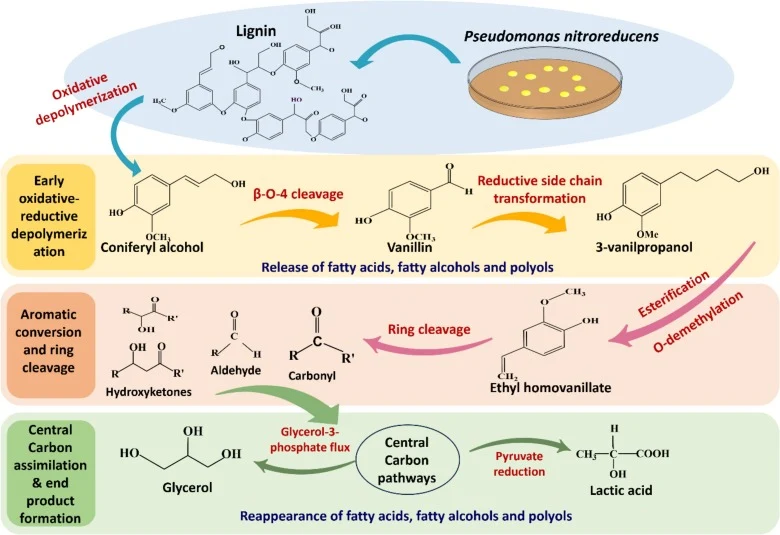
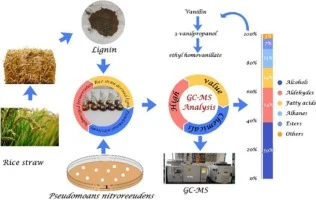
【数据】早期(第1–2天)主要类别:脂肪酸、醇类、多元醇、抗氧化化合物;中期(第3–6天):羟基酮、醛类;后期(第7天):脂肪酸、酯类、醇类;检出特征物:香草醛、3-香草基丙醇、乙基高香草酸;检测方法:GC–MS;培养周期:7天
讨论与解读
本研究证实硝基还原假单胞菌JYQ3能在 submerged 发酵条件下转化稻草来源木质素。蛋白谱、木质素转化与酶活性均呈现浓度依赖模式。在所测酶中LiP活性最高,尤其在较高木质素浓度下;MnP和漆酶活性相对较低且多变。代谢谱显示检测到的代谢物随时间变化:早期以脂肪酸、脂肪醇、多元醇和抗氧化剂为主,中期为羟基酮和醛类,后期脂肪酸、酯类、醇类和多元醇重新出现。这一三阶段转化表明木质素补充培养中代谢物相对出现频率的变化。香草醛及相关化合物(3-香草基丙醇、乙基高香草酸)在不同培养阶段被检出。总体而言,这些发现为JYQ3在实验室条件下的木质素转化能力提供了初步认识,也凸显了木质素浓度和培养时间对酶活模式及代谢物谱时序变化的重要性。后续需开展定量分析、途径验证和工艺优化研究以加深理解。
编译者解读:该研究的亮点在于用一套较完整的时序数据(蛋白、三酶活、A280、GC–MS)勾勒出假单胞菌对木质素的"浓度—时间"响应框架,0.25%下88.27 mg/L蛋白与4.32 IU L⁻¹的LiP提示该菌在高底物负荷下仍保持活性。但作者自己承认未直接验证代谢通路,A280也只能作半定量指示,酶活数据中MnP与漆酶缺乏具体数值。对合成生物学而言,JYQ3更适合作为木质素解聚的底盘候选,下一步应锁定LiP编码基因、做异源表达与通路重构,并结合定量代谢组学把"三阶段演替"变成可设计的调控节点。
参考来源
期刊:Bioresource Technology Reports, 2026
DOI: 10.1016/j.biteb.2026.103185
DOI: 10.1016/j.biteb.2026.103185