来源:The acetylation mechanism and engineering strategy of isocitrate lyase for optimizing biosynthesis in Escherichia coli(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
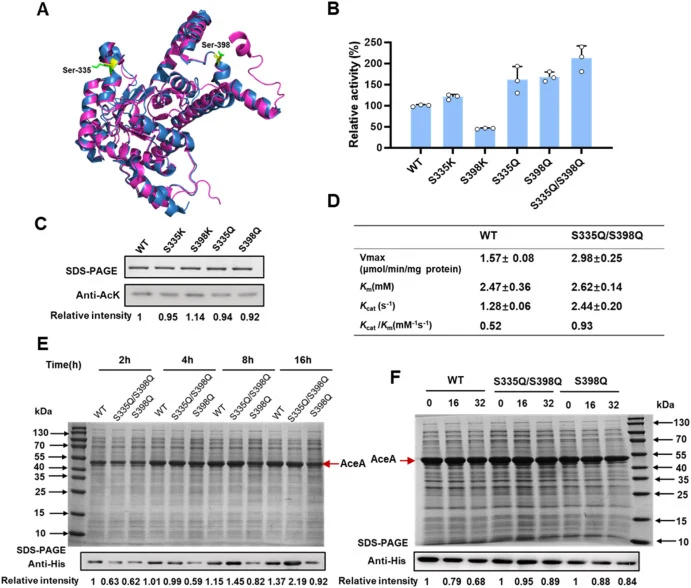
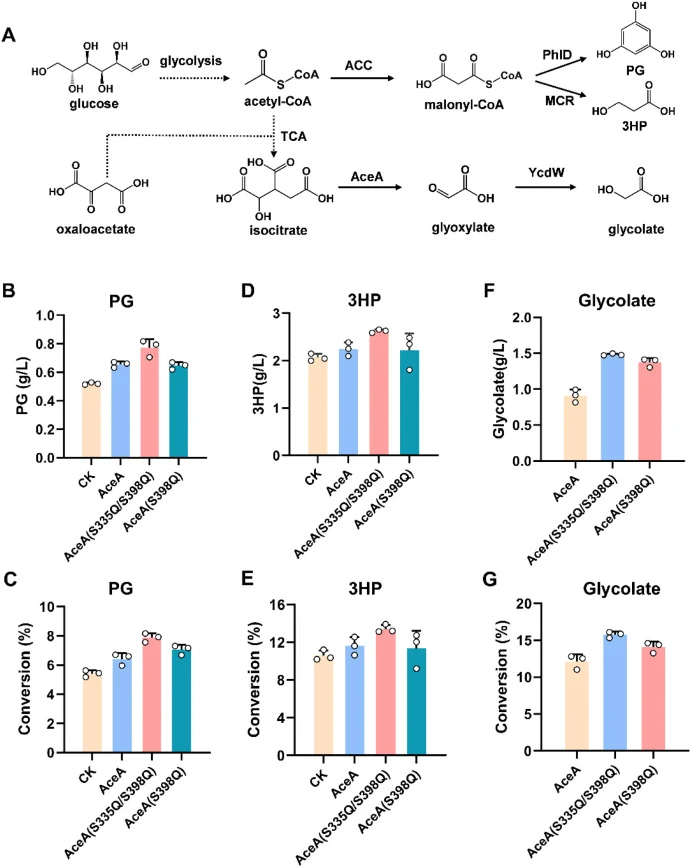
蛋白质赖氨酸乙酰化长期被视为调控细胞生理的普遍修饰,却鲜少被真正用于代谢工程。本研究系统解析了大肠杆菌乙醛酸支路关键酶——异柠檬酸裂解酶(AceA)的乙酰化机制:它同时受非酶促(乙酰磷酸)与酶促(YfiQ/CobB)双重调控,且乙酰化显著抑制酶活。作者据此设计出AceA(S335Q/S398Q)双突变体,酶活提升2.12倍,并在PG、3HP、乙醇酸合成中验证了增产效果。
研究背景
细胞生理受复杂调控网络支配,翻译后修饰(PTM)是其中精细的一环——通过共价化学反应改变氨基酸,提升蛋白质结构复杂度与调控精度。过去50年间已发现200余种蛋白修饰类型,包括磷酸化、泛素化、甲基化与乙酰化等。其中赖氨酸乙酰化高度保守,广泛影响基因表达、代谢与细胞稳态。赖氨酸乙酰化可由赖氨酸乙酰转移酶催化(酶促机制),也可由乙酰磷酸(AcP)直接化学修饰(非酶促机制);两类修饰均可被组蛋白去乙酰化酶(HDACs)或sirtuins(SIRTs)逆转。乙酰化最初在组蛋白修饰与表观遗传调控中被认识,蛋白质组学的发展则揭示其在非组蛋白上的广泛存在,说明乙酰化深度参与多种生理与代谢过程。正因如此,赖氨酸乙酰化有望成为代谢工程的潜在工具:通过操控乙酰化水平,或构建不受乙酰化影响的酶,可开辟新的优化路径。但这一方向在代谢工程中的应用仍待深入探索。
研究方法
2.1 质粒与菌株构建
本研究所用全部质粒与菌株列于表S1。质粒构建采用标准分子生物学技术,包括PCR与限制性内切酶消化,宿主为大肠杆菌DH5α。蛋白表达与目标产物合成在大肠杆菌BL21(DE3)中进行。aceA的定点突变按Stratagene方案操作。大肠杆菌BL21(DE3)的染色体突变体通过CRISPR与P1 vir介导的转导构建。P1 vir介导转导所用的供体菌株来自Keio collection。
【数据】宿主菌:E. coli DH5α(克隆)、E. coli BL21(DE3)(表达);突变方法:Stratagene定点突变方案、CRISPR、P1 vir转导;供体来源:Keio collection;原文未详述PCR条件与酶切参数
2.2 蛋白表达、纯化与稳定性分析
菌株在添加相应抗生素的LB培养基中培养。过夜培养物按1:50稀释至含2%葡萄糖的新鲜LB中,37 °C培养。当OD600约为0.6时,加入100 μM IPTG诱导蛋白表达,随后于30 °C继续培养18 h。收集细胞,重悬于PBS(pH 7.5),高压破碎。上清液按供应商方案用Ni-NTA His·Bind柱(Novagen)纯化。纯化蛋白用于乙酰化与活性测定。蛋白表达分析时,细胞培养至OD600约0.6,加入100 μM IPTG,30 °C培养,诱导后不同时间点取样。稳定性测试中,菌株在含2%葡萄糖的LB中培养,IPTG诱导4 h后加入氯霉素(200 μg/mL)处理不同时间。收集细胞、重悬于PBS,高压匀浆破碎。离心后收集含总细胞蛋白的上清,归一化蛋白浓度。样品经12% SDS-PAGE分离,用抗His抗体进行Western blot分析。
【数据】培养基:LB;接种稀释:1:50;碳源:2%葡萄糖;诱导温度:37 °C(生长)、30 °C(表达);诱导剂:100 μM IPTG;诱导时长:18 h;OD600:0.6;破碎缓冲液:PBS pH 7.5;稳定性处理:氯霉素200 μg/mL、诱导后4 h;凝胶:12% SDS-PAGE;抗体:抗His
2.3 Western blotting
蛋白经12% SDS-PAGE分离后,于15 V、1.5 h转印至PVDF膜。用快速封闭液(Beyotime)封闭后,膜与抗乙酰赖氨酸小鼠单克隆抗体(EASYBIO,1:2000)于4 °C孵育过夜,随后与HRP标记的抗小鼠二抗(EASYBIO,1:10000)孵育。PBST洗涤后用增强化学发光(ECL)系统检测信号。
【数据】凝胶浓度:12% SDS-PAGE;转膜电压:15 V;转膜时间:1.5 h;一抗:抗乙酰赖氨酸小鼠单克隆抗体,1:2000,4 °C过夜;二抗:HRP抗小鼠,1:10000;检测:ECL;洗涤液:PBST
2.4 AceA活性测定
AceA活性按此前报道的类似方案测定。每个反应体系含50 mM MOPS(pH 6.8)、5 mM MgCl2、1 mM NADH、7单位乳酸脱氢酶、5 mM异柠檬酸。乙酰化位点模拟突变体的活性测定使用1 μM纯化AceA蛋白,其余活性测定使用0.4 μM。用Spark酶标仪(Tecan)在340 nm监测NADH氧化。
【数据】缓冲液:50 mM MOPS pH 6.8;MgCl2:5 mM;NADH:1 mM;乳酸脱氢酶:7 U;异柠檬酸:5 mM;酶量:突变体1 μM、其余0.4 μM;检测波长:340 nm;仪器:Tecan Spark酶标仪
2.5 体外乙酰化与去乙酰化
乙酰转移酶YfiQ介导的乙酰化与去乙酰化酶CobB介导的去乙酰化体外实验,按此前报道方案并作部分修改后进行。乙酰化反应体系含50 mM Tris–HCl(pH 7.8)、0.1 mM EDTA、10%甘油、1 mM二硫苏糖醇、10 mM丁酸钠、0.2 mM乙酰辅酶A、100 μg YfiQ与40 μg AceA,总体积200 μL,37 °C孵育1 h。去乙酰化酶反应体系含40 mM HEPES(pH 7.0)、6 mM MgCl2、1 mM NAD+、2 mM NAM+、1 mM二硫苏糖醇、10%甘油、100 μg CobB与40 μg AceA,终体积200 μL,37 °C孵育1 h。所有处理样品均进行Western blot与酶活分析。AcP介导的乙酰化实验中,50 μg AceA与不同浓度AcP混合,总体积100 μL,37 °C孵育不同时间。
【数据】乙酰化体系:50 mM Tris–HCl pH 7.8、0.1 mM EDTA、10%甘油、1 mM DTT、10 mM丁酸钠、0.2 mM乙酰辅酶A、100 μg YfiQ、40 μg AceA、200 μL、37 °C、1 h;去乙酰化体系:40 mM HEPES pH 7.0、6 mM MgCl2、1 mM NAD+、2 mM NAM+、1 mM DTT、10%甘油、100 μg CobB、40 μg AceA、200 μL、37 °C、1 h;AcP乙酰化:50 μg AceA、100 μL、37 °C、浓度与时间可变
2.6 摇瓶发酵与分析方法
摇瓶实验设三个平行,使用250 mL无挡板三角瓶,每瓶装50 mL发酵培养基。LB中37 °C过夜培养后,按1:50稀释至新鲜发酵培养基。当OD600约0.6时加入0.1 mM IPTG,30 °C继续培养。细胞生长用Hitachi U-2900分光光度计于600 nm测定吸光度定量。残余葡萄糖浓度用高效液相色谱(HPLC)测定,仪器为Agilent 1260 Infinity系列,配Bio-Rad HPX-87H柱(300 × 7.8 mm)。PG、3HP与乙醇酸的发酵及分析方法遵循此前建立的方案。胞内AcP浓度通过羟肟酸法形成乙酰羟肟酸铁,于505 nm测定。
【数据】摇瓶:250 mL无挡板三角瓶、装液50 mL、三平行;接种:1:50;诱导:OD600约0.6、0.1 mM IPTG、30 °C;生长检测:600 nm,Hitachi U-2900;HPLC:Agilent 1260 Infinity、Bio-Rad HPX-87H柱300 × 7.8 mm;AcP检测:505 nm羟肟酸法
研究结果
3.1 AceA可经非酶促与酶促机制被乙酰化
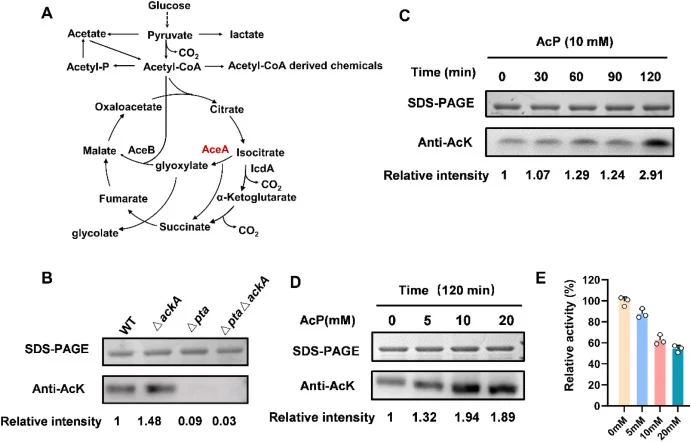
乙酰磷酸(AcP)是经磷酸转乙酰酶(Pta)与乙酸激酶(AckA)途径生成的代谢中间体,作为关键乙酰供体,通过非酶促机制直接乙酰化去质子化的赖氨酸ε-氨基。ackA突变体中胞内AcP水平升高,而pta突变则使AcP浓度相对野生型下降。为评估AcP在体内AceA乙酰化中的作用,我们构建了Δpta、ΔackA及其对应的双突变株,并用抗乙酰赖氨酸单克隆抗体分析其乙酰化谱。与AcP可利用性一致,AceA乙酰化在Δpta与ΔptaΔackA突变体中明显降低,而在ΔackA背景中升高(图1B)。进一步的体外实验中,纯化AceA与递增浓度AcP孵育不同时间,乙酰化呈剂量与时间依赖性(图1C、D)。
大肠杆菌中已鉴定出一种赖氨酸乙酰转移酶YfiQ,属GCN5样乙酰转移酶(GNAT)家族。事实上,一种类似的酶Pat最早在肠道沙门氏菌中发现并表征。该乙酰转移酶可将乙酰基从供体乙酰辅酶A转移至靶蛋白赖氨酸残基的ε-氨基。在大肠杆菌中,NAD依赖的去乙酰化酶CobB是主要的赖氨酸去乙酰化酶,无论乙酰基来源是酶促还是非酶促,均能将其去除。为研究AceA的乙酰化机制及其在体内的潜在可逆性,我们同样用抗乙酰赖氨酸单克隆抗体进行Western blot分析。首先在体内与体外评估YfiQ与CobB对AceA乙酰化修饰的作用。我们构建了大肠杆菌yfiQ与cobB敲除突变体,并将AceA过表达质粒分别转入这些突变体。与野生型相比,AceA乙酰化水平在ΔyfiQ菌株中下降、在ΔcobB菌株中升高(图2A)。随后纯化YfiQ与CobB,分别与AceA体外孵育。AceA乙酰化在与乙酰辅酶A孵育后增强,与乙酰辅酶A和YfiQ共同孵育后进一步增强(图2B)。Western blot表明,AceA乙酰化既可由YfiQ催化的酶促方式发生,也可由乙酰辅酶A非酶促发生(图2B)。此外,与NAD+依赖去乙酰化酶CobB孵育后,AceA乙酰化水平显著降低;加入烟酰胺(NAM,CobB的已知竞争性抑制剂)可抑制该去乙酰化反应(图2C)。综上,我们的发现证明大肠杆菌代谢酶AceA同时受非酶促与酶促乙酰化修饰。我们提供了该修饰可被sirtuin样去乙酰化酶CobB催化逆转的证据(图2D)。
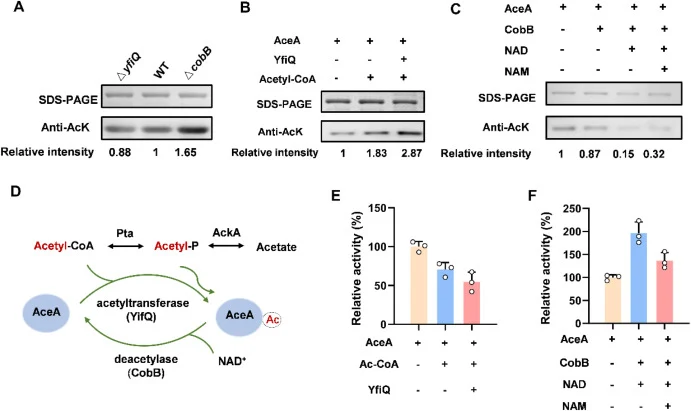
这种动态可逆修饰使AceA处于双模式乙酰化控制之下。该机制凸显了AceA在翻译后水平调控的关键生理意义,使细胞能通过调节其活性适应多种代谢状态。需要指出,大肠杆菌中乙酰化的可逆性此前仅在少数实例中得到证明。这一观察暗示,可逆乙酰化很可能是受精确调控、具有关键生理作用的过程,而非广泛而无差别的现象。另一种可能是,负责逆转这些CobB不敏感底物乙酰化的特定去乙酰化酶尚未被鉴定。因此,寻找新去乙酰化酶的研究持续进行。例如,丝氨酸水解酶YcgC最初被提为候选,但后续研究未能证实其去乙酰化活性。在耻垢分枝杆菌中,蛋白MSMEG_4620已被报道具有去乙酰化活性,提示细菌中非sirtuin去乙酰化酶具有进化保守性。尽管如此,该领域在确证与表征新去乙酰化酶方面仍面临挑战。
【数据】菌株:Δpta、ΔackA、ΔptaΔackA、ΔyfiQ、ΔcobB;乙酰化变化:Δpta与ΔptaΔackA降低、ΔackA升高、ΔyfiQ降低、ΔcobB升高;体外AcP:剂量与时间依赖性;YfiQ体系:乙酰辅酶A增强、加YfiQ进一步增强;CobB体系:NAD+依赖去乙酰化、NAM抑制;抗体:抗乙酰赖氨酸单克隆抗体
3.2 碳源影响AceA的乙酰化状态
微生物发酵中碳源选择通过调节代谢流与能量生成,对细胞生长和产物合成产生关键影响。碳源类型还可影响细胞乙酰化组,改变乙酰辅酶A与乙酰磷酸等关键代谢前体的胞内池。理解碳源依赖的乙酰化动态,或可提供新策略:无需遗传干预,仅通过翻译后调控优化发酵过程、增强目标产物合成并减少副产物生成。为研究碳源对AceA乙酰化的影响,我们从添加不同浓度葡萄糖或甘油的LB培养基中纯化AceA,用Western blot评估乙酰化水平。补充葡萄糖或甘油后AceA乙酰化水平升高,呈明显剂量依赖性,且等浓度下葡萄糖诱导的乙酰化高于甘油(图3A、B)。然而,葡萄糖从1%提高到2%并未进一步增强乙酰化(图3B)。1%葡萄糖可能已足以诱导AceA最大乙酰化,2%浓度下未见进一步升高。
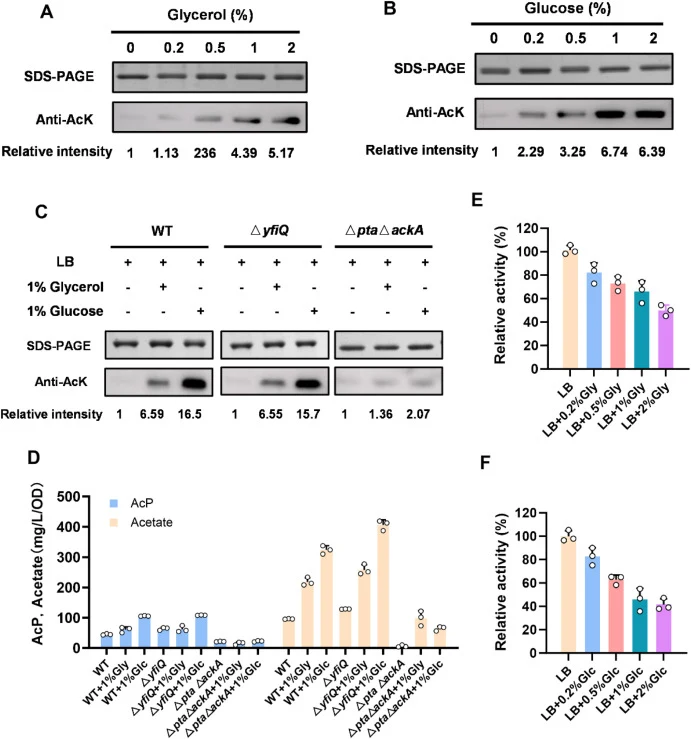
需注意,并非所有碳源在相同浓度下都会导致蛋白乙酰化水平差异。在相同浓度木糖与葡萄糖中生长的细胞,乙酰化水平相似(Schilling等,2019)。Schilling等提出,碳源对赖氨酸乙酰化的影响可能源于下游代谢物的变化,而非碳源身份本身。为探究不同碳源影响AceA乙酰化的机制,我们分别删除yfiQ与pta-ackA基因,构建酶促与非酶促乙酰化途径缺陷的突变株。在含1%甘油或1%葡萄糖的LB中培养野生型与突变株,评估AceA乙酰化状态。yfiQ突变体对两种碳源的乙酰化响应与野生型非常相似(图3C)。相反,AcP合成缺陷的pta-ackA双敲除株在补充葡萄糖或甘油后,AceA乙酰化均未显著升高(图3C)。这与先前研究一致:pta突变体补充葡萄糖后乙酰化水平不升高。此外,我们比较了两种突变体与野生株在相同培养条件下AcP与乙酸的浓度。yfiQ突变体在相同碳源下AcP与乙酸水平与野生株相近;而pta-ackA双敲除突变体的AcP与乙酸浓度明显低于野生型与yfiQ突变体(图3D)。而且,AceA乙酰化的碳源依赖性变化与两株菌中AcP和乙酸浓度呈正相关(图3C、D)。这些结果表明,乙酰转移酶YfiQ不负责AceA的碳源依赖性乙酰化;该过程似乎主要依赖糖酵解通量及随后积累的代谢物。
【数据】培养基:LB + 不同浓度甘油或葡萄糖;葡萄糖梯度:1%、2%;甘油:等浓度对比;菌株:野生型、ΔyfiQ、Δpta-ackA;乙酰化:葡萄糖>甘油(等浓度)、1%葡萄糖达最大、2%无进一步升高;ΔyfiQ响应类似野生型;Δpta-ackA补充碳源后无显著升高;AcP与乙酸:Δpta-ackA明显低于野生型与ΔyfiQ;检测:Western blot、505 nm羟肟酸法
3.3 特定位点乙酰化对AceA酶活的功能作用
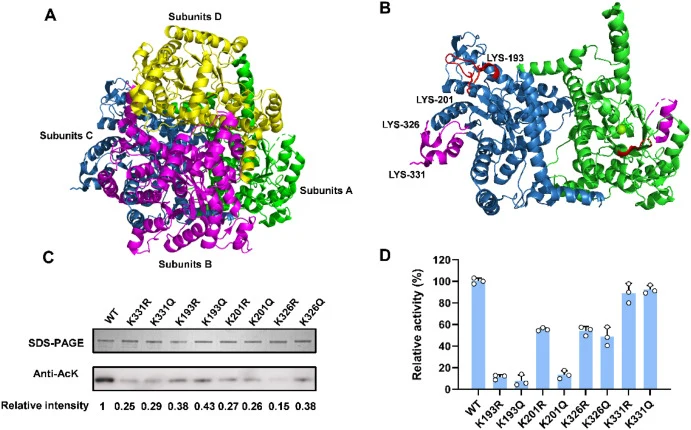
(原文节选至此,后续结构分析、定点突变、AceA(S335Q/S398Q)双突变体构建(酶活提升2.12倍)及PG、3HP、乙醇酸产量验证等内容未在本次节选中提供,故不展开。)
讨论与解读
乙醛酸支路是关键的补回途径,绕过TCA循环的脱羧步骤,实现乙酸高效同化与碳骨架节约。异柠檬酸裂解酶(AceA)催化该支路关键步骤,其调控对重定向中心碳流至关重要。本研究系统表征了大肠杆菌AceA的赖氨酸乙酰化机制,证明其对酶活的抑制作用;据此开发乙酰化介导的理性设计策略,构建AceA(S335Q/S398Q)双突变体,活性与稳定性显著提升;工程酶在PG、3HP与乙醇酸多种化学品合成中验证有效。研究确立了AceA乙酰化理性调控作为优化乙醛酸支路的有效策略,可提升微生物合成中的碳转化效率与生物产量,为利用翻译后修饰见解理性改造代谢提供了新范式。
编译者解读:该工作把"修饰位点"当作可编程的调控旋钮,而非单纯的表型描述——用乙酰化模拟突变(S→Q)绕过复杂的乙酰化酶调控网络,直接锁定酶活提升,思路干净。2.12倍酶活与多产物验证说明其工程可迁移性。局限在于:Q突变仅模拟乙酰化电荷效应,未必复现真实乙酰化动态;且增产幅度依赖宿主背景与途径通量匹配,工业规模下的稳定性仍待检验。
参考来源
Jia R. The acetylation mechanism and engineering strategy of isocitrate lyase for optimizing biosynthesis in Escherichia coli. Synthetic and Systems Biotechnology, 2026. DOI: 10.1016/j.synbio.2026.04.031
DOI: 10.1016/j.synbio.2026.04.031