来源:Engineering Saccharomyces cerevisiae to express epoxycarotenoid dioxygenase for bioconversion of 4-vinyl guaiacol to vanillin and metabolites analysis(Innovative Food Science & Emerging Technologies)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
精酿啤酒风味不稳定,酚类异味(POF)是主要痛点之一。本研究从10株商业啤酒酵母中筛选出4-乙烯基愈创木酚(4VG)生成潜力最高的酿酒酵母645,导入编码9-顺式环氧类胡萝卜素双加氧酶的SeNCED基因,构建了将异味前体4VG转化为高值香料香兰素的代谢路径。转化子No. 26在48 h香兰素产量达62.1 mg/g DCW,并在实际啤酒酿造试验中显著优于野生型。研究同时建立了GC与GC–MS挥发性风味代谢物分析流程。
研究背景
啤酒工业规模庞大——2024年全球市场估值8502亿美元,2023年美国市场约1170亿美元,其中精酿啤酒占总销售额24.7%。然而经过十年高速扩张,精酿市场趋于饱和,品牌差异化与创新风味成为竞争关键。疫情、通胀与气候变化推高原料成本,价格结构波动加剧。小批量酿造不同于工业规模生产,发酵常不一致、原料需求难以预测,风味稳定性受损,市场接受度受限。
啤酒含1000至2000种化合物,香气来自麦芽、酒花、酵母代谢、发酵条件与后熟的共同贡献。顶空固相微萃取/气相色谱–质谱(HS-SPME/GC–MS)比较研究显示,拉格、艾尔与酸啤的挥发性轮廓各异。消费者偏好与接受度深受发酵来源香气化合物影响,而这些化合物多由酿酒酵母在酿造过程中产生。部分菌株通过PAD1/FDC1介导的阿魏酸脱羧反应生成酚类异味,尤以4VG为代表。本研究提出一条基于酵母的转化策略:把不受欢迎的4VG转为香兰素——一种在食品、医药与工业领域均有应用的高值香气成分。
研究方法
2.1 菌株来源
编号007、029、534、588、644、645、1318、1968、3068与T-58的酵母菌株购自商业啤酒酵母,详见表1。大肠杆菌JM109与DH5α(Yeastern Biotech,台湾)用于质粒保存、测序与构建。
【数据】菌株:酵母007、029、534、588、644、645、1318、1968、3068、T-58;大肠杆菌:JM109、DH5α;试剂来源:Yeastern Biotech(台湾);原文未详述其他参数
2.2 酵母培养与形态观察
十株酵母(表1)培养于YPD琼脂平板,含1%酵母提取物(Cyrus Bioscience,台湾)、2%蛋白胨(Protech Technology Enterprise Co., LTD.,台湾)、2%葡萄糖(SHOWA,Echo Chemical Co., LTD.,台湾)与1.5%琼脂(Cyrus Bioscience,台湾)。菌落形态与细胞大小在光学显微镜(CX21,Olympus,日本)下观察。细胞密度以分光光度计(GeneQuant 1300,Biochrom,英国)测定OD600。生长曲线分析的接种量调整为100 mL YPD中OD600 0.05,每小时测定OD600与细胞活力(CFU/mL),持续24 h,以计算世代时间(Stephenson, 2010; Xu et al., 2014)。
【数据】培养基:YPD(1%酵母提取物、2%蛋白胨、2%葡萄糖、1.5%琼脂);接种OD600:0.05;体积:100 mL;监测频率:每小时;时长:24 h;仪器:CX21显微镜、GeneQuant 1300分光光度计
2.3 酵母鉴定与酚类异味基因检测
扩增内转录间隔区片段以鉴定各酵母物种(Ueno et al., 2019)。PCR使用引物对ITS1-F/ITS4-R和/或NS7-F/ITS4-R(表2)(Toju et al., 2012),在LabCycler 96(SensoQuest,德国)上进行。PCR产物连接至TA载体(Yeastern Biotech,台湾)并转化大肠杆菌JM109。质粒用Plasmid Miniprep Kit(ARROWTEC,台湾)提取,由Genomics(台湾)测序。序列经BLAST比对NCBI数据库分析。酵母中POF相关基因PAD1与FDC1的存在以基因特异性引物PAD1-F/PAD1-R与FDC1-F/FDC1-R(表2)经PCR评估。PCR产物经琼脂糖凝胶电泳分析。
【数据】引物:ITS1-F/ITS4-R、NS7-F/ITS4-R、PAD1-F/PAD1-R、FDC1-F/FDC1-R;PCR仪:LabCycler 96;载体:TA vector;宿主:E. coli JM109;测序服务:Genomics(台湾);原文未详述PCR循环参数
2.4 酵母转化子构建
催化POF化合物4VG转化为香兰素的香兰素转化基因SeNCED参考Tang等(Tang et al., 2018)。基因序列针对酿酒酵母进行密码子优化,由OmicsBio(台湾)合成。合成SeNCED经KpnI酶切,连接至GAL1启动子控制下的pYES2表达载体,生成pYES2-SeNCED构建体。KanMAX选择标记盒从pKlac2-α-Kan质粒扩增,经NheI酶切连接至pYES2-SeNCED,生成用于香兰素生物合成途径工程的pYES2-SeNCED-G418。pYES2-SeNCED-G418按Simon与McEntee方法(Simon & McEntee, 1989)并参照Huang等(Huang et al., 2024)的修改,电穿孔导入酿酒酵母感受态细胞。电穿孔后,细胞涂布于补充200 μg/mL G418(Cyrus Bioscience,台湾)的YPG琼脂,30 °C培养至菌落形成。SeNCED的存在经PCR及琼脂糖凝胶电泳确认。
【数据】基因:SeNCED;载体:pYES2;启动子:GAL1;酶切位点:KpnI、NheI;选择标记:KanMAX;抗生素:G418 200 μg/mL;培养基:YPG琼脂;温度:30 °C;电穿孔方法:Simon & McEntee(1989)经Huang et al.(2024)修改
2.5 定量PCR(qPCR)检测SeNCED基因表达
野生型与转化酿酒酵母菌株培养于5 mL YPD或YPG(10 g/L酵母提取物[Cyrus Bioscience,台湾];20 g/L蛋白胨[Protech Technology Enterprise Co., LTD.,台湾];2%葡萄糖或半乳糖[SHOWA,Echo Chemical Co., LTD.,台湾]),补充200 μg/mL G418,30 °C。培养物于12、24、48与72 h收获。总RNA用NucleoSpin RNA Kit(Macherey-Nagel,德国)按厂商说明提取,RNA样品存于−80 °C。第一链cDNA用SuperScript™ IV First-Strand Synthesis System Kit(Thermo Fisher Scientific,美国)合成。所得cDNA存于−20 °C备用。qPCR在96孔板(MB-Q96-S,Gunster Biotech,台湾)中进行,使用50 ng/μL cDNA与靶向SeNCED的基因特异性引物(表2)。管家基因TAF10(Teste et al., 2009)作为内参。反应在qPCR系统(Biometra, 846–070-000,德国)上按下述热循环条件进行(Teste et al., 2009):95 °C初始变性10 min,随后45个循环的95 °C变性15 s与60 °C退火60 s。相对基因表达用2^–ΔΔCt法计算(Livak & Schmittgen, 2001),其中ΔΔCt = ΔCt(处理)– ΔCt(未处理),ΔCt = Ct(样品)– Ct(TAF10)。
【数据】培养体积:5 mL;培养基:YPD或YPG(10 g/L酵母提取物、20 g/L蛋白胨、2%葡萄糖或半乳糖);G418:200 μg/mL;温度:30 °C;取样时间:12、24、48、72 h;cDNA用量:50 ng/μL;内参基因:TAF10;变性:95 °C 10 min;循环:45次(95 °C 15 s,60 °C 60 s);RNA储存:−80 °C;cDNA储存:−20 °C
2.6 蛋白质印迹
蛋白提取时,转化子No. 06、No. 26与No. 31于30 °C培养24与48 h。培养后的酵母细胞在裂解缓冲液(50 mM磷酸钠,pH 7.4;1 mM PMSF;1 mM EDTA;5%甘油;6 M尿素)中用硅珠(425–600 μm,G8772,Sigma,美国)于匀浆器(CLUBIO Prep-CB24,台湾)中裂解。裂解液于4 °C、13,000 rpm离心10 min澄清,随后用10%三氯乙酸(TCA)沉淀。沉淀用冷丙酮(Macron,美国)洗涤三次,风干,重悬于30 μL 4× LDS缓冲液(GenScript,美国)。样品95 °C加热5 min,进行SDS-PAGE分析。蛋白转膜按Huang等(Huang et al., 2024)使用全湿式快速蛋白质印迹系统(eBlot L1 Transfer System,GenScript,美国)。SeNCED检测时,PVDF膜与HRP-6× His一抗(1:5000,ProteinTech,美国)孵育。内参检测时,膜与GAPDH一抗(1:20,000,Elabscience,美国)孵育,随后与HRP偶联山羊抗兔IgG二抗(1:5000,GeneTex,美国)孵育。化学发光检测用ECL™试剂(Amersham,英国),信号由ImageQuant LAS 4000系统(GE,美国)捕获。ImageJ软件用于以GAPDH归一化条带强度并评估SeNCED表达水平。
【数据】菌株:No. 06、No. 26、No. 31;温度:30 °C;时间:24、48 h(No. 26另测72 h);裂解缓冲液:50 mM磷酸钠pH 7.4、1 mM PMSF、1 mM EDTA、5%甘油、6 M尿素;硅珠:425–600 μm;离心:13,000 rpm、10 min、4 °C;TCA:10%;LDS缓冲液:30 μL 4×;加热:95 °C 5 min;SeNCED一抗:1:5000;GAPDH一抗:1:20,000;二抗:1:5000;目标蛋白分子量:54.8 kDa
2.7 基于阿魏酸消耗的菌株筛选试验
十株酵母培养于补充100 mg/L阿魏酸的YPD。120 h后,每份培养物取200 μL上清测定阿魏酸浓度并计算推断的4VG生成潜力。酿酒酵母野生型645与转化菌株在YPD或YPG中预培养,转化子补充200 μg/mL G418,200 rpm、30 °C培养12–16 h。培养物调整OD600后,以初始OD600 0.05接种至100 mL新鲜培养基。发酵于30 °C进行5天,添加或不添加100 mg/L阿魏酸,阿魏酸在培养开始时加入且不再补加。于0、24、48、72、96与120 h各取1 mL样品,用微量离心机(Tominaga,台湾)6400 rpm离心,上清用于后续分析。阿魏酸消耗按Chen等(Chen et al., 2021)方法测定,用微板分光光度计(Beckman Coulter,美国)定量。200 μL上清在325 nm记录吸光度以确定阿魏酸浓度。校准曲线按Mertens等(Mertens et al., 2017)方法建立,使用溶于ddH₂O的阿魏酸标准品(Acros Organics B.V.B.A,美国),浓度1、2、3、4、5、6、7、8、9、10、15、20与100 mg/L。阿魏酸浓度(mg/L)按函数(1)计算:(1) y = x − 0.0668 / 0.0085,y为阿魏酸浓度(mg/L),x为325 nm记录的吸光度值,R² = 0.9994。阿魏酸消耗计算如下:酵母对阿魏酸的摄取量由初始阿魏酸浓度(100 mg/L)减去培养基中残留阿魏酸浓度获得;随后以生物量归一化的总阿魏酸消耗量,由除以干细胞重(D……原文此处节选截断)。
【数据】阿魏酸初浓度:100 mg/L;筛选时长:120 h;取样体积:200 μL;检测波长:325 nm;标准品浓度:1–100 mg/L(13个点);校准曲线:y = (x − 0.0668)/0.0085,R² = 0.9994;预培养:200 rpm、30 °C、12–16 h;接种OD600:0.05;发酵体积:100 mL;发酵温度:30 °C;发酵时长:5天;取样时间点:0、24、48、72、96、120 h;离心:6400 rpm
2.8 香兰素产量定量与数据分析
(原文节选未包含此小节,故不译。)
研究结果
3.1 酵母菌株特性
十株酵母在YPD琼脂上培养1–2天,于100×放大下观察菌落形态(图1A)。所有菌株均呈纯净、光滑、灰白色菌落。通过绘制生长曲线评估10株酵母的生长动力学,并计算世代时间(小时/代,Min/N)(图1B;表1)。酿酒酵母007(95.4 min)、1318(103.2 min)与1968(87.6 min)的生长速率较其他菌株慢,其余菌株生长曲线一致。酵母菌株经引物对ITS1-F/ITS4-R和/或NS7/ITS4(Toju et al., 2012)扩增ITS区PCR鉴定。序列比对结果(表1)将S. p. 029鉴定为Wickerhamomyces anomalus(100%同源性),S. c. 3068鉴定为Saccharomyces kudriavzevii(100%同源性)。由于基于ITS的鉴定对近缘或杂交酿造酵母分辨率有限,亦参考了相应商业菌株可得的全基因组信息。基于公开的全基因组信息,WLP029被归为Saccharomyces pastorianus 029(Langdon et al., 2019),Wyeast 3068被归为Saccharomyces cerevisiae 3068(Garge et al., 2024)。其余八株鉴定为酿酒酵母,序列同源性>99%。乙醇与乙酸乙酯产量经GC定量,样品浓度见图1C。酿酒酵母588乙酸乙酯产量最高(3.7 mg/mL),其次为酿酒酵母534(0.67 mg/mL)与酿酒酵母007(0.62 mg/mL)。乙醇产量最高见于酿酒酵母3068(1.05%),其次为酿酒酵母645(0.98%),其余菌株均低于0.3%。
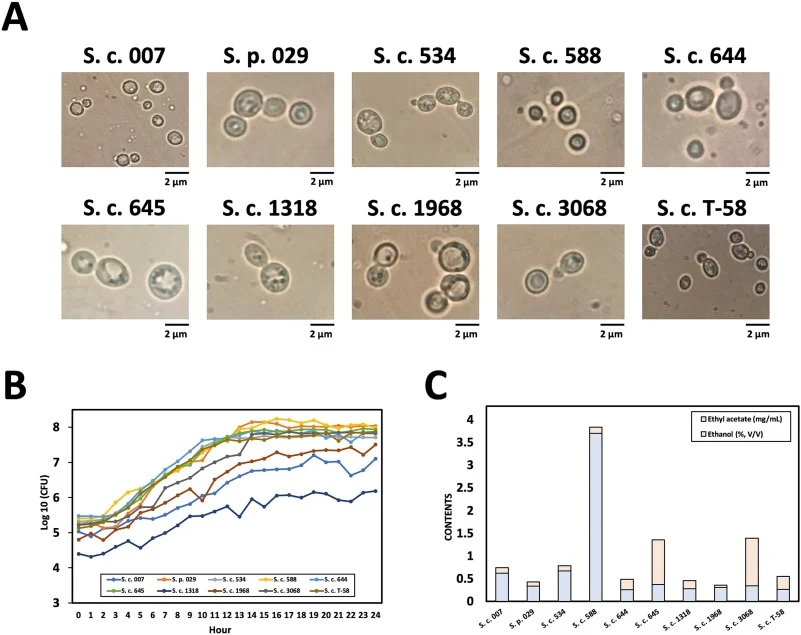
【数据】培养时间:1–2天;放大倍数:100×;世代时间:007为95.4 min、1318为103.2 min、1968为87.6 min;ITS同源性:W. anomalus 100%、S. kudriavzevii 100%、其余8株>99%;乙酸乙酯:588为3.7 mg/mL、534为0.67 mg/mL、007为0.62 mg/mL;乙醇:3068为1.05%、645为0.98%、其余<0.3%
3.2 POF相关基因分析与推断的4VG生成潜力
为评估各菌株推断的4VG生成潜力,对PAD1与FDC1进行PCR与测序分析,并测定阿魏酸消耗作为POF活性的功能指标。负责将阿魏酸转化为4VG的PAD1与FDC1基因,在除S. p. 029外的所有菌株中均被检出(图2A)。基于ITS的系统发育树见图2B,推断的4VG生成潜力作为关联表型信息标注于树上。基于阿魏酸消耗,推断4VG生成潜力最高的为酿酒酵母645(65.89%),其次为酿酒酵母3068(57.27%)。其余菌株均低于20%。因此,选择酿酒酵母645进行后续代谢工程。
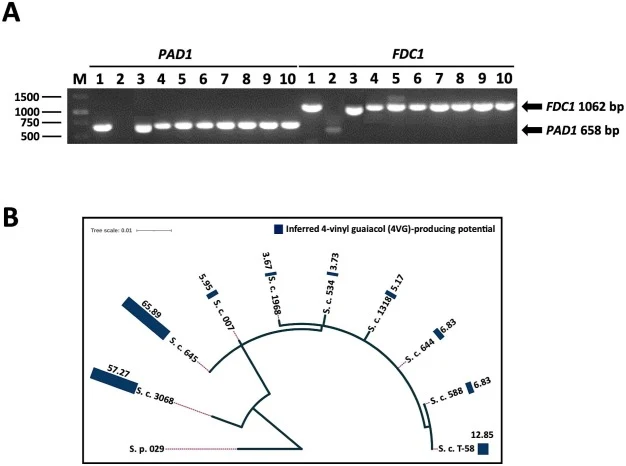
【数据】基因:PAD1、FDC1(除S. p. 029外均检出);4VG生成潜力:645为65.89%、3068为57.27%、其余<20%;阿魏酸初浓度:100 mg/L(见2.7)
3.3 香兰素生物合成途径的构建
为建立经POF转化的香兰素生物合成途径(图3A),携带9-顺式环氧类胡萝卜素双加氧酶基因(SeNCED)的表达质粒pYES2-SeNCED-G418经电穿孔导入酿酒酵母645。选取三个潜在转化子No. 6、No. 26与No. 31用于下游分析。为评估SeNCED蛋白表达,三个转化子于30 °C培养24与48 h。此外,No. 26另检测72 h以评估延长表达情况。提取总蛋白并以蛋白质印迹分析,靶向54.8 kDa的SeNCED蛋白。各时间点表达水平见图3B(上panel)。No. 06在24 h表达最高,而No. 26在24与48 h之间表达稳定。GAPDH作为内参见图3B(下panel)。为验证表达准确性,用ImageJ软件以对内参归一化SeNCED水平。如图3B所示,No. 06在24 h表达最高,但至48 h急剧下降。No. 26在24 h表达第二高,并在48与72 h维持稳定水平。No. 31虽在24 h表达最低,但至48 h虽略有下降仍超过No. 06。因此,所有转化子均被选入香兰素产量比较分析。
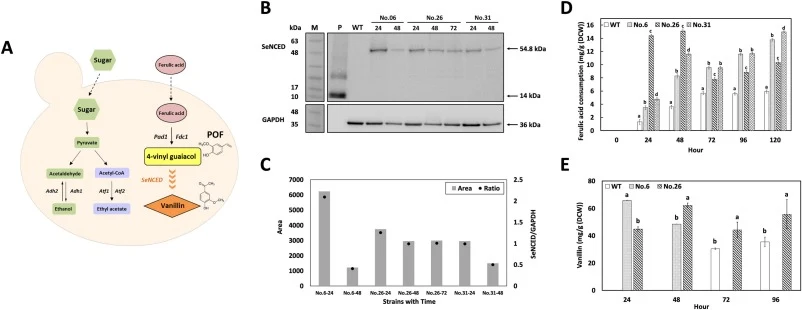
【数据】质粒:pYES2-SeNCED-G418;宿主:S. cerevisiae 645;转化子:No. 6、No. 26、No. 31;培养温度:30 °C;取样时间:24、48 h(No. 26另测72 h);目标蛋白:SeNCED 54.8 kDa;内参:GAPDH;No. 06:24 h最高、48 h急剧下降;No. 26:24 h第二高、48–72 h稳定;No. 31:24 h最低、48 h超过No. 06
3.4 阿魏酸消耗与香兰素产量定量
测定野生型酿酒酵母645与转化子No. 6、No. 26、No. 31随时间变化的阿魏酸消耗,以评估香兰素产量(图3D)。24 h时,消耗水平(mg/g DCW)分别为1.32 ± 0.38、3.49 ± 0.27、14.40 ± 0.23与4.77 ± 0.24。48 h时,这些值增至3.60 ± 0.26、8.29 ± 0.33、15.11 ± 0.31与11.60 ± 0.19。72至120 h,No. 6与No. 31的阿魏酸消耗高于No. 26。总体而言,No. 26在24与48 h阿魏酸摄取最高,而No. 6与No. 31至120 h超过之。基于阿魏酸消耗效率,选取No. 6与No. 26比较香兰素产量。HPLC结果(图3E)显示,No. 06在24与48 h分别产65.74 ± 0.19与48.49 ± 0.05 mg/g DCW,但72 h后未检出香兰素。相反,No. 26在24与48 h产44.85 ± 1.69与62.1 ± 1.75 mg/g DCW,并在72与96 h维持产量,分别为44.25 ± 5.72与55.63 ± 10.67 mg/g DCW。野生型菌株至72 h才开始产香兰素,72与96 h产量分别为30.49 ± 0.51与35.43 ± 3.48 mg/g DCW。与蛋白质印迹结果比较,SeNCED表达与香兰素产量呈强相关。No. 06在24 h表达与产量较高,但48 h后急剧下降。相反,No. 26在72 h内维持稳定蛋白表达与持续香兰素生产,在持续香兰素生物合成上表现更优。
【数据】阿魏酸消耗(mg/g DCW):24 h为WT 1.32 ± 0.38、No. 6 3.49 ± 0.27、No. 26 14.40 ± 0.23、No. 31 4.77 ± 0.24;48 h为WT 3.60 ± 0.26、No. 6 8.29 ± 0.33、No. 26 15.11 ± 0.31、No. 31 11.60 ± 0.19;香兰素(mg/g DCW):No. 06 24 h 65.74 ± 0.19、48 h 48.49 ± 0.05、72 h后未检出;No. 26 24 h 44.85 ± 1.69、48 h 62.1 ± 1.75、72 h 44.25 ± 5.72、96 h 55.63 ± 10.67;WT 72 h 30.49 ± 0.51、96 h 35.43 ± 3.48
3.5 碳氢化合物产量分析
野生型酿酒酵母645与转化子No. 6、No. 26、No. 31的乙醇产量分别为0.84 ± 0.03%、0.85 ± 0.03%、0.90 ± 0.10%与0.79 ± 0.09%,无显著差异(P > 0.05)(图4A)。乙酸乙酯产量在野生型为42.95 ± 2.04 μg/mL,各转化子为37.77 ± 2.09、37.69 ± 1.04与37.28 ± 0.12 μg/mL。统计分析显示野生型乙酸乙酯产量显著高于转化子(P < 0.05),转化子之间无显著差异(图4B)。碳氢化合物代谢物包括乙醇、异戊醇、苯乙醇、乙酸乙酯、乙酸丁酯、乙酸异戊酯、己酸乙酯与辛酸乙酯,经GC定量并以热图可视化(图4C)。醇浓度归一化为1%,酯浓度归一化为5 mg/mL。12 h时,未补充阿魏酸培养的野生型乙醇水平最高。异戊醇水平在No. 6与No. 31的48 h升高,与是否添加阿魏酸无关。苯乙醇产量在所有菌株间无显著差异(P > 0.05)。酯类方面,乙酸乙酯、乙酸丁酯或辛酸乙酯水平在菌株间无显著差异(P > 0.05),与阿魏酸补充无关。值得注意的是,No. 6在补充阿魏酸培养基的24 h产乙酸异戊酯最高。此外,其在未补充的24 h与补充的48 h己酸乙酯水平最高,表明酯类生物合成能力增强。
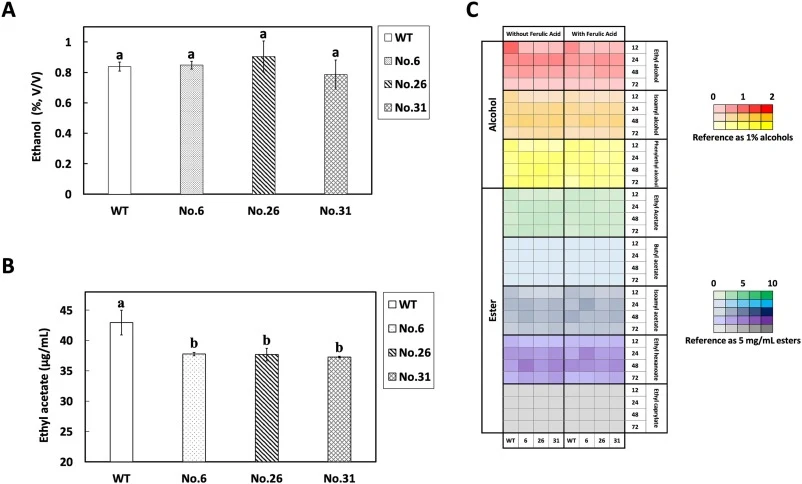
【数据】乙醇:WT 0.84 ± 0.03%、No. 6 0.85 ± 0.03%、No. 26 0.90 ± 0.10%、No. 31 0.79 ± 0.09%(P > 0.05);乙酸乙酯:WT 42.95 ± 2.04 μg/mL、No. 6 37.77 ± 2.09、No. 26 37.69 ± 1.04、No. 31 37.28 ± 0.12 μg/mL(WT vs 转化子 P < 0.05);归一化:醇1%、酯5 mg/mL;苯乙醇:P > 0.05;乙酸乙酯/乙酸丁酯/辛酸乙酯:P > 0.05;No. 6乙酸异戊酯最高:24 h(补充阿魏酸);No. 6己酸乙酯最高:24 h(未补充)、48 h(补充)
3.6 经HS-SPME-GC–MS的香气化合物分析
挥发性化合物经HS-SPME-GC–MS分析并以热图可视化(图5A)。检出化合物类别包括醇、酸、酯、烷烃、醛、醚、酚、酮与烯烃。本实验检出的宽泛化合物类别与近期HS-SPME/GC–MS研究一致,表明啤酒与酒花相关挥发性轮廓涵盖多个化学家族,包括醇、酯、醛、酸、萜烯、酚类化合物与烃类(Herkenhoff et al., 2024a; Herkenhoff, Praia, et al., 20……原文此处节选截断)。
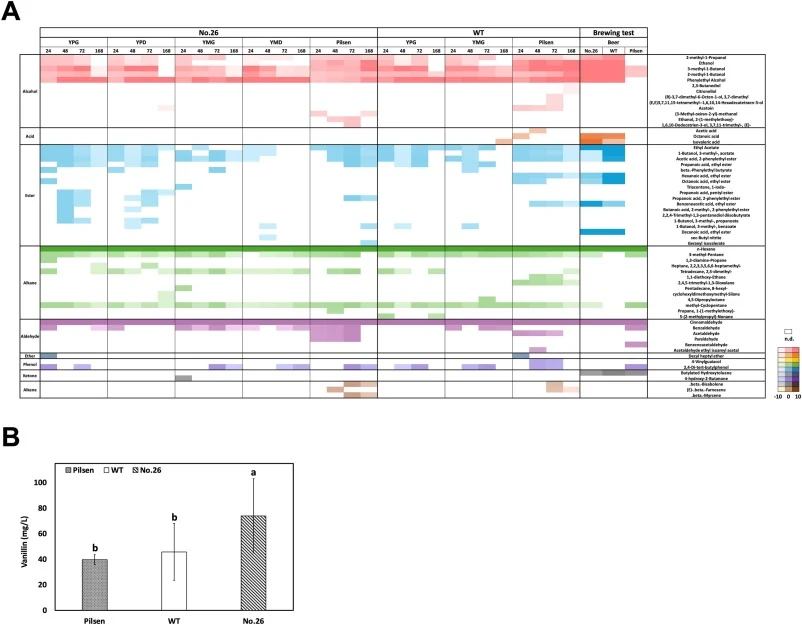
【数据】分析平台:HS-SPME-GC–MS;检出类别:醇、酸、酯、烷烃、醛、醚、酚、酮、烯烃(共9类);原文其余定量数值未详述(节选截断)
讨论与解读
本研究比较了十株商业酵母的生长速率、乙醇与乙酸乙酯产量及推断4VG生成潜力。酿酒酵母588虽细胞密度较高,但推断4VG生成潜力低于645与3068。总体上,乙酸乙酯与推断4VG生成潜力呈负相关,乙醇水平与4VG正相关。乙酸乙酯由乙醇与乙酰辅酶A经醇乙酰转移酶Atf1与Atf2合成(Nancolas et al., 2017)。阿魏酸消耗与4VG生成潜力增强可能使代谢流转向苯丙烯酸途径,减少用于酯合成的乙酰辅酶A(Vuralhan et al., 2003)。此外,阿魏酸与4VG等芳香中间体积累可造成代谢胁迫,进而抑制脂质与酯类生物合成(Hazelwood et al., 2008)。因此,PAD1/FDC1活性升高可能通过竞争乙酰辅酶A与NADPH间接抑制乙酸乙酯生产。该负相关仍需进一步实验验证,但既有研究支持芳香酸积累改变碳流分布、限制酯合成的观点(Hazelwood et al., 2008; Vuralhan et al., 2003)。9-顺式环氧类胡萝卜素双加氧酶蛋白(SeN……原文节选截断)。
编译者解读:把"异味前体"变"高值香料"是本案最巧妙之处——不删除POF路径,而是在其下游接一个裂解酶,把4VG直接氧化为香兰素,碳流不改道、只改终点。No. 26的价值不在峰值产量(65.74 mg/g DCW 的 No. 06 更高),而在48–96 h的持续输出,这对分批酿造的时间窗更友好。局限也明显:香兰素本身是香气活性物,过量会带来新的风味偏移;SeNCED依赖GAL1诱导与G418抗性,离食品级无标记菌株尚有距离。真正落地还需在真实麦汁基质中评估4VG残留与感官阈值。
参考来源
期刊:Innovative Food Science & Emerging Technologies, 2026
DOI: 10.1016/j.ifset.2026.104884
DOI: 10.1016/j.ifset.2026.104884