来源:Highly efficient production of 1,3-propanediol by CRISPR-Cas12a-edited Klebsiella pneumoniae using glycerol and lignocellulosic hydrolysate as co-substrates(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
1,3-丙二醇(1,3-PDO)是聚酯材料尤其是PTT的关键单体,市场需求持续增长。本研究在肺炎克雷伯菌S2中建立并系统优化了异源CRISPR-Cas12a基因编辑系统,单基因编辑效率达100%、双基因同时编辑效率达75%。通过多基因敲除阻断副产物途径、异源表达甘油合成模块并优化启动子,重构了"葡萄糖-甘油-1,3-PDO"代谢网络。以葡萄糖和甘油共底物补料分批发酵,工程菌产1,3-PDO达1003.7 mmol/L(76.4 g/L),以甘油计得率0.83 mol/mol,生产强度27.9 mmol/L/h;以木质纤维素水解液为共底物时仍达981.1 mmol/L(74.7 g/L)。
研究背景
1,3-PDO广泛应用于聚酯材料、医药和化妆品行业,其中聚对苯二甲酸丙二醇酯(PTT)是主要下游产品。随着市场需求持续增长,开发高效、低成本的1,3-PDO生物合成技术已成为全球研究焦点。甘油是生物柴油工业的主要副产物,供应充足、价格低廉,通过生物途径将其转化为1,3-PDO兼具环境与经济效益,已成为甘油高值化利用的核心路径。另一方面,木质纤维素水解液是丰富的可再生碳源,可替代传统粮食基发酵底物,不仅降低发酵成本,还能缓解能源与环境压力,为1,3-PDO的可持续生产提供了替代底物方案,其分步或集成转化路径可依据不同工业应用需求进行调整。肺炎克雷伯菌是兼性厌氧革兰氏阴性菌,天然具有较高的1,3-PDO生产能力,被广泛认为是有前景的生产宿主。
研究方法
2.1 菌株与质粒
大肠杆菌DH5α购自生工生物工程(上海)股份有限公司,作为DNA操作的标准克隆宿主。肺炎克雷伯菌S2(由肺炎克雷伯菌DSM 2026突变而来)保藏于本实验室,作为代谢工程与发酵实验的宿主菌株。所有涉及肺炎克雷伯菌S2的实验均在生物安全二级(BSL-2)条件下进行。
【数据】菌株:大肠杆菌DH5α(克隆宿主)、肺炎克雷伯菌S2(宿主菌株,源自DSM 2026);生物安全等级:BSL-2;试剂来源:生工生物工程(上海)股份有限公司
2.2 培养基与培养条件
LB培养基含NaCl 10 g/L、蛋白胨10 g/L、酵母提取物5 g/L。LB固体培养基另加琼脂20 g/L。肺炎克雷伯菌S2发酵培养基含:40 g/L或20 g/L甘油或葡萄糖、(NH4)2SO4 6 g/L、KH2PO4 0.5 g/L、K2HPO4·3H2O 1.2 g/L、酵母提取物3 g/L、CaCO3 2 g/L、微量元素溶液2 mL。微量元素溶液配制如下:准确称取MgSO4·7H2O 0.1 g、FeSO4·7H2O 5 g、ZnCl2 0.07 g、Na2MoO4·2H2O 0.035 g、H3BO3 0.06 g、CoCl2·6H2O 0.2 g、CuSO4·5H2O 0.03 g、NiCl2·6H2O 0.025 g、MnSO4·4H2O 0.08 g,溶于4 mL HCl中,用去离子水定容至1 L。若需进行克隆筛选,培养基中补充50 μg/mL卡那霉素、50 μg/mL阿普霉素、30 μg/mL氯霉素、100 μg/mL氨苄青霉素和100 μg/mL壮观霉素。摇瓶发酵在带透气封口的250 mL锥瓶中进行,装液量50 mL发酵培养基。共底物发酵时,辅助底物单独灭菌后无菌加入发酵培养基,保持终工作体积50 mL。将LB培养基过夜培养的成熟种子液(OD600 = 2.8–3.2)以2%(v/v)接种量接入发酵培养基。发酵在37°C、200 rpm下进行12–24 h。补料分批发酵在5.0 L生物反应器中进行,含2.0 L无菌发酵培养基,甘油浓度40 g/L。共底物发酵时,培养基中补充0.2 L单独灭菌的共底物。将10%(v/v)成熟种子液接入生物反应器。发酵条件维持37℃、250 rpm,用5 mol/L NaOH自动控制pH为7.0。初始培养阶段溶解氧耗尽后即达到厌氧状态。36 h发酵期间通过控制补料将残余甘油浓度维持在大约20 g/L。木糖提取后的玉米芯残渣由纤维素、半纤维素和木质素组成,其水解液经纤维素酶水解获得,再用旋转蒸发仪浓缩。浓缩木质纤维素水解液含75.0 g/L葡萄糖和6.6 g/L木糖,以及1.2 g/L 5-羟甲基糠醛(5-HMF)和0.9 g/L糠醛,未检测到香草醛。其他潜在抑制性化合物,包括额外的酚类化合物和弱有机酸,本研究未进行定量。将不同量的浓缩木质纤维素水解液补充到甘油发酵培养基中,获得一系列具有确定水解液与甘油质量比的共底物发酵体系。水解液单独灭菌后无菌加入含甘油培养基,充分混匀。各摇瓶发酵组的初始浓度和可溶性糖组成在发酵开始时测定。
【数据】LB培养基:NaCl 10 g/L、蛋白胨10 g/L、酵母提取物5 g/L;LB固体:琼脂20 g/L;发酵培养基:甘油或葡萄糖40或20 g/L、(NH4)2SO4 6 g/L、KH2PO4 0.5 g/L、K2HPO4·3H2O 1.2 g/L、酵母提取物3 g/L、CaCO3 2 g/L、微量元素2 mL;抗生素:卡那霉素50 μg/mL、阿普霉素50 μg/mL、氯霉素30 μg/mL、氨苄青霉素100 μg/mL、壮观霉素100 μg/mL;摇瓶:250 mL锥瓶、装液50 mL、接种量2%(v/v)、37°C、200 rpm、12–24 h;种子液OD600:2.8–3.2;生物反应器:5.0 L、装液2.0 L、甘油40 g/L、共底物0.2 L、接种量10%(v/v)、37℃、250 rpm、pH 7.0(5 mol/L NaOH)、残余甘油约20 g/L;水解液:葡萄糖75.0 g/L、木糖6.6 g/L、5-HMF 1.2 g/L、糠醛0.9 g/L、香草醛未检出
2.3 质粒构建
构建psgRNA-frdA质粒时,使用在线工具(https://crispor.gi.ucsc.edu/)设计靶向frdA基因(编码延胡索酸还原酶α亚基)的crRNA序列,以鉴定高特异性gRNA,随后由生工生物工程(上海)股份有限公司合成。基于肺炎克雷伯菌S2基因组序列(NCBI GenBank:GCA_037137355.1),通过PCR扩增frdA基因上下游各约500 bp片段作为供体DNA。以psgRNAv1-empty-1质粒为模板,通过PCR扩增卡那霉素抗性基因片段和sacB基因。最后,使用ClonExpress Ultra One Step Cloning Kit V2(诺唯赞生物科技股份有限公司,C116)组装psgRNA-frdA质粒。与psgRNA-frdA质粒不同,用作筛选标记的氯霉素抗性基因片段以pMTL83151质粒为模板通过PCR扩增。pMTL83151-lac-cas12a-frdA质粒同样使用ClonExpress Ultra One Step Cloning Kit V2组装。pTrc99a-GPD1-GPP2-kan质粒的构建方法为:通过反向PCR扩增pTrc99a-GPD1-GPP2中缺失氨苄青霉素抗性基因的片段,然后使用ClonExpress Ultra One Step Cloning Kit V2与卡那霉素抗性基因盒融合。此外,pTrc99a-trc-GPD1-GPP2和pTrc99a-GI1.6-GPD1-GPP2质粒同样通过反向PCR扩增后无缝克隆构建。
【数据】靶基因:frdA;同源臂长度:约500 bp;质粒:psgRNA-frdA、psgRNAv1-empty-1、pMTL83151、pMTL83151-lac-cas12a-frdA、pTrc99a-GPD1-GPP2、pTrc99a-GPD1-GPP2-kan、pTrc99a-trc-GPD1-GPP2、pTrc99a-GI1.6-GPD1-GPP2;试剂盒:ClonExpress Ultra One Step Cloning Kit V2(C116);基因组登录号:GCA_037137355.1
2.4 工程菌株构建
为在肺炎克雷伯菌S2基因组中进行基因缺失,构建了单质粒和双质粒CRISPR-Cas12a编辑系统。以靶向frdA基因的双质粒CRISPR-Cas12a系统为例,将携带p15a-lac-cas12a的肺炎克雷伯菌S2在补充50 µg/mL阿普霉素、0.6 mmol/L EDTA、13 mmol/L L-阿拉伯糖和40 mmol/L乳糖的LB培养基中,于37°C、200 rpm培养。通过电穿孔将psgRNA-frdA导入肺炎克雷伯菌S2/p15a-lac-cas12a,随后在37°C孵育。对于迭代基因组编辑,将双质粒系统在含10%蔗糖和50 µg/mL阿普霉素的LB琼脂平板上于37°C培养12 h以消除psgRNA-frdA质粒。为验证质粒丢失,将单菌落依次点接于含单一抗生素(50 µg/mL阿普霉素)或双抗生素(50 µg/mL阿普霉素和50 µg/mL卡那霉素)的LB琼脂平板上。仅在含50 µg/mL阿普霉素的LB琼脂上生长的菌落被选为阿普霉素抗性克隆。所有阳性克隆均通过菌落PCR进一步确认。对于单质粒CRISPR-Cas12a编辑系统,将肺炎克雷伯菌S2在补充0.6 mmol/L EDTA的LB培养基中于37℃、200 rpm培养。通过电穿孔将pMTL83151-lac-cas12a-frdA质粒导入肺炎克雷伯菌S2,随后在37℃孵育。对于迭代基因组编辑,将单质粒系统在无抗生素LB琼脂平板上于37℃培养12 h以消除pMTL83151-lac-cas12a-frdA质粒。所有阳性克隆均通过菌落PCR确认。
【数据】质粒:p15a-lac-cas12a、psgRNA-frdA、pMTL83151-lac-cas12a-frdA;抗生素:阿普霉素50 µg/mL、卡那霉素50 µg/mL;诱导剂:EDTA 0.6 mmol/L、L-阿拉伯糖13 mmol/L、乳糖40 mmol/L;培养条件:37°C、200 rpm;蔗糖反选:10%蔗糖、37°C、12 h;电穿孔后孵育温度:37°C
2.5 分析方法
发酵液中生物量以600 nm光密度(OD)表示,使用紫外-可见分光光度计(UV-5100,上海美谱达仪器有限公司)测定。发酵液中物质含量,即甘油、1,3-PDO、乙酸、乳酸、琥珀酸、2,3-丁二醇、乙醇和糖,使用高效液相色谱(HPLC)(Waters,美国米尔福德)分析,配备Aminex HPX 87H柱(300 × 7.8 mm)(Bio-Rad,美国赫拉克勒斯)、Waters 2414示差检测器和Waters 2707自动进样器。本研究未测定3-羟基丙醛(3-HPA)和3-羟基丙酸(3-HP)。取1 mL发酵液以12,000 rpm离心10 min去除细胞,获得发酵上清液。上清液适当稀释后经0.22 μm水相滤膜过滤,再进行HPLC进样分析。HPLC系统以5 mmol/L H2SO4溶液为流动相,流速0.6 mL/min,柱温55°C,检测器温度35°C,进样体积20 μL。
【数据】检测波长:600 nm;色谱柱:Aminex HPX 87H(300 × 7.8 mm);流动相:5 mmol/L H2SO4;流速:0.6 mL/min;柱温:55°C;检测器温度:35°C;进样体积:20 μL;离心:12,000 rpm、10 min;滤膜:0.22 μm;未测定物质:3-HPA、3-HP
2.6 代谢物回收分析
(原文此节内容不完整,仅至"For metabolite recovery a"处,后续内容未提供。)
研究结果
3.1 肺炎克雷伯菌S2中异源CRISPR-Cas12a基因编辑系统
将来自F. novicida的Cas12a系统异源引入肺炎克雷伯菌S2,以构建高效基因编辑平台。鉴于肺炎克雷伯菌S2具有多重耐药性,我们优化了抗生素筛选严格度和诱导剂浓度,以在维持足够表达水平的同时最小化代谢负担并降低假阳性率。我们以frdA基因为靶标评估编辑效率,比较单质粒系统(pMTL83151-lac-cas12a-frdA)和双质粒系统(p15a-lac-cas12a和psgRNA-frdA)的性能(图1 A-C)。未经λ-Red诱导时,两个系统仅达到15%(3/20)的编辑效率。诱导L-阿拉伯糖诱导型λ-Red系统后,双质粒系统的编辑效率提高至95%(19/20),sacB介导的蔗糖反选阳性率接近100%(图1D、I、J)。这些结果证实λ-Red显著促进Cas12a介导的肺炎克雷伯菌基因组编辑。该双质粒设计解决了多组件共表达可能导致的质粒不稳定性和高代谢负担问题。因此,选择双质粒系统作为后续优化的框架。尽管Cas12a在肺炎克雷伯菌中展现出良好的应用前景,但其编辑效率受多种因素影响,包括核酸酶活性、引导RNA设计和目标菌株的遗传背景(Vialetto et al., 2024)。随后对启动子调控策略的评估表明,四环素诱导型Ptet系统在0.4 µg/mL四环素下达到最大编辑效率85%(17/20)。然而,与先前报道一致(Lutz and Bujard, 1997; Reich and Libby, 2025),该系统观察到约5%的基础渗漏表达。相比之下,乳糖诱导型Plac系统在40 mM乳糖下编辑效率达95%(图1D),更适合高保真编辑应用。因此,该系统被选用于所有后续实验。针对PAM序列,我们测试了四种常见PAM序列:TTTA、TTTG、TTTC和TTTT。所有测试序列的编辑效率均高于85%,其中TTTA PAM达到100%编辑效率(图1E)。通过菌落PCR在阴性对照中未检测到靶位点的非预期缺失。评估同源修复模板(HRT)长度的影响发现,编辑效率与同源臂长度呈正相关。当HRT长度为750 bp时,阳性编辑率达100%,HRT长度在500至1500 bp范围内编辑率均保持在90%以上(图1F)。最后,我们构建了含两个靶向ldhA和adhE的直接重复(DR)间隔序列的crRNA阵列,由强启动子PJ23119控制。经过一轮转化和诱导后,两个靶基因的同时编辑效率达到75%(图1G、H)。这些结果证实CRISPR-Cas12a系统可在肺炎克雷伯菌中实现两个基因组位点的同时编辑,为其在序贯代谢工程中的应用奠定了坚实基础。
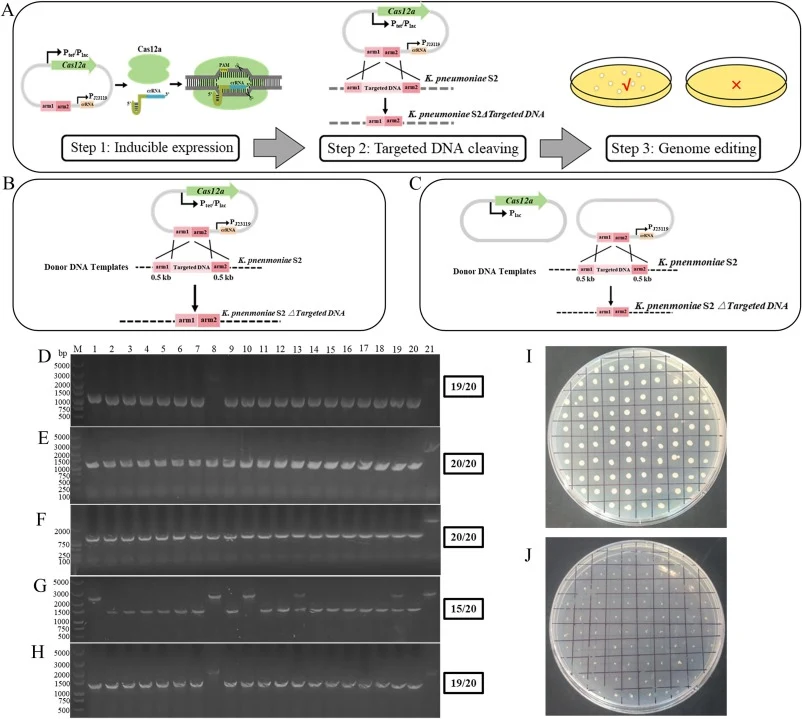
【数据】编辑效率:无λ-Red诱导15%(3/20);双质粒+λ-Red诱导95%(19/20);sacB蔗糖反选阳性率接近100%;Ptet系统最大编辑效率85%(17/20),四环素0.4 µg/mL,基础渗漏约5%;Plac系统编辑效率95%,乳糖40 mM;PAM序列TTTA、TTTG、TTTC、TTTT编辑效率均>85%,TTTA达100%;HRT长度750 bp时阳性编辑率100%,500–1500 bp编辑率>90%;双基因同时编辑效率75%
3.2 代谢工程重定向碳通量至1,3-PDO生产
在肺炎克雷伯菌中,甘油通过甘油代谢的还原分支转化为目标产物1,3-PDO。然而,该过程与甘油代谢的氧化分支并行,后者产生琥珀酸、乙酸、乳酸、乙醇和2,3-丁二醇等副产物,消耗了本可流向1,3-PDO合成的碳通量。为限制氧化途径通量并提高甘油到1,3-PDO的转化效率,我们阻断了产生这些氧化分支副产物的代谢途径。首先,从肺炎克雷伯菌S2中敲除负责琥珀酸和乙酸合成的基因(frdA和poxB),获得突变株肺炎克雷伯菌S2 ΔAB。该修饰使1,3-PDO浓度提高至243.4 mmol/L,以甘油计得率为0.54 mol/mol,同时琥珀酸积累降低61.4%至2.2 mmol/L(表1)。尽管乙酸未显著降低,但总副产物水平从123.7 mmol/L降至117.3 mmol/L,证实frdA和poxB的敲除减少了总体副产物形成。接下来,我们聚焦于通过从肺炎克雷伯菌S2 ΔAB中敲除adhE和ldhA来消除竞争NADH的途径。所得菌株肺炎克雷伯菌S2 ΔABEA的1,3-PDO得率从0.54提高至0.55 mol/mol甘油,但1,3-PDO浓度从243.4降至226.4 mmol/L。浓度下降伴随残余甘油升高、生物量降低以及琥珀酸(13.6 mmol/L)、乙酸(25.6 mmol/L)和2,3-丁二醇(100.5 mmol/L)积累增加,表明该敲除损害了甘油利用并触发了碳通量向替代副产物途径的补偿性再分配。GlpK催化甘油转化为甘油-3-磷酸(G3P),后者是将甘油衍生碳引入中心碳代谢的关键中间体。敲除glpK可减少流向磷酸二羟丙酮(DHAP)生成途径的碳通量,从而缓解与1,3-PDO生物合成途径的底物竞争。为进一步限制甘油通量进入氧化代谢,我们敲除甘油激酶编码基因glpK,获得突变株肺炎克雷伯菌S2 ΔABEAK。如表1所示,1,3-PDO积累增加至264.0 mmol/L,而乙酸(17.3 mmol/L)和2,3-丁二醇(74.0 mmol/L)等氧化副产物的积累进一步减少。这些结果证实更大比例的甘油被重定向至dhaB-dhaT依赖的还原途径。随后,我们敲除ptsG(编码葡萄糖磷酸转移酶系统(PTS)的组分),以探究缓解PTS介导的碳分解代谢阻遏(CCR)是否能进一步提高1,3-PDO产量。所得菌株肺炎克雷伯菌S2 ΔABEAKG产1,3-PDO 267.6 mmol/L,以甘油计得率0.62 mol/mol,与其亲本菌株肺炎克雷伯菌S2 ΔABEAK相比仅略有改善。在甘油-葡萄糖共代谢过程中也观察到类似结果:两菌株间1,3-PDO浓度(264.8 mmol/L)和得率(0.61 mol/mol甘油)无显著差异。这些发现表明,在所测试条件下,葡萄糖转运和CCR并非1,3-PDO生物合成的主要瓶颈。近期研究表明,DhaM是PTS依赖性DHA激酶复合物的组分,催化二羟丙酮(DHA)磷酸化为DHAP。据报道,敲除dhaM可阻断DHA重新进入糖酵解,而不显著影响dha操纵子的转录(Sun et al., 2025)。据此,我们从肺炎克雷伯菌S2 ΔABEAKG中敲除dhaM。在纯甘油发酵条件下,1,3-PDO浓度略降至242.2 mmol/L(表1)。这一观察表明DhaM介导的DHA循环途径有助于维持基础细胞代谢。然而,在甘油-葡萄糖共代谢系统中,肺炎克雷伯菌S2 ΔABEAKGM的1,3-PDO浓度进一步增加至287.1 mmol/L,以甘油计得率0.66 mol/mol,同时副产物琥珀酸(4.9 mmol/L)和乙酸(14.5 mmol/L)浓度维持在较低水平。这些结果表明,在共底物条件下,dhaM失活更有效地阻断了DHA回流进入糖酵解。该代谢重构成功将甘油衍生碳通量重定向至还原途径,同时保留了……
【数据】S2 ΔAB:1,3-PDO 243.4 mmol/L,得率0.54 mol/mol甘油,琥珀酸降低61.4%至2.2 mmol/L,总副产物从123.7降至117.3 mmol/L;S2 ΔABEA:1,3-PDO 226.4 mmol/L,得率0.55 mol/mol甘油,琥珀酸13.6 mmol/L、乙酸25.6 mmol/L、2,3-丁二醇100.5 mmol/L;S2 ΔABEAK:1,3-PDO 264.0 mmol/L,乙酸17.3 mmol/L、2,3-丁二醇74.0 mmol/L;S2 ΔABEAKG:1,3-PDO 267.6 mmol/L,得率0.62 mol/mol甘油;甘油-葡萄糖共代谢:1,3-PDO 264.8 mmol/L,得率0.61 mol/mol甘油;S2 ΔABEAKGM纯甘油:1,3-PDO 242.2 mmol/L;S2 ΔABEAKGM甘油-葡萄糖共代谢:1,3-PDO 287.1 mmol/L,得率0.66 mol/mol甘油,琥珀酸4.9 mmol/L、乙酸14.5 mmol/L
讨论与解读
本研究开发了肺炎克雷伯菌高效CRISPR-Cas12a基因组编辑平台,可实现单基因精确修饰(效率100%)和双基因同时编辑(效率75%),为复杂代谢网络的理性重构提供了稳健的技术框架。通过系统敲除竞争碳通量和消耗还原力的途径基因,并结合外源甘油合成模块的表达,抑制了副产物形成并将碳通量重定向至1,3-PDO生物合成途径。结果凸显了协调代谢模块和氧化还原平衡在高效产物合成中的关键作用。发酵实验揭示了甘油与辅助碳源(葡萄糖、木糖和阿拉伯糖)共代谢的代谢基础。使用木糖和阿拉伯糖时生产性能的提升可能与其通过PPP代谢有关,而葡萄糖在特定条件下也有助于性能改善。在5.0 L生物反应器中以葡萄糖和甘油为共底物,肺炎克雷伯菌S2 ΔABEAKGM-1–2产1,3-PDO 1003.7 mmol/L(76.4 g/L),以甘油计得率0.83 mol/mol,生产强度27.9 mmol/L/h。以甘油和木质纤维素水解液为共底物时,该菌株维持981.1 mmol/L(74.7 g/L)的1,3-PDO产量……
编译者解读
该研究的方法学价值在于将Cas12a编辑工具成功移植到多重耐药的肺炎克雷伯菌中,并通过启动子、PAM和同源臂长度的系统优化将编辑效率推至100%,双基因同时编辑75%的效率在非模式菌中尤为难得。代谢工程策略逻辑清晰——先堵副产物,再调还原力,最后用共底物策略平衡碳流。值得关注的是dhaM敲除在纯甘油与共底物条件下效果相反,提示代谢网络重构需匹配底物供给模式。局限在于水解液中抑制物未全面定量,且1,3-PDO得率距理论值仍有提升空间。
参考来源
Li Wang et al., Bioresource Technology, 2026. DOI: 10.1016/j.biortech.2026.135793
DOI: 10.1016/j.biortech.2026.135793