来源:Deciphering ornithine decarboxylase from Escherichia coli Nissle to drive efficient high-value putrescine bioproduction(Journal of the Taiwan Institute of Chemical Engine)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
腐胺是聚酰胺生产的关键单体,传统依赖石油路线或低效发酵。本研究系统筛选了ODC通路中的精氨酸酶与鸟氨酸脱羧酶,发现短芽孢杆菌精氨酸酶(BbArg)催化效率优异,而E. coli Nissle的SpeC(E)在0.25–1.0 M底物范围内实现完全转化,优于MG1655来源的SpeC(M)。抑制动力学揭示SpeC(M)受腐胺严重竞争性抑制,SpeC(E)则为非竞争性抑制。双细胞BbArg-SpeC(E)体系经四轮重复使用后产量达1.1 M(96.8 g/L),生产强度16.9 g/L/h。
研究背景
合成聚酰胺(尼龙)以热稳定性、耐磨性和机械强度著称,在纺织、工程部件和生物材料中不可或缺。但传统石油基生产带来环境污染与资源枯竭问题,向生物基单体转型迫在眉睫。腐胺作为四碳二胺,既是细胞生理必需的多胺,也是聚酰胺合成的关键单体。近期研究证明,发酵单体衍生的全生物基PA 4,4性能可媲美石化尼龙,商业PA 4,6(Stanyl®)预计到2030年保持5.3%的年增长率。腐胺还被探索用于新型溶剂系统加速CO₂捕集。
植物和微生物中腐胺合成有两条主要途径:鸟氨酸脱羧酶(ODC)途径和精氨酸脱羧酶(ADC)途径。在大肠杆菌中,ODC途径通过生物合成酶SpeC或生物降解酶SpeF将鸟氨酸直接转化为腐胺。ADC途径则需要多步反应。传统发酵面临调控复杂和产量低的瓶颈,全细胞生物转化通过ODC途径提供了简化替代方案,但酶效率和产物抑制仍是关键限制。
研究方法
2.1 材料
分子克隆用DNA寡核苷酸由IDT(美国)合成。RealStart DNA聚合酶和T4连接试剂盒购自Yeastern Biotech(台湾),限制性内切酶购自NEB(美国)。细胞培养用Luria-Bertani(LB)培养基含10 g/L氯化钠(Sigma-Aldrich,美国)、10 g/L胰蛋白胨和5 g/L酵母提取物(Cyrusbioscience,台湾)。L-精氨酸单盐酸盐作为反应底物购自Cyrusbioscience(台湾)。卡那霉素抗性(Km)、磷酸吡哆醛(PLP)、异丙基β-D-1-硫代吡喃半乳糖苷(IPTG)和二乙基乙氧基亚甲基丙二酸酯(DEEMM)购自Sigma-Aldrich(美国)。腐胺和L-鸟氨酸分别购自Alfa Aesar(美国)和Thermo Scientific(美国)。乙腈和甲醇为HPLC级,购自ECHO Chemical(台湾)。
【数据】培养基:LB含10 g/L NaCl、10 g/L胰蛋白胨、5 g/L酵母提取物;试剂:Km、PLP、IPTG、DEEMM;底物:L-精氨酸单盐酸盐;其余原文未详述
2.2 质粒构建
编码短芽孢杆菌(Brevibacillus brevis)精氨酸酶(BbArg)和嗜酸硫化杆菌(Sulfobacillus acidophilus)精氨酸酶(SaArg)的基因由IDT合成并经过密码子优化。精氨酸酶DNA片段用含EcoRI和PstI的DNA寡核苷酸扩增,进一步克隆到pSIT-Duet中,分别得到pSIT-T71-BbArg和pSIT-T71-SaArg。另一方面,SpeC和SpeF从E. coli MG1655和EcN的基因组DNA中用RealStart DNA聚合酶扩增,随后用NdeI和XhoI酶切并克隆到pET28a(+)中,分别生成pET28a-SpeC(M)、pET28a-SpeC(E)、pET28a-SpeF(M)和pET28a-SpeF(E)。
【数据】限制性内切酶:EcoRI、PstI、NdeI、XhoI;载体:pSIT-Duet、pET28a(+);菌株来源:E. coli MG1655和EcN基因组DNA;其余原文未详述
2.3 培养条件
本研究所用大肠杆菌菌株列于表S1。DH5α用于DNA克隆,BL21(DE3)用于蛋白生产作为生物催化剂。预培养在含50 μg/mL Km的LB培养基中进行。将1.5%(v/v)细胞接种到50 mL LB中,在37°C、200 rpm振荡培养。当OD600达到0.6时,用0.1 mM IPTG诱导后将温度切换至30°C。对于携带精氨酸酶的细胞,诱导时补充1 μg/L Mn²⁺。
【数据】菌株:DH5α(克隆)、BL21(DE3)(表达);Km浓度:50 μg/mL;接种量:1.5%(v/v);培养基体积:50 mL;培养温度:37°C;诱导温度:30°C;IPTG浓度:0.1 mM;诱导OD600:0.6;Mn²⁺浓度:1 μg/L;转速:200 rpm
2.4 酶动力学参数测定
BbArg的动力学参数(Vmax和Km)通过含OD600为0.01的全细胞生物催化剂与5至40 mM精氨酸和2 mM Mn²⁺反应5分钟测定。对于SaArg,全细胞生物催化剂OD600为1.25,精氨酸浓度1–10 mM,反应10分钟。纯化的SpeC(0.01 mg/mL)和SpeF(0.05 mg/mL)分别用2.5–50 mM和0.25–25 mM鸟氨酸底物测定。两种酶均在100 mM磷酸缓冲液(pH 7.0)含1 mM PLP、37°C、200 rpm振荡条件下反应5分钟。反应通过加入30%三氯乙酸终止。SpeC的抑制常数(Ki-Put)通过向反应混合物中加入2–10 mM腐胺作为抑制剂反应5分钟,随后进行HPLC分析测定。Km和Vmax通过Lineweaver–Burk图方程(I)计算,kcat通过方程(II)计算。竞争性和非竞争性抑制的Ki分别通过方程(III)和(IV)计算。
(I) 1/v = [Km + [S]] / (Vmax × [S])
(II) kcat = Vmax / [E]
(III) 1/v = [Km / (Vmax × [S]) + 1/Vmax] + Km × [I] / (Vmax × Ki × [S])
(IV) 1/v = Km × (1 + 1/Ki [I]) + [S] × (1 + 1/Ki [I]) / (Vmax × [S])
【数据】BbArg全细胞OD600:0.01;精氨酸浓度:5–40 mM;Mn²⁺浓度:2 mM;反应时间:5 min;SaArg全细胞OD600:1.25;精氨酸浓度:1–10 mM;反应时间:10 min;SpeC浓度:0.01 mg/mL;SpeF浓度:0.05 mg/mL;鸟氨酸浓度:2.5–50 mM(SpeC)、0.25–25 mM(SpeF);缓冲液:100 mM磷酸缓冲液pH 7.0;PLP浓度:1 mM;温度:37°C;转速:200 rpm;终止液:30%三氯乙酸;抑制剂:腐胺2–10 mM
2.5 全细胞生物转化精氨酸为腐胺
为表征单个生物转化,使用全细胞BbArg(OD 10)与2 mM MnSO₄和精氨酸-HCl在pH 7.0和8.5下反应1小时。鸟氨酸到腐胺的下游转化使用SpeC(M)或SpeC(E)生物催化剂(OD 10和OD 12.5)与不同浓度鸟氨酸-HCl在pH 7.0、含1 mM PLP条件下反应0.5小时。随后,精氨酸到腐胺的连续生物转化(称为两步过程)使用全细胞BbArg(OD 10和5)和SpeC(M)或SpeC(E)(OD 10和12.5)在不同精氨酸供给量0.1至1.0 M、pH 7条件下进行。第一步反应0.5小时,第二步反应2小时,总反应时间2.5小时。为优化两步生物转化,使用经过冷处理(-20°C过夜或-80°C 1小时)的培养物制备的全细胞生物催化剂,以BbArg OD 5和SpeC OD 12.5在1 M精氨酸下进行腐胺生产。为评估重复使用性,通过离心回收全细胞并重悬于新鲜底物中。第二至第四轮循环中,第二步缩短至1小时,总反应时间1.5小时。
【数据】BbArg OD:10(单步)、10和5(两步);MnSO₄浓度:2 mM;pH:7.0和8.5(单步)、7.0(两步);第一步时间:0.5 h;第二步时间:2 h(首轮)或1 h(第二至四轮);总反应时间:2.5 h(首轮)或1.5 h(后续);SpeC OD:10和12.5;PLP浓度:1 mM;精氨酸浓度:0.1–1.0 M;冷处理条件:-20°C过夜或-80°C 1 h
2.6 HPLC分析
样品衍生化参照先前研究[25],包括680 μL 50 mM硼酸盐缓冲液(pH 9)、480 μL 100%甲醇、30 μL 200 mM DEEMM和12 μL样品。衍生化在70°C进行2小时以降解过量DEEMM。衍生化样品用0.22 mM膜过滤后注入反相C18柱(YMC-C18柱,250×4.6 mm,5 mm粒径),柱温维持35°C。流动相A为25 mM乙酸钠,B为100%乙腈,流速1 mL/min,梯度程序:0–2 min,80–75% A;2–12 min,75–20% A;12–14 min,20–80% A;14–16 min,80% A。紫外(UV)检测器监测波长为284 nm。标准品校准曲线见图S1。
【数据】硼酸盐缓冲液:680 μL,50 mM,pH 9;甲醇:480 μL,100%;DEEMM:30 μL,200 mM;样品:12 μL;衍生化温度:70°C;衍生化时间:2 h;过滤膜:0.22 mM;色谱柱:YMC-C18,250×4.6 mm,5 mm;柱温:35°C;流动相A:25 mM乙酸钠;流动相B:100%乙腈;流速:1 mL/min;UV检测:284 nm
2.7 分子对接与分子动力学模拟
目标酶的三维结构使用AlphaFold 3生成[31],鸟氨酸和腐胺的配体坐标从蛋白质数据库(PDB)获取。蛋白-配体对接使用AutoDock Vina GPU 2.0进行[32],使用AutoGrid定义网格尺寸以精确放置在活性位点内。所得复合物在CHARMM-GUI中处理[33],添加氢原子并应用CHARMM36力场对酶和配体进行参数化[34]。每个复合物在TIP3P水盒子中溶剂化,并用Na⁺和Cl⁻离子化以模拟生理条件[35]。分子动力学(MD)模拟在GROMACS 2024.4中进行[36],时间步长2 ps。系统经过能量最小化(10,000次迭代),随后在NVT(0.2 ns)和NPT系综(100 ns)下平衡。温度通过Langevin动力学维持在310 K,压力通过Langevin活塞方法维持在1 atm。范德华相互作用在12 Å处截断,切换函数从10 Å开始[37]。长程静电使用粒子网格Ewald方法计算,网格间距2 Å。模拟轨迹用VMD软件分析[38]以评估结构稳定性和相互作用特性。
【数据】结构预测:AlphaFold 3;对接软件:AutoDock Vina GPU 2.0;力场:CHARMM36;水模型:TIP3P;离子:Na⁺、Cl⁻;MD软件:GROMACS 2024.4;时间步长:2 ps;能量最小化:10,000次迭代;NVT平衡:0.2 ns;NPT平衡:100 ns;温度:310 K;压力:1 atm;范德华截断:12 Å;切换函数起始:10 Å;PME网格间距:2 Å
2.8 使用gmx_MMPBSA计算结合能
结合亲和力使用GROMACS集成的MM-PBSA包计算[39]。分离的蛋白质和配体在溶剂中的总自由能分别用ΔG_protein和ΔG_ligand表示。单个残基对结合能的贡献使用gmx_mmpbsa工具计算和分解。MM-PBSA计算所需的拓扑和参数文件来自GROMACS的MD模拟。对于100 ns轨迹,选择最后稳态纳秒的10,000帧作为MM-PBSA计算的输入。非极性溶剂化能使用SASA模型估算。其他参数与GROMACS模拟中使用的参数一致。
【数据】轨迹长度:100 ns;选取帧数:10,000帧(最后1 ns稳态);非极性溶剂化模型:SASA;其余原文未详述
研究结果
3.1 ODC通路中酶的动力学洞察
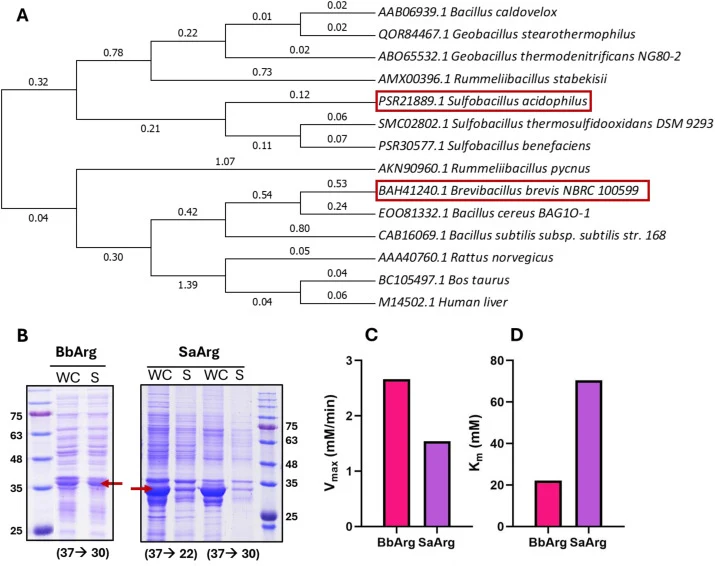
鸟氨酸是鸟氨酸脱羧酶(ODC)通路的关键前体,作为多胺生物合成的入口。鸟氨酸可通过精氨酸酶介导的精氨酸水解酶促生成,而非直接补充。精氨酸酶是一种锰依赖性金属酶,广泛分布于动物、植物、真菌和某些原核生物中,参与氨解毒、多胺前体合成和细胞增殖调控[40,41]。然而在大肠杆菌中,精氨酸酶活性缺失,胍丁胺酶作为多胺合成的主要酶。为解决这一代谢限制,选择异源精氨酸酶进行表征,特别是来自短芽孢杆菌(BbArg)和嗜酸硫化杆菌(SaArg)的精氨酸酶,作为在ODC通路中建立内源性鸟氨酸供应的候选酶。系统发育分析显示,这两种精氨酸酶尽管属于同一门,但占据不同分支,突显了它们的进化分歧(图2A)[40]。虽然两种精氨酸酶均在大肠杆菌中成功表达,但SaArg蛋白表达量有限,即使将培养温度降至22°C也是如此(图2B)。动力学参数通过双倒数图从粗酶制备物中测定(图S2)。BbArg的Vmax为2.66 mM/min,Km为22.1 mM,而SaArg的Vmax为1.54 mM/min,Km为70.5 mM。这些结果表明BbArg在生理条件(pH 7,37°C)下具有更优的催化效率(图2C-D)。
在BbArg将精氨酸酶促转化为鸟氨酸后,下一步是由鸟氨酸脱羧酶(ODC)将其脱羧为腐胺。在大肠杆菌中,存在两种ODC同工酶:生物合成型SpeC,组成型表达以维持细胞生理;生物降解型SpeF,在低pH胁迫下存在鸟氨酸时被诱导[42]。为探究菌株间ODC活性的潜在差异,从E. coli Nissle 1917(EcN)和E. coli K-12 MG1655(MG1655)中检测了SpeC和SpeF。氨基酸序列比对显示,与MG1655相比,EcN的SpeC有9个天然突变,SpeF有24个突变(表S2)。表达分析显示四种ODC均以可溶性形式产生,SpeC(E)表达水平高于SpeC(M),而SpeF(E)和SpeF(M)表达量相当(图S3A-B)。基于双倒数图的动力学表征(图S3C-D)表明,在pH 7和37°C下,SpeC(M)的Vmax为2.37 mM/min,kcat为3.1×10⁵ s⁻¹,而SpeC(E)为2.08 mM/min和2.7×10⁵ s⁻¹(表1)。相比之下,SpeF同工酶催化活性显著较低,SpeF(M)和SpeF(E)的Vmax分别仅为0.007 mM/min和0.002 mM/min。此外,在pH 6.5、7.0和7.5下评估了SpeC(M)和SpeC(E)的动力学参数。如表S3所示,两种SpeC的最适pH均为7.0,具有较高的Vmax和适中的Km值。综上,动力学洞察表明BbArg是生成鸟氨酸更高效的精氨酸酶,并确认SpeC是主导ODC同工酶,最适活性pH为7.0。这些发现强调了酶选择和性质优化在构建稳健ODC通路用于腐胺生物合成中的重要性。
【数据】BbArg:Vmax=2.66 mM/min,Km=22.1 mM;SaArg:Vmax=1.54 mM/min,Km=70.5 mM;SaArg表达温度:22°C;SpeC(M):Vmax=2.37 mM/min,kcat=3.1×10⁵ s⁻¹;SpeC(E):Vmax=2.08 mM/min,kcat=2.7×10⁵ s⁻¹;SpeF(M):Vmax=0.007 mM/min;SpeF(E):Vmax=0.002 mM/min;最适pH:7.0;EcN SpeC突变数:9;EcN SpeF突变数:24
3.2 单个生物催化反应的评估
进一步使用单独BbArg(上游基因)或SpeC(下游基因)在不同底物浓度下检测全细胞生物转化。BbArg的性能也在pH 7.0和8.5两个不同水平下评估。在pH 7时,随着精氨酸供给浓度增加,鸟氨酸生产强度从0.057 M/h逐步上升至0.54 M/h,底物水平从0.1 M增至1 M(图3A)。在pH 8.5时观察到类似趋势,同样实现完全转化(图3B)。由于鸟氨酸是代谢中的关键氨基酸,先前已开发精氨酸酶与脲酶偶联的全细胞生物转化策略以实现高产鸟氨酸合成。先前工作也报道了超过90%的产率,证明精氨酸酶具有优异的催化效率[43–45]。
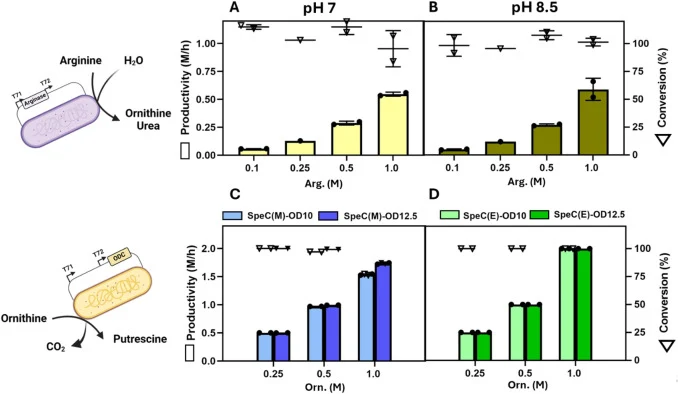
第二步反应使用SpeC将鸟氨酸转化为腐胺。在不同生物催化剂和底物浓度下对MG1655来源的SpeC(SpeC(M))和EcN来源的SpeC(SpeC(E))进行比较分析。使用SpeC(M)在OD 10时,从0.25和0.5 M鸟氨酸中腐胺生产强度分别达到0.5和0.97 M/h,转化率100%(图3C)。进一步将生物催化剂提高至OD 12.5,从1 M鸟氨酸中生产强度从1.53 M/h升至1.7 M/h,转化率85%。值得注意的是,SpeC(E)在所有测试底物浓度下均实现完全转化,未显示抑制迹象,展现出更好的催化性能(图3D)。这一结果突显了E. coli Nissle的适应性潜力,天然突变似乎增强了酶活性并改善了胁迫耐受性。先前工作也发现EcN耐酸酶的天然突变,包括ADC和谷氨酸脱羧酶,在酸性环境中赋予比MG1655更高的活性[29]。因此,高精氨酸水平下观察到的转化率下降并非由于上游利用不完全,而是反映了SpeC(M)活性的下游限制。由于BbArg在pH 7下也表现出互补的催化特性,支持其与SpeC在同一pH下的协同作用。
【数据】pH 7:鸟氨酸生产强度0.057–0.54 M/h(精氨酸0.1–1 M);pH 8.5:完全转化;SpeC(M) OD 10:生产强度0.5 M/h(0.25 M鸟氨酸,100%转化)、0.97 M/h(0.5 M鸟氨酸,100%转化);SpeC(M) OD 12.5:生产强度1.53–1.7 M/h(1 M鸟氨酸,85%转化);SpeC(E):所有浓度完全转化;精氨酸酶+脲酶先前产率:>90%
3.3 集成两步催化高效合成腐胺
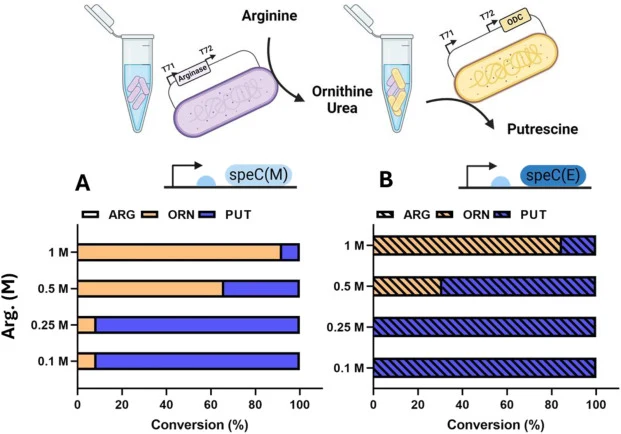
酶级联中的转化效率取决于生物催化剂蛋白水平。含独立质粒的双细胞系统为生物催化剂生产提供了直接策略[23,24]。尽管SpeC(E)表现优于SpeC(M),但仍对两种同工酶进行比较,以阐明其与BbArg偶联时在腐胺生产中的效率。为评估催化稳健性,系统在不同底物浓度、pH和全细胞密度下进行评估。在pH 7、OD 10条件下,精氨酸在所有测试浓度下完全转化为鸟氨酸,但随后向腐胺的转化在高精氨酸水平下下降(图4)。当BbArg与SpeC(M)配对时,从0.1 M和0.25 M精氨酸中腐胺产率达到91.5%,但在较高精氨酸浓度(>0.5 M)下降至9.8%(图4A)。虽然BbArg偶联SpeC(E)在较低底物浓度下实现完全转化,但增加精氨酸供给时也观察到类似的产率效率下降趋势(图4B)。
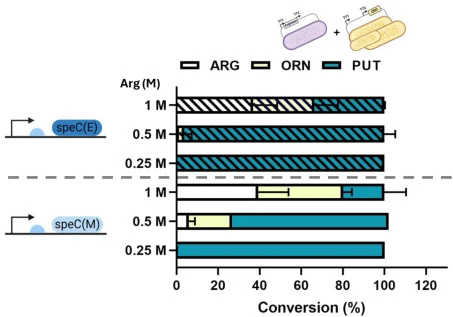
为克服高精氨酸浓度下观察到的限制,将BbArg调整为OD 5,SpeC提高至OD 12.5。如图5所示,降低BbArg仅影响1 M精氨酸时的转化,平均37.5%未转化。在0.5 M精氨酸时,增加SpeC浓度改善了第二步,BbArg偶联SpeC(M)或SpeC(E)分别产率75.2%和96.3%腐胺。最高生产强度为0.193 M/h(16.9 g/L/h),在2.5小时反应中使用SpeC(E)实现。使用ODC通路的最高腐胺产量先前报道为共表达牛精氨酸酶和大肠杆菌SpeC及PLP再生,达到76 g/L产量和3.8 g/L/h生产强度。然而,该系统中较长的反应时间降低了相对于本研究的生生产强度[46]。两步系统揭示底物胁迫是关键限制,促使对鸟氨酸脱羧酶(SpeC)进行抑制分析。
【数据】pH 7、OD 10:精氨酸完全转化为鸟氨酸;BbArg+SpeC(M):0.1和0.25 M精氨酸产率91.5%,>0.5 M降至9.8%;BbArg+SpeC(E):低浓度完全转化;BbArg OD 5+SpeC OD 12.5:1 M精氨酸37.5%未转化;0.5 M精氨酸:SpeC(M)产率75.2%,SpeC(E)产率96.3%;最高生产强度:0.193 M/h(16.9 g/L/h),2.5 h;先前最高产量:76 g/L,3.8 g/L/h
3.4 鸟氨酸脱羧酶的抑制研究
(原文节选在此处中断)
讨论与解读
本研究通过系统酶筛选与详细分子表征,建立了稳健的全细胞生物转化平台用于腐胺生产。来自短芽孢杆菌的BbArg被证明是高效生成鸟氨酸的精氨酸酶,而E. coli Nissle中独特的SpeC(E)在广泛浓度范围内实现鸟氨酸完全转化,超越先前报道的ODC系统。抑制动力学揭示SpeC(M)受腐胺严重竞争性抑制,而SpeC(E)遵循非竞争性模式,使其在产物胁迫下维持活性。MD模拟证实酶稳健性和产物抑制是性能下降的主要原因,而非细胞活力。同时,全细胞效率不仅反映内在酶性质,还反映可溶性表达和系统级背景等因素。总体而言,这些发现凸显了酶筛选和分子表征在解锁可规模化、高性能全细胞生物催化用于可持续腐胺生产方面的力量。
编译者解读:该研究选取益生菌E. coli Nissle作为酶源,利用其天然突变体SpeC(E)规避产物抑制,这一策略颇具启发性——工业菌株的"天然多样性"往往被忽视。双细胞系统设计简洁有效,但两步反应需分别培养两种细胞,工艺放大时成本值得关注。此外,研究未涉及从头合成路径的代谢工程改造,底物精氨酸的供给成本将决定该路线的经济可行性。
参考来源
期刊:Journal of the Taiwan Institute of Chemical Engineers, 2026
DOI: 10.1016/j.jtice.2026.106818
DOI: 10.1016/j.jtice.2026.106818