来源:Dual role of the transcriptional factor NsdD in regulation of fumarate and melanin biosynthesis in Aureobasidium aubasidani GC1 strain(Fungal Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
出芽短梗霉GC1菌株是高效的延胡索酸生产菌。本研究在其基因组中鉴定到一个GATA型锌指转录因子NsdD,并发现它扮演着"双面角色":一方面作为正调控因子促进延胡索酸合成,另一方面作为负调控因子抑制黑色素合成。敲除NSDD基因后,突变株延胡索酸产量从64.79 g/L降至47.46 g/L,却在24小时内大量积累黑色素并形成厚垣孢子。这一发现揭示了单个转录因子协调初级代谢与次级代谢的分子机制。
研究背景
NsdD(Never in sexual development D)是一个全局性调控因子,属于GATA型锌指转录因子家族。该家族蛋白的特征是含有一到两个高度保守的IV型锌指结构(Cys-X2-Cys-X17-20-Cys-X2-Cys),能够识别靶基因启动子中保守的(A/C/T)-G-A-T-A-(A/G)序列。在真菌中,NsdD参与调控有性/无性繁殖、次级代谢、分生孢子形成、微菌核形成、菌丝生长、酵母-菌丝转变、氧化应激响应、胞外酶多糖降解以及附着胞形成等多种生理过程。
此前研究已发现,NsdD在不同出芽短梗霉(Aureobasidium melanogenum)菌株中正调控普鲁兰多糖和聚苹果酸(PMA)的生物合成,同时负调控黑色素合成。然而,单个GATA型转录因子如何同时行使正负调控功能的分子机制尚未完全阐明。延胡索酸((E)-2-丁烯二酸)含有碳碳双键和两个羧基,在食品、饲料和制药领域应用广泛。本研究以产延胡索酸的出芽短梗霉GC1菌株为对象,探究NsdD在延胡索酸和黑色素生物合成中的调控作用。
研究方法
2.1 微生物菌株、培养基和质粒
本研究使用的菌株为阿巴短梗霉(A. aubasidani)DH177的葡萄糖氧化酶缺陷型Δgox突变体(GC1菌株),由本实验室前期研究分离获得(Wei et al., 2023)。高产黑色素的类酵母真菌黑梗霉(A. melanogenum)XJ5-1分离自塔克拉玛干沙漠样品(Jiang et al., 2016),本研究中仅作为对照菌株进行比较。大肠杆菌DH5α感受态细胞由本实验室制备。用于培养类酵母真菌菌株的YPD(酵母提取物、蛋白胨和葡萄糖)培养基以及用于GC1菌株及其突变体生产延胡索酸钙的培养基参照Wei et al. (2024)的描述配制。本研究中用于黑色素生产的PD培养基含100 mL马铃薯提取液,补充2.0 g葡萄糖(Jiang et al., 2016)。携带诺尔丝菌素抗性基因(NAT基因)的敲除载体pfl4A-nat-loxp用于去除目标基因。携带相同NAT基因的敲入载体pNATX13-18S-PGK用于目标基因的回补。为了去除转化子中的抗生素抗性基因(NAT基因)并表达另一个基因,本实验室构建的携带自主复制DNA序列、Cre重组酶基因和潮霉素B抗性基因(HPT基因)的质粒pAMCRE-1用于清除本研究中获得的所有转化子中的NAT基因(Wei et al., 2024)。用于在大肠杆菌DH5α中扩增目标基因的质粒pMD19-T购自中国大连TaKaRa公司。
【数据】菌株:GC1(A. aubasidani DH177 Δgox突变体)、XJ5-1(A. melanogenum,对照)、E. coli DH5α;培养基:YPD、延胡索酸生产培养基、PD培养基(100 mL马铃薯提取液+2.0 g葡萄糖);质粒:pfl4A-nat-loxp、pNATX13-18S-PGK、pAMCRE-1、pMD19-T;抗生素:诺尔丝菌素、潮霉素B;原文未详述其他培养温度和时间
2.2 GC1菌株基因组DNA中NSDD基因的克隆与鉴定
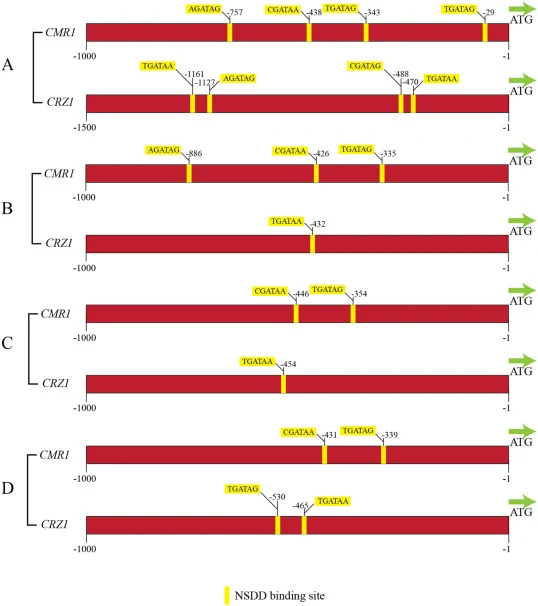
本研究使用的类酵母菌株的基因组DNA使用TIANamp酵母DNA试剂盒(TIANGEN,北京,中国)提取和纯化。用于克隆NSDD基因的正向引物NSD-F和反向引物NSD-R(表S1)基于已测序和注释的阿巴短梗霉DH177基因组DNA(登录号:JADDKP000000000)设计。基因的克隆、测序和鉴定按照Chi et al. (2012)描述的方法进行。核苷酸序列和推导的氨基酸序列使用美国国家生物技术信息中心(NCBI,http://www.ncbi.nlm.nih.gov/Blastat)的开放阅读框(ORF)查找器、blastn和blastx进行分析(表S2)。使用DNAMAN 6.0和Jalview 2.11.4.1软件对扩增的DNA和推导的氨基酸序列进行多序列比对(表S2)。来自不同出芽短梗霉菌株和丝状真菌的NSDD基因的系统发育树使用MEGA 11.0.13版本软件通过邻接法构建(Kumar et al., 2016),Bootstrap值(1000次伪重复)≥71%,以已知的灰葡萄孢(Botrytis cinerea)NSDD基因作为外群(表S2)。本研究中使用的基因启动子使用软件http://www.yeastract.com/formtfsbindingsites.php进行分析。推导蛋白的分子量使用软件https://web.expasy.org/protscale/计算(表S2)。
【数据】试剂盒:TIANamp Yeast DNA Kit(TIANGEN,北京);引物:NSD-F、NSD-R;基因组登录号:JADDKP000000000;软件:DNAMAN 6.0、Jalview 2.11.4.1、MEGA 11.0.13;Bootstrap:1000次伪重复,≥71%;外群:B. cinerea NSDD;原文未详述PCR具体条件
2.3 敲除和敲入质粒的构建
为了从GC1菌株基因组DNA中去除NSDD基因,使用引物NsdD-5F/NsdD-5R和NsdD-3F/NsdD-3R(表S1)分别从基因组DNA中克隆NSDD基因的5′臂和3′臂序列。获得的5′臂和3′臂片段(图S1b)分别用PstI/SalI和BamHI/KpnI酶切后,连接到用相同酶切的质粒pfl4a-loxp中,生成携带诺尔丝菌素(NAT)抗性基因的敲除载体pFL4a-loxp-NSDD(图S1a)。为了解释NsdD在GC1菌株不同突变体中延胡索酸和黑色素生物合成及调控的双重作用,使用引物NSDD-F和NSDD-R(表S1)从GC1菌株的互补DNA(cDNA)中扩增NSDD基因的编码序列(CDS)(图S2b)。获得的PCR产物用MluI/PstI酶切后,连接到用相同酶切的质粒pNATX13-18S-PGK中,形成用于回补不同突变体中被打断的NSDD基因的敲入载体pNATX13-18S-PGK-NSDD(图S2a)。
【数据】引物:NsdD-5F/NsdD-5R、NsdD-3F/NsdD-3R、NSDD-F、NSDD-R;限制酶:PstI、SalI、BamHI、KpnI、MluI;质粒:pfl4a-loxp、pFL4a-loxp-NSDD、pNATX13-18S-PGK、pNATX13-18S-PGK-NSDD;抗性基因:NAT;原文未详述酶切温度和时间
2.4 通过转化分离敲除突变体和回补菌株
将上述构建的敲除载体pfl4a-loxp-NSDD(图S1)用PstI和KpnI酶切,释放的线性DNA片段(5′-arm::PolyA::NAT::PGK::3′-arm)(2715 bp,图S1c)转化到GC1菌株的感受态细胞中,所有获得的敲除突变体在含诺尔丝菌素的YPD平板上培养和纯化。纯化的敲除突变体分别命名为Δnsdd-1、Δnsdd-2、Δnsdd-3、Δnsdd-4、Δnsdd-5、Δnsdd-6、Δnsdd-7、Δnsdd-8、Δnsdd-9和Δnsdd-10。随后,通过将上述携带自主复制DNA序列、Cre重组酶基因和潮霉素B抗性基因(HPT基因)的质粒pAMCRE-1转化到敲除突变体Δnsdd-4的感受态细胞中,从Δnsdd-4中去除NAT基因。质粒pAMCRE-1通过驯化从新转化子中丢失后,获得对诺尔丝菌素和潮霉素B均敏感的转化子。最后,将质粒pNATX13-18S-PGK-NSDD(图S2a)用限制酶SmaI水解,从pNATX13-18S-PGK-NSDD-26S释放的DNA片段(4473 bp)(图S2c)转化到对诺尔丝菌素和潮霉素B均敏感的转化子的感受态细胞中,回补细胞在含诺尔丝菌素的YPD平板上生长和纯化。纯化的回补菌株分别命名为Cnsdd-1、Cnsdd-2、Cnsdd-3、Cnsdd-4、Cnsdd-5和Cnsdd-6。
【数据】线性DNA片段大小:2715 bp;回补DNA片段大小:4473 bp;限制酶:PstI、KpnI、SmaI;敲除突变体:Δnsdd-1至Δnsdd-10(共10个);回补菌株:Cnsdd-1至Cnsdd-6(共6个);抗生素:诺尔丝菌素、潮霉素B;原文未详述转化具体条件(如电击参数)
2.5 延胡索酸和黑色素的生产
将上述获得的野生型菌株GC1、阳性敲除突变体和回补菌株在YPD培养基中于28 °C、180 rpm好氧培养24小时。将5 mL种子培养液(10⁸细胞/mL)转移到300 mL烧瓶中的45.0 mL延胡索酸生产培养基中。烧瓶在28 °C、180 rpm下振荡培养7天。取10 mL培养液在8000 × g下离心5分钟。上清液中所有延胡索酸按照Wang et al. (2018)描述的方法用冷甲醇沉淀并溶解在蒸馏水中,重复相同程序数次直至延胡索酸纯化,如本实验室前期研究(Wei et al., 2023)所证明的,在CaCO₃存在下,本研究使用的野生型菌株GC1不能产生任何普鲁兰多糖和PMA。纯化的延胡索酸干燥后称重,计算每升培养液中延胡索酸的量。同时,培养液中细胞干重按照Chi et al. (2001)描述的方法测定和计算。与此同时,将GC1菌株、敲除突变体Δnsdd-4、回补菌株Cnsdd-5和黑色酵母菌株XJ5-1在PD培养基中于180 rpm、28 °C好氧振荡培养72小时。每12小时记录并拍摄培养液颜色。同时,用配有100×油浸物镜的相差显微镜观察GC1菌株、敲除突变体Δnsdd-4和回补菌株Cnsdd-5的细胞形态。使用cellSens Standard软件记录图像并拍照(Jiang et al., 2020)。GC1菌株、敲除突变体Δnsdd-4和回补菌株Cnsdd-5也在PDA(马铃薯提取液-葡萄糖-琼脂)平板上培养,拍摄平板上形成的菌落。
【数据】培养温度:28 °C;转速:180 rpm;种子培养时间:24 h;种子液浓度:10⁸细胞/mL;种子液体积:5 mL;生产培养基体积:45.0 mL;生产培养时间:7 d;离心条件:8000 × g,5 min;PD培养时间:72 h;观察间隔:每12 h;显微镜物镜:100×油浸;原文未详述延胡索酸沉淀具体温度和时间
2.6 不同阿巴短梗霉菌株黑色素的提取及黑色素含量的定量测定
取200微升GC1菌株、敲除突变体Δnsdd-4和回补菌株的细胞培养液(3 × 10⁷细胞/mL)……
【数据】细胞浓度:3 × 10⁷细胞/mL;培养液体积:200 μL;原文节选在此处中断,后续步骤未详述
研究结果
3.1 GC1菌株中NSDD基因的克隆和生物信息学鉴定
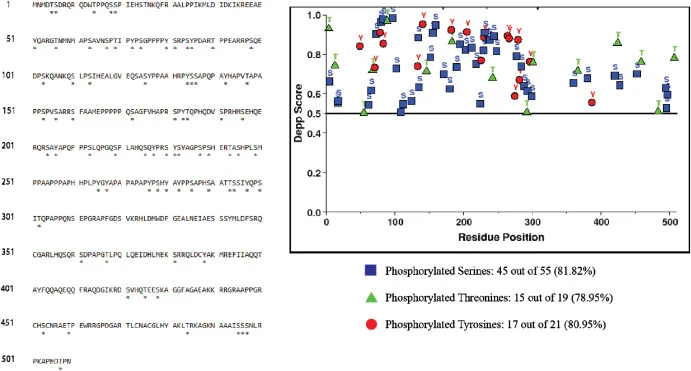
以黑梗霉的推定转录因子NsdD(登录号AXS67923.1)和黑梗霉CBS 110374的假设蛋白M437DRAFT_55951(登录号KEQ59738.1)作为查询序列,在GC1菌株基因组中进行生物信息学搜索(表S2),鉴定出GC1菌株基因组中的NSDD基因。该基因具有1634 bp的开放阅读框(ORF),含两个内含子,编码一个由501个氨基酸组成的56 kDa蛋白(图1)。鉴定出的NsdD蛋白在其N端附近含有保守的QSLPSI基序,在其C端含有GATA型IVb锌指结构域(C-X2-C-X18-C-X2-C),该结构域已被证实能特异性结合靶基因启动子中保守的DNA序列5′-HGATAR-3′(Jiang et al., 2021)(图1)。本研究结果强烈证实,GC1菌株基因组中鉴定出的转录因子NsdD是GATA型转录因子,与其他真菌中发现的相一致(Xin et al., 2020; Song et al., 2022; Chi et al., 2024; Han et al., 2001)。
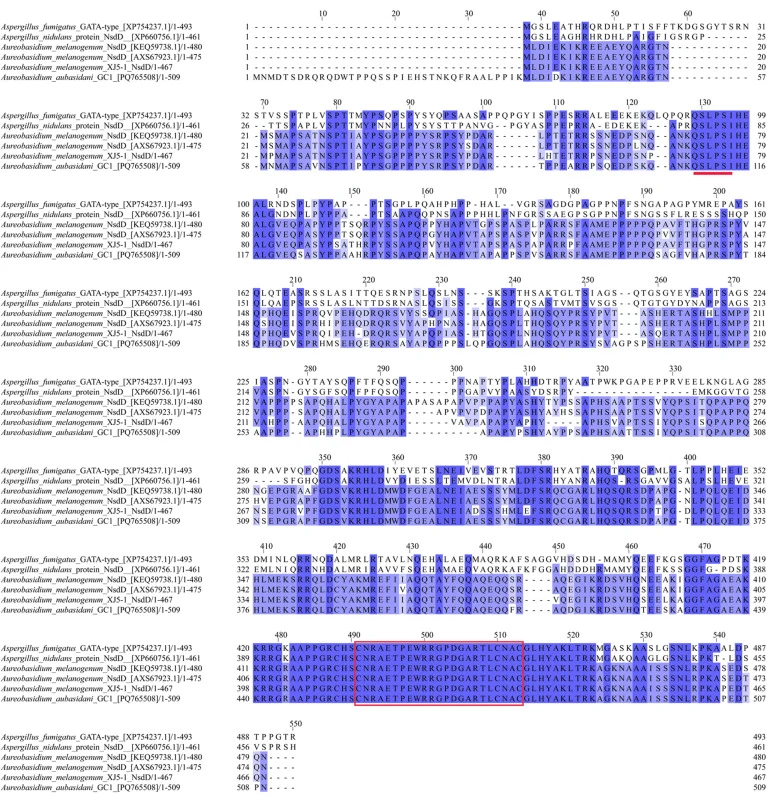
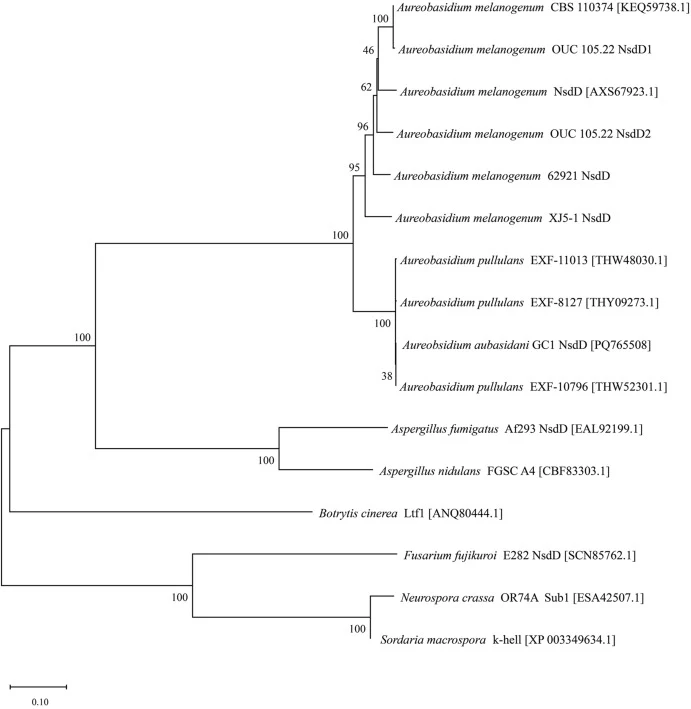
图2结果显示,GC1菌株的NsdD与其他出芽短梗霉属物种的NsdD亲缘关系密切,而与丝状真菌的NsdD亲缘关系较远。特别是,不同出芽短梗霉菌株的NsdD蛋白之间表现出高度相似性,且均含有GATA IVb型转录因子结构域C-X2-C-X18-C-X2-C(图1)。
【数据】ORF长度:1634 bp;内含子数:2个;蛋白大小:56 kDa;氨基酸数:501;保守基序:QSLPSI;锌指结构域:C-X2-C-X18-C-X2-C;靶DNA序列:5′-HGATAR-3′;查询序列登录号:AXS67923.1、KEQ59738.1
3.2 NSDD基因的缺失及敲除突变体和亲本菌株的延胡索酸和黑色素生产及相关基因表达
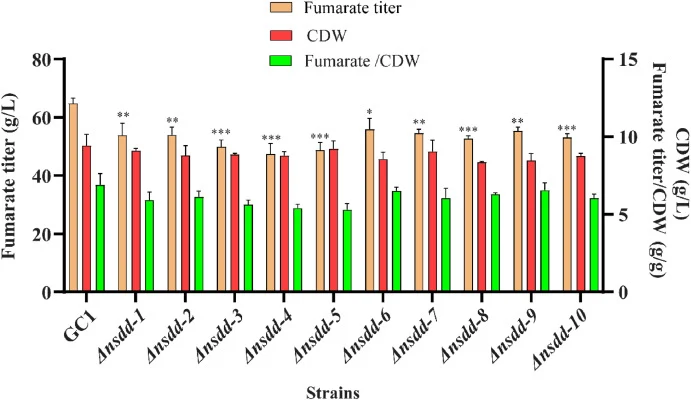
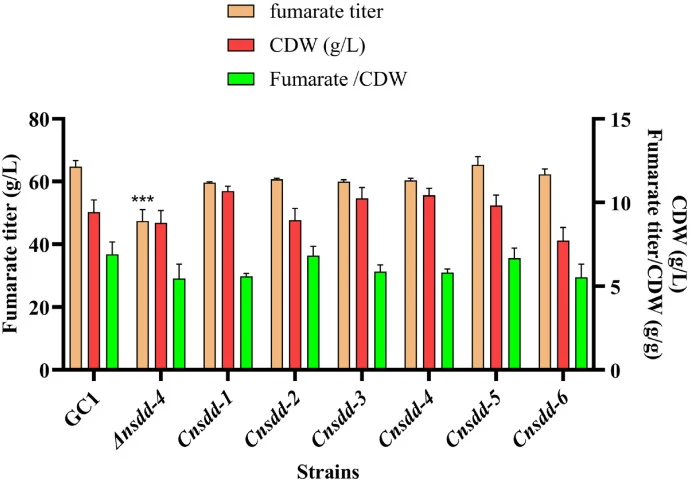
为了确认NsdD是否参与延胡索酸生物合成,按照材料与方法所述从GC1菌株基因组DNA中完全去除NSDD基因。图3结果表明,Δnsdd敲除突变体产生的延胡索酸远少于其亲本菌株GC1,且其细胞生长也受到负面影响。特别是,Δnsdd-4突变体在7天好氧培养中仅产生47.46 g/L延胡索酸,细胞量为8.78 g/L,而其亲本菌株GC1在相同条件下可产生64.79 g/L延胡索酸,细胞量达到9.44 g/L(图3)。这些结果强烈表明,NSDD基因的缺失确实对延胡索酸生物合成产生了负面影响。
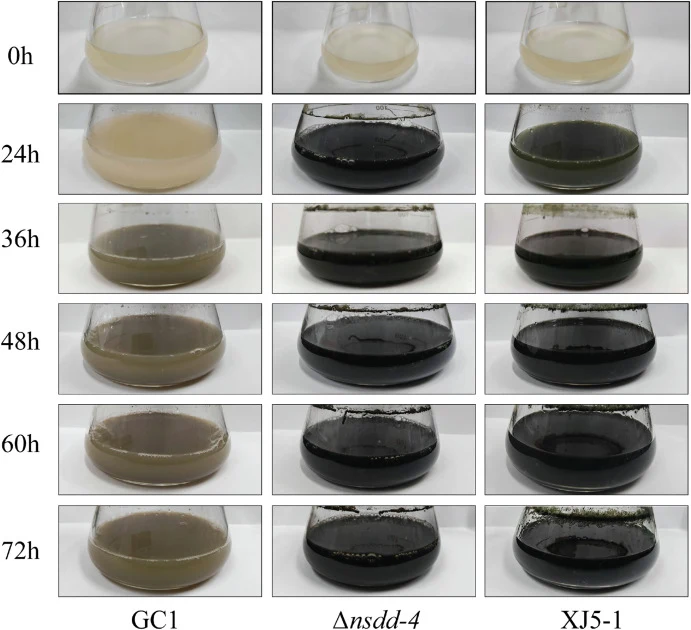
相反,图4结果显示,与亲本菌株GC1相比,NSDD基因的缺失增加了Δnsdd-4突变体的黑色素产量并缩短了黑色素生产时间。例如,Δnsdd-4突变体在培养24小时内就开始产生大量黑色素,而GC1菌株在36小时内才开始产生少量黑色素。即使是从沙漠中分离的高产黑色素黑梗霉XJ5-1(Jiang et al., 2016)在24小时内产生的黑色素也少于Δnsdd-4突变体(图4)。
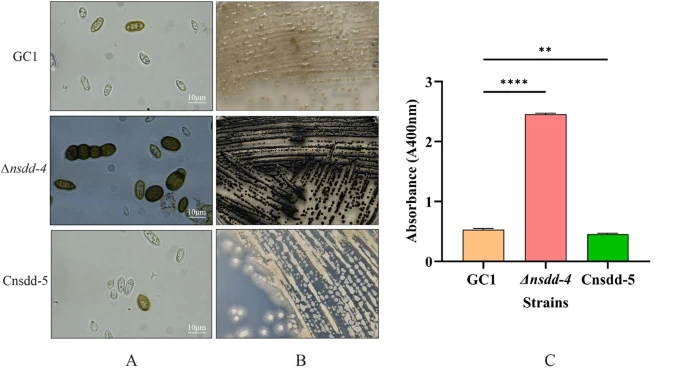
此外,图5显示了NSDD基因缺失导致Δnsdd-4突变体形成大量(约62%)含黑色素的厚垣孢子(图5A),并使Δnsdd-4突变体产生的黑色素远多于其亲本菌株GC1(图5B–C)。此外,从图5A可以观察到,厚垣孢子可以萌发形成双厚垣孢子或厚垣孢子链。这些结果强烈证实,NSDD基因的缺失确实对黑色素生物合成产生了正面影响。图3–5的所有结果表明,GATA型转录因子NsdD在阿巴短梗霉中扮演着延胡索酸生物合成正调控因子和黑色素生物合成负调控因子的双重角色。
在本实验室前期研究中(Wei et al., 2023),已证实OUC参与阿巴短梗霉中延胡索酸的生物合成,且由CRZ1基因编码的Crz1——Ca²⁺信号通路的关键特异性转录激活因子——在CaCO₃存在下能显著调控延胡索酸生物合成。为了确认NsdD是否能正调控延胡索酸生物合成相关基因的表达(Wei et al., 2023),按照材料与方法部分所述测定了延胡索酸生物合成和调控相关基因的转录水平。图6结果显示,在Δnsdd-4突变体中NSDD基因被完全消除后,除OTC基因外,大多数参与延胡索酸生物合成和调控的基因的相对转录水平与亲本菌株GC1中大多数参与延胡索酸生物合成和调控的基因相比也下调了,表明结果与图3所示一致。
相反,在Δnsdd突变体中NSDD基因被完全消除后,大多数参与黑色素生物合成和调控的基因的相对转录水平(Jiang et al., 2020)与亲本菌株GC1中大多数基因相比上调了(表1),表明结果与图4和图5所示一致。这些结果强烈表明,具有双重角色的NsdD确实正调控大多数延胡索酸生物合成相关基因的表达,但负调控所有黑色素生物合成相关基因的表达。
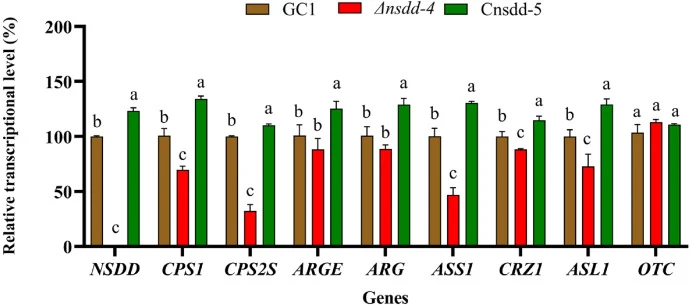
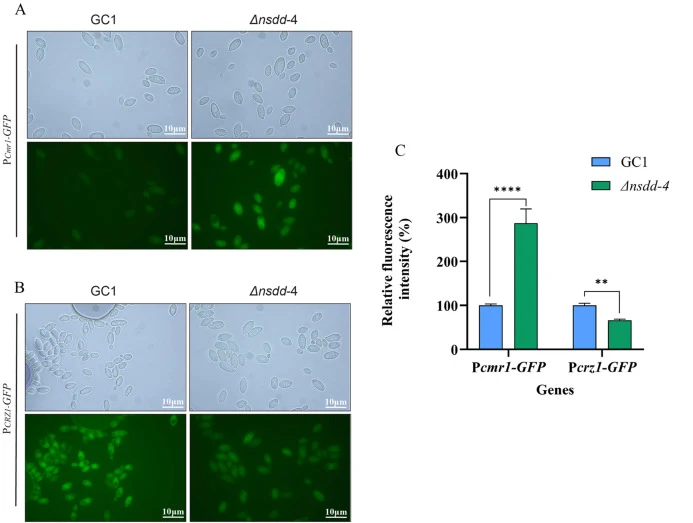
在另一项研究中(Jiang et al., 2020),已证实由CMR1基因编码的Cmr1是黑色素生物合成中的关键特异性转录激活因子。因此,我们认为NsdD是CRZ1基因表达的正调控因子,因此完全去除NSDD基因导致Δnsdd-4突变体中CRZ1基因表达降低,随后大多数负责延胡索酸生物合成的基因表达降低(图6),与亲本菌株GC1相比,Δnsdd-4突变体的延胡索酸产量下降(图3)。同时,NsdD是CMR1基因表达的负调控因子,因此完全去除NSDD基因导致Δnsdd-4突变体中CMR1基因表达增加,随后所有负责黑色素生物合成的基因表达增加(表1),与亲本菌株GC1相比,Δnsdd-4突变体的黑色素产量升高(图4和图5)。
【数据】Δnsdd-4延胡索酸产量:47.46 g/L;GC1延胡索酸产量:64.79 g/L;Δnsdd-4细胞量:8.78 g/L;GC1细胞量:9.44 g/L;培养时间:7 d;Δnsdd-4黑色素开始大量产生时间:24 h内;GC1黑色素开始少量产生时间:36 h内;Δnsdd-4厚垣孢子比例:约62%;下调基因:除OTC外大多数延胡索酸合成/调控基因;上调基因:大多数黑色素合成/调控基因
3.3 敲除突变体中NSDD基因的回补及回补菌株和亲本菌株的延胡索酸和黑色素生产及相关基因表达
为了进一步确认NSDD基因在延胡索酸和黑色素生产中的双重功能,按照材料与方法所述将从cDNA克隆的NSDD基因回补到Δnsdd-4突变体中。图7结果表明,NSDD基因的回补恢复了延胡索酸生产;所有回补菌株产生的延胡索酸量与亲本菌株GC1几乎相同,表明由NSDD基因编码的NsdD确实正调控延胡索酸生物合成。
同时,Cnsdd-5菌株(回补菌株之一)的所有菌落变得像其亲本菌株GC1一样呈白色(图5B),只有少量Cnsdd-5菌株细胞像其亲本菌株GC1一样含有黑色素(图5A),且Cnsdd-5菌株产生的黑色素量与亲本GC1菌株几乎相同(图5C)。测定NSDD基因及任何其他延胡索酸生物合成和调控相关基因的相对转录水平显示,与GC1菌株中NSDD基因及任何其他延胡索酸生物合成和调控相关基因相比,回补菌株Cnsdd-5中除OTC基因外所有基因均过表达(图6)。相反,NSDD基因表达在……
【数据】回补菌株延胡索酸产量:与GC1几乎相同;Cnsdd-5菌落颜色:白色(与GC1相同);Cnsdd-5黑色素产量:与GC1几乎相同;Cnsdd-5基因表达:除OTC外所有延胡索酸合成/调控基因过表达;原文节选在"NSDD基因表达在……"处中断,后续数据未详述
讨论与解读
本研究在产延胡索酸的阿巴短梗霉GC1菌株基因组中鉴定了一个编码GATA型锌指转录因子NsdD的NSDD基因。序列分析表明,该蛋白含有保守的QSLPSI基序和GATA型IVb锌指结构域(C-X2-C-X18-C-X2-C),系统发育分析显示其与其他出芽短梗霉属物种的NsdD亲缘关系密切。功能验证通过基因敲除和回补实验证实,NsdD正调控延胡索酸生物合成、负调控黑色素生物合成。敲除NSDD基因后,延胡索酸产量从64.79 g/L降至47.46 g/L,而黑色素在24小时内即大量积累,约62%的细胞形成厚垣孢子。回补NSDD基因后,延胡索酸产量和黑色素水平均恢复至亲本菌株水平。
机制层面,NsdD正调控Ca²⁺信号通路关键转录激活因子CRZ1基因的表达,从而促进延胡索酸合成基因的转录;同时负调控黑色素合成关键转录激活因子CMR1基因的表达,抑制黑色素合成。这一双重调控模式与既往在黑梗霉中发现的NsdD正调控普鲁兰多糖和PMA、负调控黑色素的结论一致。
编译者解读
该研究揭示了一个转录因子同时协调初级代谢(延胡索酸)与次级代谢(黑色素)的简洁调控逻辑,为合成生物学中"一因多效"的代谢线路设计提供了天然范本。从应用角度看,敲除NSDD即可将碳流从延胡索酸转向黑色素,实现代谢开关式切换,这种单基因操作策略在工业菌株改造中极具吸引力。但需注意,敲除后细胞生长也受到一定影响(细胞量从9.44降至8.78 g/L),说明NsdD可能还参与其他生长相关通路,实际工程应用中需权衡产量与生物量的关系。
参考来源
期刊:Fungal Biology, 2026
DOI:10.1016/j.funbio.2026.101793
DOI: 10.1016/j.funbio.2026.101793