来源:Genome-scale metabolic reconstruction of Botrytis cinerea for enhanced abscisic acid biosynthesis(Chinese Journal of Chemical Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
脱落酸(ABA)是五大天然植物生长调节剂之一,在农业生产中举足轻重。灰葡萄孢(Botrytis cinerea)是天然产 ABA 的菌株,但其代谢网络认知不足,产量提升困难。本研究构建了灰葡萄孢基因组尺度代谢网络模型 iDK916,涵盖 916 个基因、2318 个反应和 1770 个代谢物。模型预测与发酵实验一致表明果糖是最优碳源,并借助 FSEOF 算法锁定 BCIN_12g04570 为过表达靶点,最终将 ABA 产量提升至 1.35 g·L⁻¹,较原始菌株提高 49.8%。
研究背景
脱落酸与赤霉素、生长素、细胞分裂素和乙烯并列为五大植物激素。它在植物整个生命周期的多种生理过程中发挥关键调控作用——调控气孔关闭、促进贮藏产物积累、促进种子休眠、诱导萌发后生长停滞等。ABA 不仅存在于植物、真菌和藻类中,也存在于低等动物和高等哺乳动物中。类似其在植物中的信号调控功能,ABA 已被证明在动物中可作为通用信号分子,并可应用于人类疾病。由此可见,ABA 具有广阔的市场前景。
ABA 的生物合成存在两条途径:真菌采用的直接途径和植物采用的间接途径。目前 ABA 的主要生产方法包括化学合成、植物提取和微生物合成。随着合成生物学技术的发展与成熟,微生物合成已成为生产 ABA 的热门方法。迄今已有报道在尾孢属、葡萄孢属、长喙壳属、镰刀菌属、稻瘟菌属等菌株中生产 ABA,也有利用其他底盘细胞进行生产的尝试。
然而,灰葡萄孢作为天然 ABA 生产菌株,其代谢网络认知不足,产量难以进一步提升,限制了其在发酵工业中的应用。本研究构建了灰葡萄孢的基因组尺度代谢网络模型(GSMM,iDK916),通过模型预测与实验验证相结合,系统解析碳源对 ABA 产量的影响,并预测和验证可提升产量的基因靶点。
研究方法
2.1 模型的构建与分析
#### 2.1.1 模型构建
从 NCBI 数据库下载灰葡萄孢 B05.10 的基因组序列。分别使用自动构建工具 RAVEN、CarveMe 和 CarveFungi 获得灰葡萄孢的草案模型。经比较后,本研究主要采用 CarveFungi 构建的粗模型进行模型研究。使用 CarveFungi 软件进行模型构建时,将蛋白质注释所用的 EggNOG 替换为 CLEAN——一种通过机器学习算法模型实现酶注释的工具。在 CLEAN 算法的支持下,模型的准确性和覆盖度显著提高。
【数据】菌株:灰葡萄孢 B05.10;基因组来源:NCBI 数据库;构建工具:RAVEN、CarveMe、CarveFungi;注释工具:CLEAN(替换 EggNOG);原文未详述具体培养温度与时间
#### 2.1.2 人工精修
初始模型中缺乏淀粉和 ABA 的代谢途径。查询 KEGG、BIGG 和 Metacyc 等数据库信息后,将相应代谢物的反应途径添加到模型中。灰葡萄孢 B05.10 的细胞组成主要由蛋白质、脂质、核酸、碳水化合物和灰分构成。具体生物量来源于某些代表性真核微生物,如黑曲霉和解脂耶氏酵母。通过整合实验数据和文献数据获得灰葡萄孢的生物量方程。将模型导入 MATLAB,在 Cobra 工具箱平台上使用 [missingMets, presentMets] = biomassPrecursorCheck (model) 检查生物量前体的合成。由此构建了灰葡萄孢的 GSMM。
【数据】数据库:KEGG、BIGG、Metacyc;生物量参考菌株:黑曲霉、解脂耶氏酵母;分析平台:MATLAB + Cobra 工具箱;函数:biomassPrecursorCheck;原文未详述具体温度与时间
#### 2.1.3 模型验证
为进一步验证模型的准确性,实施 Cobra 工具箱中的通量平衡分析(FBA)算法评估灰葡萄孢的代谢能力。以生物量方程为最大化目标方程,根据实验结果将碳源摄取速率设为 4 mmol·gDW⁻¹·h⁻¹,预测灰葡萄孢在不同碳源条件下的生长。使用相同方法预测灰葡萄孢在不同氮源条件下的生长。将上述结果与文献报道的实验结果进行比较。使用 MEMOTE 工具对模型进行全面可视化的质量评估。首先提供 SBML 格式文件;MEMOTE 随后自动执行一系列标准测试,并根据最终测试结果生成 HTML 格式的详细报告。
【数据】碳源摄取速率:4 mmol·gDW⁻¹·h⁻¹;目标方程:生物量方程最大化;评估工具:MEMOTE;输出格式:HTML 报告;原文未详述具体温度与时间
#### 2.1.4 必需基因预测
使用 Cobra 工具箱中的 “singleGeneDeletion” 函数预测灰葡萄孢的必需基因。当基因缺失导致生长速率降至野生型水平的 5% 以下时,该基因被定义为必需基因。
【数据】判定阈值:生长速率 < 野生型的 5%;函数:singleGeneDeletion;原文未详述具体温度与时间
#### 2.1.5 发酵条件的预测与优化
使用 Cobra 工具箱中的 Dynamic FBA 模拟灰葡萄孢模型的发酵过程。以葡萄糖为碳源,基线浓度设为 10 mmol·gDW⁻¹·h⁻¹,氧气交换反应下界设为 10 mmol·gDW⁻¹·h⁻¹。
【数据】碳源:葡萄糖;基线浓度:10 mmol·gDW⁻¹·h⁻¹;氧气交换反应下界:10 mmol·gDW⁻¹·h⁻¹;算法:Dynamic FBA;原文未详述具体温度与时间
#### 2.1.6 ABA 产量提升靶点的预测
FSEOF 是一种识别基因扩增靶点的算法。从 FSEOF GitLab 仓库下载 zip 文件,解压下载的 zip 文件。使用 Python 运行 “pip install -r requirements.txt” 进行加载。然后输入 ‘python run_FSEOF.py bfu_update.xml BIOMASS EX_ABA’。生成的结果以 Excel 文件形式存储在 ‘python run_FSEOF.py’ 运行目录中。
【数据】算法:FSEOF;运行命令:python run_FSEOF.py bfu_update.xml BIOMASS EX_ABA;输出格式:Excel 文件;原文未详述具体温度与时间
2.2 菌株与培养基
本研究使用的菌株为灰葡萄孢 NNU-1。种子培养基组成如下:6% 麸皮、0.2% 乳糖、0.1% 甘油、0.6% 葡萄糖。发酵培养基组成:2.6% 葡萄糖、0.4% 豆粕、0.3% 羧甲基纤维素钠、0.05% 硫酸锰、0.05% 磷酸二氢钾。豆粕(BR)和羧甲基纤维素钠(AR)购自江西新瑞丰有限公司。蛋白胨(BR)和酵母提取物(BR)购自英国 OXOID 公司。葡萄糖和 NaCl(AR)购自上海展云化工有限公司(中国上海)。
【数据】菌株:灰葡萄孢 NNU-1;种子培养基:6% 麸皮、0.2% 乳糖、0.1% 甘油、0.6% 葡萄糖;发酵培养基:2.6% 葡萄糖、0.4% 豆粕、0.3% 羧甲基纤维素钠、0.05% 硫酸锰、0.05% 磷酸二氢钾;试剂来源:江西新瑞丰、OXOID、上海展云;原文未详述具体温度与时间
2.3 不同碳源对 ABA 产量的影响
根据文献研究和模拟结果,针对灰葡萄孢的发酵过程,我们选择葡萄糖、果糖、甘露糖、半乳糖和山梨醇作为碳源,参照碳含量以等量方式替换原培养基中的葡萄糖。随后进行发酵实验,验证各种碳源对 ABA 产量的影响。
【数据】碳源:葡萄糖、果糖、甘露糖、半乳糖、山梨醇;替换方式:参照碳含量等量替换;原文未详述具体温度与时间
2.4 产物测定方法
使用高效液相色谱(LC-20AT)系统分析 ABA 水平。发酵液经 12000 r·min⁻¹ 离心 10 min 收集上清液。在维持 30 °C 的 C18 色谱柱上进行分离。流动相为 0.1% 甲酸与 100% 甲醇的混合物,流速 0.3 ml·min⁻¹。
【数据】仪器:HPLC LC-20AT;离心:12000 r·min⁻¹、10 min;色谱柱:C18、30 °C;流动相:0.1% 甲酸 + 100% 甲醇;流速:0.3 ml·min⁻¹
2.5 菌株培养条件
本研究使用灰葡萄孢菌株 NNU-1。初始菌株首先在马铃薯葡萄糖琼脂(PDA)上划线培养 8–10 天。然后将真菌菌丝体转移至种子培养基中,在 26 °C、180 r·min⁻¹ 条件下振荡培养 48 h。随后以 4%(v/v)接种量接种至发酵培养基中,在相同条件下培养 8 天。种子培养基含以下组分:葡萄糖 30 g·L⁻¹、麸皮 70 g·L⁻¹、MgSO₄·7H₂O 0.5 g·L⁻¹、KH₂PO₄ 0.5 g·L⁻¹。发酵培养基含:葡萄糖 80 g·L⁻¹、酵母提取物 10 g·L⁻¹、MgSO₄·7H₂O 1 g·L⁻¹、KH₂PO₄ 1 g·L⁻¹。此外,使用酵母提取物蛋白胨葡萄糖(YPD)培养基,组成为酵母提取物 10 g·L⁻¹、蛋白胨 20 g·L⁻¹、葡萄糖 20 g·L⁻¹。
【数据】菌株:灰葡萄孢 NNU-1;PDA 培养:8–10 天;种子培养:26 °C、180 r·min⁻¹、48 h;接种量:4%(v/v);发酵培养:8 天;种子培养基:葡萄糖 30 g·L⁻¹、麸皮 70 g·L⁻¹、MgSO₄·7H₂O 0.5 g·L⁻¹、KH₂PO₄ 0.5 g·L⁻¹;发酵培养基:葡萄糖 80 g·L⁻¹、酵母提取物 10 g·L⁻¹、MgSO₄·7H₂O 1 g·L⁻¹、KH₂PO₄ 1 g·L⁻¹;YPD:酵母提取物 10 g·L⁻¹、蛋白胨 20 g·L⁻¹、葡萄糖 20 g·L⁻¹
2.6 质粒构建
本研究以灰葡萄孢 NNU-1 为亲本菌株,以大肠杆菌 DH5α 作为质粒扩增宿主,设置空载体对照组以消除质粒整合对细胞代谢的潜在影响,确认靶基因过表达带来的产量提升是可靠的。BCIN_12g04570 的过表达质粒通过从灰葡萄孢基因组 DNA 中扩增 pthi4 启动子、BCIN_12g04570 编码序列及其天然终止子构建。然后将这些片段克隆到 pUC57-HPH-ΔBcniiA 载体中,该载体携带亚硝酸还原酶(niiA)基因的上下游同源臂用于靶向整合,以及潮霉素磷酸转移酶(HPH)盒用于筛选。克隆使用 ClonExpress MultiS One-Step Cloning Kit(诺唯赞,南京,中国)进行,从而构建过表达 BCIN_12g04570(磷酸甲羟戊酸激酶,EC:2.7.4.2)的菌株。
【数据】亲本菌株:灰葡萄孢 NNU-1;质粒扩增宿主:大肠杆菌 DH5α;启动子:pthi4;靶基因:BCIN_12g04570(磷酸甲羟戊酸激酶,EC:2.7.4.2);载体:pUC57-HPH-ΔBcniiA;筛选标记:HPH;克隆试剂盒:ClonExpress MultiS One-Step Cloning Kit(诺唯赞);原文未详述具体温度与时间
2.7 灰葡萄孢的原生质体转化
在含有 1% 崩解酶、1% 溶壁酶和 0.7 mol·L⁻¹ NaCl 的酶解液中制备原生质体。离心后,将原生质体沉淀重悬于 STC 缓冲液中。随后,将 200 μL 含 10 μg 质粒的原生质体制备液与 PEG 6000 混合以获得转化子。将这些转化子涂布在添加蔗糖的 PDA 平板上进行阳性克隆筛选。
【数据】酶解液:1% 崩解酶、1% 溶壁酶、0.7 mol·L⁻¹ NaCl;质粒用量:10 μg;原生质体体积:200 μL;PEG:PEG 6000;筛选平板:添加蔗糖的 PDA;原文未详述具体温度与时间
研究结果
3.1 模型的构建与验证
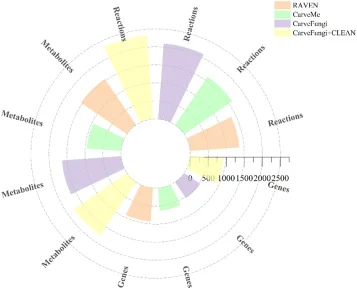
本研究使用三种不同的模型构建工具来构建模型,即 RAVEN、CarveMe 和 CarveFungi。首先,从 Uniprot 网站下载灰葡萄孢(菌株 B05.10)的全基因组蛋白质序列,然后分别使用三种不同工具构建粗模型。RAVEN 生成的模型包含 1367 个反应、1542 个代谢物和 930 个基因。CarveMe 生成的草案模型包含 1613 个反应、952 个代谢物和 624 个基因。CarveFungi 生成的模型包含 2097 个反应、1642 个代谢物和 533 个基因。经比较后,本研究以 CarveFungi 方法构建的粗模型作为后续研究的基础。为增强模型中的反应和基因数量,利用 CLEAN 工具预测酶功能。在 CarveFungi 的基础上,本实验还使用 CLEAN 工具箱优化酶功能注释。最终粗模型中的反应数从 2097 增至 2318,代谢物数从 1642 增至 1770,基因数从 533 增至 916(图1,附加文件1)。
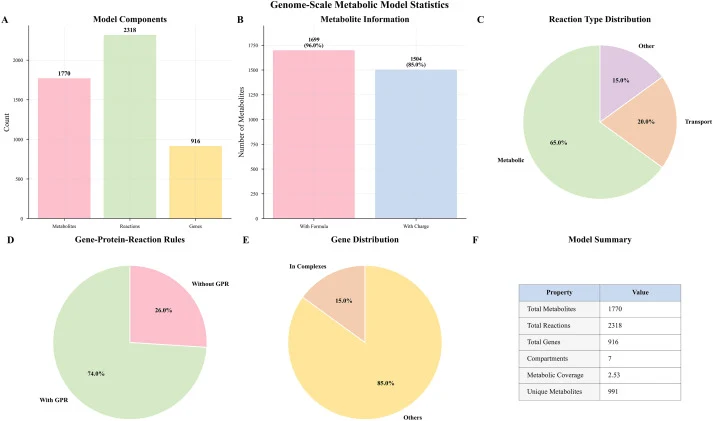
为确保模型的准确性,从三个角度进行了验证。首先,MEMOTE 评估确认重建的 GSMM 总体质量得分为 67%,达到中等偏上水平,验证了其基本可靠性和可用性。对模型质量进行了可视化统计分析(图2)。图2A 展示了核心模型组件(代谢物、反应、基因)的数量。图2B 展示了较高的注释完整度,96.0% 的代谢物注释了化学式,85.0% 注释了电荷信息。图2C 显示 65.0% 的反应为核心代谢反应,图2D 表明 74.0% 的反应具有基因-蛋白质-反应(GPR)关联,验证了模型用于遗传水平代谢调控分析的适用性。关键全局参数汇总于图2F。
随后,通过查阅灰葡萄孢在不同碳源和氮源下生长的相关文献,我们模拟了模型在 35 种碳源和 25 种氮源上的生长性能,模型中正生长阈值定义为生长速率 >0,并将模拟结果与文献数据进行比较。结果显示,32 种碳源和 22 种氮源可支持生长,模拟准确率分别为 91% 和 88%(表1)。
【数据】RAVEN 模型:1367 反应、1542 代谢物、930 基因;CarveMe 模型:1613 反应、952 代谢物、624 基因;CarveFungi 模型:2097 反应、1642 代谢物、533 基因;优化后模型:2318 反应、1770 代谢物、916 基因;MEMOTE 质量得分:67%;代谢物化学式注释率:96.0%;电荷注释率:85.0%;核心代谢反应比例:65.0%;GPR 关联比例:74.0%;碳源模拟准确率:91%(32/35);氮源模拟准确率:88%(22/25);正生长阈值:生长速率 >0
3.2 模型的特征分析
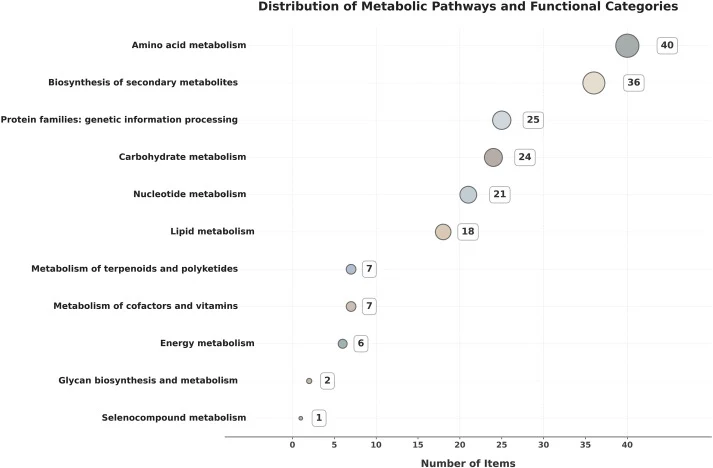
为分析模型特征,将其与其他真菌模型进行比较。该模型分别比其他模型多 554、472 和 867 个反应,分别多含 533、714 和 632 个代谢物。然而,该模型的基因覆盖度仍有待提高。此外,该模型还覆盖了 65 个内质网代谢反应和 86 个内质网代谢物,这些在其他模型中未体现(表2)。在最小培养基条件下,使用该模型分析灰葡萄孢的必需基因。结果显示,在最小培养基条件下共有 153 个必需基因。其中,31% 的必需基因与氨基酸代谢相关,14% 的必需基因与核苷酸代谢相关(图3)。
为验证必需基因的准确性,将模拟得到的必需基因与 DEG 数据库中所有必需基因进行比较(identity ≥40%,e-value ≤1 × 10⁻³⁰)。分析发现 79 个匹配基因,准确率为 71%(附加文件2)。
【数据】反应数优势:分别多 554、472、867 个;代谢物优势:分别多 533、714、632 个;内质网反应:65 个;内质网代谢物:86 个;必需基因总数:153 个;氨基酸代谢相关:31%;核苷酸代谢相关:14%;DEG 数据库匹配基因:79 个;准确率:71%;匹配标准:identity ≥40%,e-value ≤1 × 10⁻³⁰
3.3 不同底物浓度下 ABA 生产的动态 FBA 模拟
应用动态 FBA 算法模拟底物浓度的时间变化及相应的 ABA 产量变化。分别以葡萄糖和 NH₄⁺ 作为碳源和氮源,其摄取速率设为 5 mmol·gDW⁻¹·h⁻¹、10 mmol·gDW⁻¹·h⁻¹ 和 15 mmol·gDW⁻¹·h⁻¹。根据动态 FBA 的模拟结果,随着底物浓度的增加,ABA 产量增加了 66.33%(图4A–C)。
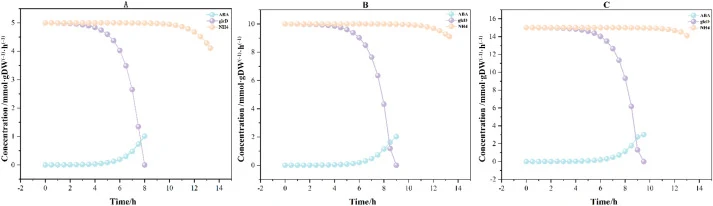
此外,从这一动态变化过程可以观察到,葡萄糖浓度在 6 至 10 h 后急剧降至 0,表明碳源被完全耗尽,真菌进入“碳饥饿”状态,这与 ABA 合成的起始时间点高度吻合。这一现象启发我们在葡萄糖开始下降时补充碳源,以延长 ABA 合成期。NH₄⁺ 浓度在初始阶段保持稳定(图4A–C),随后缓慢下降。过高的氮源浓度可能抑制真菌的次级代谢。这揭示了在生产过程中,我们需要通过梯度补碳和阶段性限氮来实现碳氮代谢与产物合成的时空匹配。
【数据】碳源摄取速率:5、10、15 mmol·gDW⁻¹·h⁻¹;氮源摄取速率:5、10、15 mmol·gDW⁻¹·h⁻¹;ABA 产量增幅:66.33%;葡萄糖耗尽时间:6–10 h;碳饥饿状态与 ABA 合成起始时间点高度吻合;NH₄⁺ 初始阶段稳定后缓慢下降
3.4 优化培养条件提高 ABA 产量
从前一节的动态 FBA 模拟可知,碳源在 ABA 合成过程中起着非常重要的作用。因此,基于该模型,我们使用 FBA 算法计算了五种不同碳源条件下 ABA 的合成速率。FBA 模拟结果显示,以果糖为碳源时,ABA 合成速率为 0.95 mmol·gDW⁻¹·h⁻¹,比以葡萄糖为碳源时高 7.95%(图5A)。
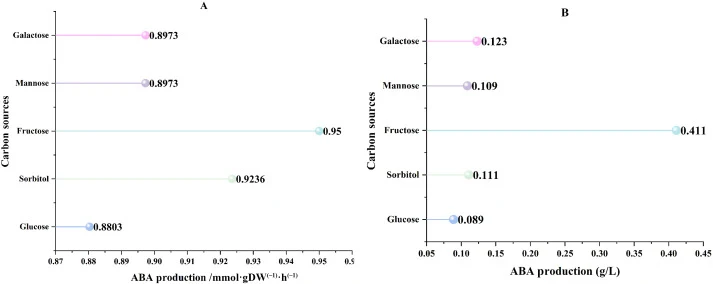
进一步分析表明,果糖可直接进入糖酵解途径,快速产生高浓度中间产物和乙酰辅酶A。真菌中 ABA 的产生与乙酰辅酶A直接相关。乙酰辅酶A进入甲羟戊酸途径生成法尼基焦磷酸,进一步用于 ABA 的合成。基于模拟结果,开展实验验证这五种碳源对 ABA 合成的影响。实验结果表明,以果糖为碳源时,ABA 产量达到 0.41 g·L⁻¹,超过其他碳源的产量(图5B)。本研究通过比较变化趋势的一致性验证了模型预测的合理性:模拟显示果糖条件下产物合成通量最高,实验验证也证实以果糖为碳源时最终产物滴度最高。关于最优碳源筛选的一致结论证明了模型预测的可靠性。
【数据】果糖为碳源时 ABA 合成速率:0.95 mmol·gDW⁻¹·h⁻¹;比葡萄糖高:7.95%;果糖为碳源时 ABA 产量:0.41 g·L⁻¹;碳源种类:葡萄糖、果糖、甘露糖、半乳糖、山梨醇
3.5 确定提高 ABA 产量的靶点
为提高 ABA 产量,采用 FSEOF 算法预测潜在基因靶点,主要分为上调和下调类型(附加文件3)。对于上调靶点,共鉴定出 75 个上调反应,涉及 64 个基因。这些基因大多与氨基酸代谢和碳水化合物代谢相关。中心代谢物乙酰辅酶A是灰葡萄孢中合成 ABA 的重要前体。丙酮酸是葡萄糖合成乙酰辅酶A过程中的重要节点。在鉴定的上调基因中,有多个与糖酵解途径相关的基因。以乙酰辅酶A为前体物质,通过甲羟戊酸途径生物合成法尼基焦磷酸,与该途径相关的基因与鉴定的上调靶点密切重叠。实验证明,通过使用强启动子过表达 HMGR 和 Bcaba4 基因,ABA 的产量……
【数据】上调反应:75 个;涉及基因:64 个;主要代谢类别:氨基酸代谢、碳水化合物代谢;关键前体:乙酰辅酶A;关键节点:丙酮酸;已验证过表达基因:HMGR、Bcaba4
3.6 BCIN_12g04570 过表达验证
在 FSEOF 预测的上调靶点中,选取 BCIN_12g04570(磷酸甲羟戊酸激酶,EC:2.7.4.2)进行靶向过表达。在灰葡萄孢代谢工程模型指导下,将 BCIN_12g04570 在灰葡萄孢中过表达(图6)。
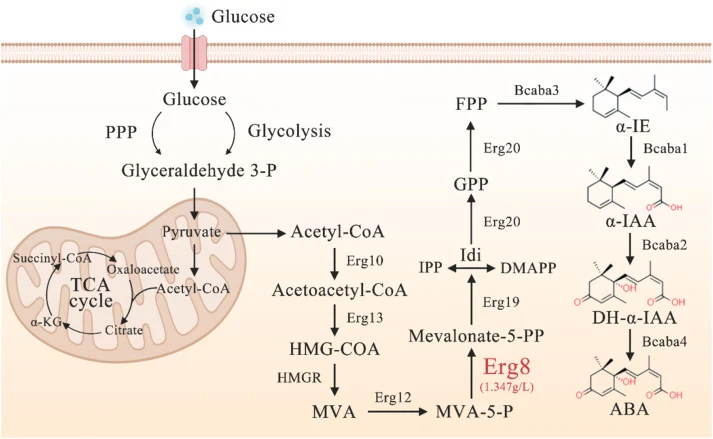
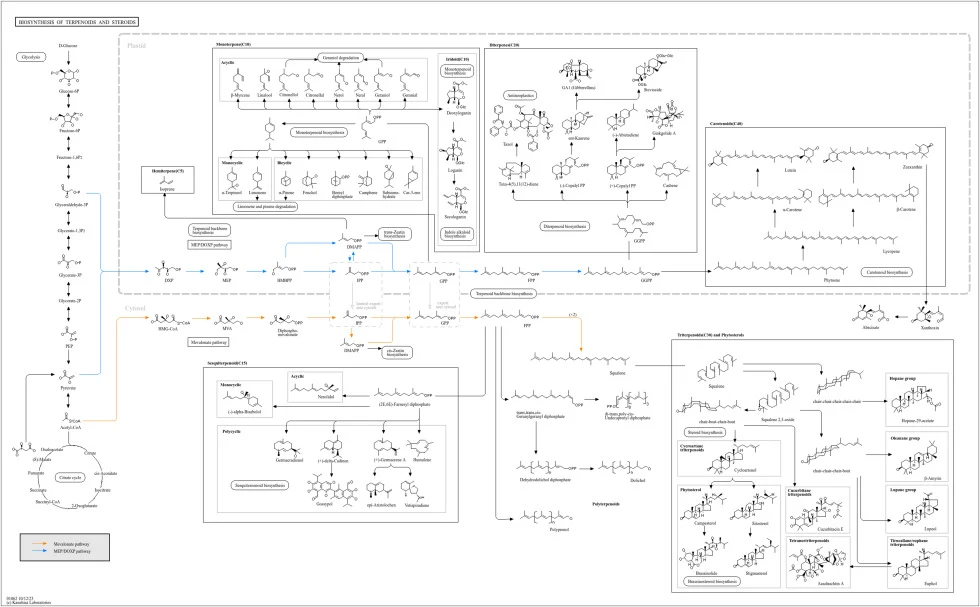
最终将 ABA 产量提高至 1.35 g·L⁻¹,较原始菌株提高 49.8%。图7 展示了灰葡萄孢中 ABA 生物合成的 KEGG 途径,其中与 BCIN_12g04570 相关的关键组分已高亮标注。
【数据】过表达基因:BCIN_12g04570(磷酸甲羟戊酸激酶,EC:2.7.4.2);ABA 产量:1.35 g·L⁻¹;较原始菌株提高:49.8%
讨论与解读
本研究构建了灰葡萄孢的基因组尺度代谢网络模型 iDK916,包含 916 个基因、2318 个反应和 1770 个代谢物。通过模型预测和发酵实验,揭示了碳源对 ABA 生产的重要性。发现以果糖为唯一碳源时,模拟结果和实验结果均为最高,分别达到 0.95 mmol·gDW⁻¹·h⁻¹ 和 0.41 g·L⁻¹。分析认为,果糖可直接进入糖酵解下游阶段,有效缓解真菌中常见的碳分解代谢物阻遏(CCR)效应,减少过量碳通量向 TCA 循环和细胞生长的分配,将更多前体通量导入甲羟戊酸途径和脱落酸生物合成。这一模式与文献中报道的多种真菌利用果糖高效合成萜类等次级代谢产物的普遍现象一致。此外,通过 FSEOF 算法获得了甲羟戊酸途径相关的全部基因。该途径对 ABA 生产非常重要,选取 BCIN_12g04570 基因进行过表达,最终使 ABA 产量提高 49.8%。实验证实,过表达该基因将 ABA 产量提高至 1.35 g·L⁻¹,较原始菌株提高 49.8%。这不仅有效验证了模型的可靠性……
编译者解读:该研究展示了 GSMM 指导代谢工程改造的经典范式——先以多工具比较选定建模路线,再通过 MEMOTE 评估和碳氮源生长谱验证模型可信度,随后用动态 FBA 和 FSEOF 锁定碳源策略与基因靶点,最终以过表达实验闭环验证。果糖缓解 CCR 效应、甲羟戊酸途径通量强化的思路对萜类合成生物学具有参考价值。局限在于模型基因覆盖度仍有提升空间,且仅验证了单个靶点,FSEOF 预测的其余 63 个基因尚待挖掘。
参考来源
期刊:Chinese Journal of Chemical Engineering, 2026
DOI: 10.1016/j.cjche.2026.05.012
DOI: 10.1016/j.cjche.2026.05.012