来源:Effects of the ecpA gene on the biological characteristics and pathogenicity of avian pathogenic Escherichia coli strain FJLY68(Veterinary Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
禽致病性大肠杆菌(APEC)是禽大肠杆菌病的主要病原,但大肠杆菌共同菌毛(ECP)主要结构亚基基因 ecpA 在 APEC 致病中的作用长期未被厘清。本研究以 APEC 福建龙岩分离株 FJLY68 为背景,用 CRISPR/Cas9 构建 ΔecpA 缺失株与回补株 CΔecpA,系统比较其生长、运动、生物膜、黏附、菌毛组装、转录组及雏鸡感染表型。结果显示,ecpA 缺失不影响体外生长,却显著削弱运动、生物膜形成、对 DF-1 细胞的黏附及菌毛组装,并引起 1720 个差异表达基因;雏鸡模型中 LD50 升高约 4.3 倍,病变与组织载菌量同步下降,回补后全部恢复。
研究背景
APEC 引发禽大肠杆菌病,临床表现为呼吸道感染、败血症和多器官病变,给全球养禽业造成重大经济损失。尽管生物安全措施严格,共感染频发与抗菌药耐药上升仍使防控困难,抗生素效力持续下降。因此,靶向细菌致病性、不施加耐药选择压力的替代策略受到关注。阐明毒力因子既是理解致病机制的前提,也是开发减毒疫苗的基础——APEC 致病性由黏附素、毒素和铁摄取系统等众多毒力决定簇共同介导。菌毛黏附素负责初始定植,是理想的减毒靶点:失活后可降低致病性而不影响细菌基本存活力。大肠杆菌共同菌毛(ECP)已被鉴定为肠道与肠外致病性大肠杆菌的重要黏附素,但其主要结构亚基基因 ecpA 在 APEC 中的确切作用仍不明确。本研究即围绕 ecpA 对 APEC 体外生物学特性与体内毒力的贡献展开系统解析。
研究方法
2.1 菌株、质粒与培养条件
野生型 APEC 菌株 FJLY68 分离自中国福建省龙岩市某养禽场。本研究所用的同源 ΔecpA 缺失株与 CΔecpA 回补株均在本研究中构建。抗生素用量:卡那霉素 50 µg/mL、壮观霉素 50 µg/mL、氯霉素 30 µg/mL。除另有说明外,细菌分离株一律在 28 °C 的 Luria-Bertani(LB)培养基或 LB 琼脂平板上培养。DF-1 细胞在含 10% 胎牛血清(FBS;Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆)的 Dulbecco 改良 Eagle 培养基(DMEM;Solarbio,中国北京)中,于 37 °C、5% CO₂ 条件下培养。生长曲线分析及 ecpA 相关表型(运动、生物膜形成、细胞黏附)实验均在添加 0.5% 甘露糖的低糖 DMEM 中、28 °C 静置条件下进行,此条件沿用既往 APEC 中 ECP 实验的设定(Stacy 等,2014)。28 °C 可诱导 ECP 表达。补充甘露糖可最大限度降低 1 型菌毛的贡献,而低糖 DMEM 提供相对营养受限的环境,有利于宿主相关表型的表达并维持足够的细菌生长以供比较分析,同时避免过度严苛的条件诱发非特异性应激反应。
【数据】菌株:APEC FJLY68(野生型)、ΔecpA、CΔecpA;抗生素:卡那霉素 50 µg/mL、壮观霉素 50 µg/mL、氯霉素 30 µg/mL;培养基:LB、LB 琼脂、低糖 DMEM;温度:细菌 28 °C、DF-1 细胞 37 °C;CO₂:5%;FBS:10%;甘露糖:0.5%
2.2 ΔecpA 缺失株与回补株的构建
ΔecpA 缺失株与 CΔecpA 回补株采用改编自既往方案的 CRISPR/Cas9 系统构建(Jiang 等,2015)。为构建编辑质粒 pTargetF-ecpA,使用引物对 pTecpA1-F/R、pTecpA2-F/R 和 pTecpA3-F/R 扩增一段 20 bp 间隔序列(5′-GTGATGATCGATACCGCCAA-3′)以及 ecpA 基因两侧约 500 bp 的同源臂。这些片段经 PCR 融合后,通过无缝克隆插入经 Spe I 和 Sal I 消化的 pTargetF 载体。将温度敏感质粒 pCas 通过电穿孔导入野生型 APEC FJLY68 菌株,转化子在含卡那霉素的 LB 琼脂上、30 °C 筛选。所得菌株在 30 mmol/L L-阿拉伯糖存在下培养以诱导 λ-Red 重组酶表达,随后制备感受态并转化 pTargetF-ecpA。转化子在含卡那霉素和壮观霉素(50 µg/mL)的 LB 琼脂上、30 °C 筛选。用验证引物 ecpA-F 和 ecpA-R 通过 PCR 鉴定突变体,并进一步用 Sanger 测序确认。为消除编辑质粒,通过 1 mM IPTG 诱导消除 pTargetF-ecpA,随后在 42 °C 连续传代去除 pCas。为确认所观察表型确由 ecpA 缺失所致,构建回补株 CΔecpA。使用引物 pUC57ecpA-F 和 pUC57ecpA-R 从 FJLY68 基因组扩增全长 ecpA 基因。所得片段用无缝克隆试剂盒克隆至 pUC57-kan 载体的 Hind III 和 Eco RI 位点。重组质粒命名为 pUC57-kan-ecpA,经测序验证后通过电穿孔导入 ΔecpA 缺失株。转化子在卡那霉素抗性 LB 平板上筛选,获得回补株 CΔecpA。本研究中用于质粒构建、突变体验证和回补的所有引物列于表 1。
【数据】间隔序列:20 bp(5′-GTGATGATCGATACCGCCAA-3′);同源臂:约 500 bp;L-阿拉伯糖:30 mmol/L;卡那霉素:50 µg/mL;壮观霉素:50 µg/mL;IPTG:1 mM;pCas 消除温度:42 °C;筛选温度:30 °C;电穿孔:pCas、pTargetF-ecpA、pUC57-kan-ecpA
2.3 生长曲线测定
将野生型菌株 FJLY68、ΔecpA 缺失株和 CΔecpA 回补株的单菌落接种于 LB 肉汤,28 °C 静置培养至 OD600 约 1.0。随后将培养物按 1:100 稀释至新鲜添加 0.5% 甘露糖的低糖 DMEM 中,28 °C 静置培养。每 2 h 测定一次 600 nm 光密度(OD600),持续 24 h,绘制生长曲线。每次实验设三个重复。
【数据】接种:单菌落;初始 OD600:约 1.0;稀释比例:1:100;培养基:低糖 DMEM + 0.5% 甘露糖;温度:28 °C;检测间隔:每 2 h;时长:24 h;重复:3 次
2.4 运动性测定
采用半固体琼脂平板法评估细菌运动性。将野生型、ΔecpA 和 CΔecpA 菌株的单菌落接种于 LB 肉汤,28 °C 培养至 OD600 约 1.0。取 2 µL 各菌悬液点至 0.25% 琼脂 LB 平板中心。28 °C 孵育 12 h 后,测量细菌迁移直径。
【数据】接种量:2 µL;琼脂浓度:0.25%;温度:28 °C;时间:12 h;初始 OD600:约 1.0
2.5 生物膜形成测定
生物膜形成按(Stacy 等,2014)方法定量。将野生型、ΔecpA 和 CΔecpA 菌株的单菌落于 LB 肉汤中 28 °C 过夜培养。培养物按 1:100 稀释至新鲜含 0.5% 甘露糖的低糖 DMEM,分装至 96 孔板(每孔 200 µL)。每组设三个重复。平板于 28 °C 孵育 48 h。孵育后移除培养基,孔用 PBS 轻柔洗涤三次并风干。随后每孔加入 200 µL 0.1% 结晶紫溶液,孵育 30 min。孔用 PBS 洗涤三次,之后加入 200 µL 95% 乙醇溶解结晶紫,孵育 15 min。用酶标仪测定 OD570 定量生物膜生物量。
【数据】稀释比例:1:100;每孔体积:200 µL;甘露糖:0.5%;温度:28 °C;时间:48 h;结晶紫:0.1%、30 min;乙醇:95%、15 min;检测:OD570;重复:3 次
2.6 DF-1 细胞黏附测定
细胞黏附实验按(Guo 等,2023)方法进行。DF-1 细胞接种于 24 孔板,于 37 °C、5% CO₂ 培养至 80% 汇合。将野生型、ΔecpA 和 CΔecpA 菌株的单菌落于 LB 肉汤中 28 °C 过夜培养。细菌培养物按 1:100 稀释至新鲜添加 2% 胎牛血清的低糖 DMEM,使感染复数(MOI)达到 100。细胞单层用菌悬液感染,轻柔混匀,于 37 °C、5% CO₂ 孵育 6 h。孵育后,用 PBS 洗涤细胞以去除未黏附细菌。随后每孔加入 200 µL 0.5% Triton X-100 裂解细胞,通过平板计数法计数黏附细菌。
【数据】细胞汇合度:80%;MOI:100;FBS:2%;温度:37 °C;CO₂:5%;感染时间:6 h;裂解液:0.5% Triton X-100、200 µL;细菌培养温度:28 °C
2.7 透射电子显微镜(TEM)
细菌表面结构按(Saldana 等,2009)方法用透射电子显微镜(TEM)检查。将菌悬液置于铜网上,制备用于 TEM 观察。样品随后用 1% 磷钨酸(pH 7.4)负染 1 min。每株菌检查 20 个随机视野,每次实验独立重复三次。
【数据】负染液:1% 磷钨酸;pH:7.4;染色时间:1 min;每株视野:20 个;独立重复:3 次
2.8 RNA 测序与转录组分析
将野生型菌株、ΔecpA 缺失株和 CΔecpA 回补株的过夜培养物接种至新鲜 LB 肉汤,28 °C 振荡培养至对数期。离心收集细菌细胞。用 TRIzol 试剂提取总 RNA,每株设三个独立生物学重复。每个重复均取自单独培养的细菌样品。用 Agilent 2100 Bioanalyzer 评估 RNA 完整性,合格样品用于文库构建。文库在 Illumina NovaSeq 6000 平台测序,产生 150 bp 双端读长。质控后,用 DESeq2 进行差异基因表达分析。差异表达基因(DEGs)以 |log₂ 倍数变化| ≥ 1 且 P < 0.05 为阈值鉴定。对 DEGs 进行基因本体(GO)富集分析和京都基因与基因组百科全书(KEGG)富集分析。
【数据】培养温度:28 °C;生物学重复:3 个;测序平台:Illumina NovaSeq 6000;读长:150 bp 双端;DEG 阈值:|log₂ fold change| ≥ 1、P < 0.05;提取试剂:TRIzol;质控仪器:Agilent 2100 Bioanalyzer
2.9 动物感染实验
所有动物实验严格遵循机构实验动物护理与使用指南,并经龙岩学院动物伦理委员会批准(批准号:LY2024031X)。
【数据】批准号:LY2024031X;批准机构:龙岩学院动物伦理委员会
2.10 半数致死量(LD50)测定
将各菌株单菌落接种于 LB 肉汤,28 °C 静置培养至对数生长期。收集细菌培养物,用无菌……(原文此处截断)
【数据】培养温度:28 °C;原文未详述后续洗涤与接种细节
研究结果
3.1 ΔecpA 缺失株与回补株 CΔecpA 的成功构建与验证
为研究 ecpA 在 APEC 中的功能,利用 CRISPR/Cas9 系统在 APEC FJLY68 背景中成功构建了同源 ΔecpA 缺失株及其相应回补株 CΔecpA。用引物 ecpA-F 和 ecpA-R 进行 PCR 验证,显示 ΔecpA 缺失株的 DNA 片段较野生型更短,与 ecpA 基因预期缺失一致(图 1A)。对 PCR 扩增产物进行 Sanger 测序,进一步确认 ecpA 编码区发生精确的框内缺失,且侧翼序列与野生型菌株完全相同(图 1B)。回补方面,使用 pUC57-kan-ecpA 质粒重新导入 ecpA 基因。用 M13F/M13R 引物进行 PCR,在 CΔecpA 菌株中产生预期大小的条带(1543 bp)(图 1C),测序验证回补的 ecpA 序列与亲本菌株一致(图 1D)。这些结果确认 ΔecpA 缺失株与回补株构建成功。
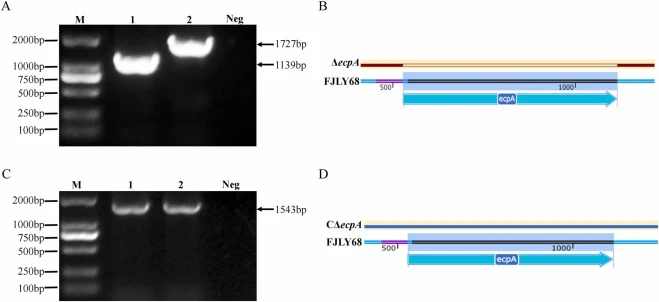
【数据】PCR 条带:ΔecpA 短于野生型;回补条带:1543 bp;验证引物:ecpA-F/ecpA-R、M13F/M13R;测序:Sanger;质粒:pUC57-kan-ecpA
3.2 ecpA 缺失损害 APEC 的多种体外生物学特性
为系统评估 ecpA 对 APEC 生物学特性的贡献,对野生型菌株 FJLY68、ΔecpA 缺失株和 CΔecpA 回补株进行了比较分析。首先,低糖 DMEM 中的生长曲线分析显示,三株菌在 24 h 内生长模式几乎相同,表明在该条件下 ecpA 缺失不损害总体生长适合度(图 2A)。由于运动性与细菌感染性密切相关,进行运动性实验以评估 ecpA 缺失是否影响 APEC 的迁移能力。运动性实验显示,ΔecpA 缺失株的迁移直径小于野生型菌株,该缺陷在 CΔecpA 菌株中得以恢复(图 2B)。定量分析进一步证实,ΔecpA 缺失株的迁移直径较野生型菌株显著减小,而回补株与野生型之间无显著差异(P < 0.05)(图 2C),表明 ecpA 是 APEC 完整运动性所必需的。鉴于生物膜形成在环境适应中的关键作用,采用结晶紫染色法测定 ecpA 是否参与 APEC 生物膜形成。结晶紫染色显示,ΔecpA 缺失株的 OD570 值显著低于野生型菌株(P < 0.05),该表型在回补后恢复至接近野生型水平(图 2D)。这些发现表明 ecpA 对 APEC 生物膜形成必不可少。由于 ecpA 是大肠杆菌共同菌毛的主要结构亚基,进一步评估其在黏附中的作用。使用 DF-1 细胞的黏附实验显示,ΔecpA 缺失株的黏附能力较野生型菌株显著受损(P < 0.01)。该降低在 CΔecpA 回补株中得到挽救(图 2E),证实 ecpA 在 APEC 黏附宿主细胞中起关键作用。
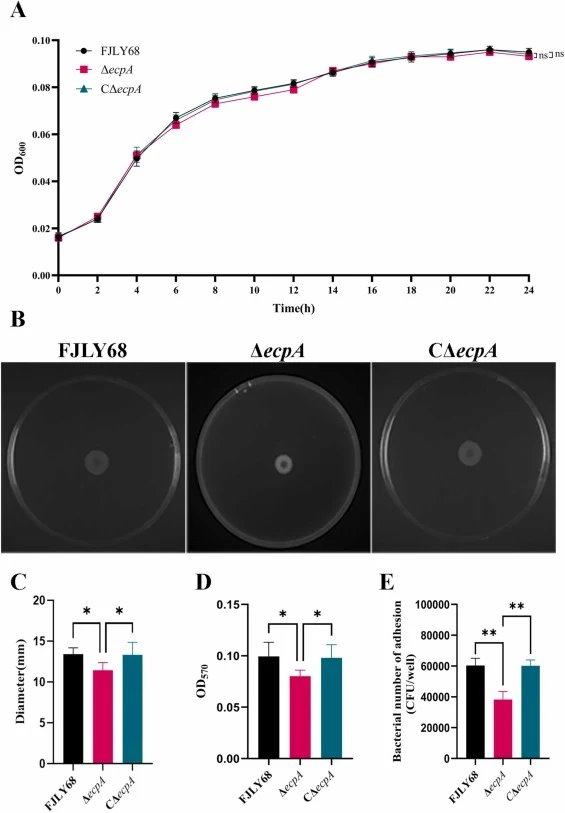
【数据】生长:24 h 内三株无差异;运动迁移直径:ΔecpA 显著小于野生型(P < 0.05);生物膜 OD570:ΔecpA 显著低于野生型(P < 0.05);黏附:ΔecpA 较野生型显著降低(P < 0.01);回补:均恢复
3.3 ecpA 是 APEC 菌毛组装所必需的
ΔecpA 缺失株中观察到的黏附与生物膜形成缺陷提示可能存在菌毛组装缺陷。由于 ecpA 编码 ECP 的主要结构蛋白,其缺失预期会阻碍菌毛形成,从而影响多种毒力相关性状。为验证该假设,采用透射电子显微镜(TEM)检查三株菌的细菌表面超微结构。TEM 显微图显示,野生型和回补株上均有典型的束状 ECP 菌毛。相反,ΔecpA 缺失株上完全缺失此类结构,回补株则完全恢复了这种束状形态(图 3)。这些结果表明 ecpA 基因是 ECP 菌毛组装不可或缺的。表面菌毛的缺失解释了所观察到的生物膜形成和黏附缺陷,从而在 ecpA 的结构作用与其对 APEC 毒力的贡献之间建立了直接联系。
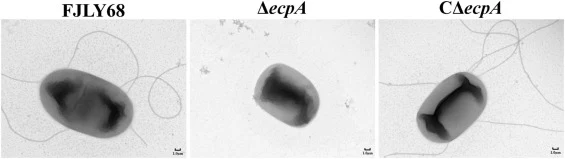
【数据】观察方法:TEM;负染:1% 磷钨酸;野生型与回补株:可见束状 ECP 菌毛;ΔecpA:菌毛完全缺失;回补株:束状形态完全恢复
3.4 ecpA 缺失诱导全局转录组变化
为探究 ecpA 缺失所致表型变化的分子机制,对野生型菌株 FJLY68、ΔecpA 缺失株和回补株 CΔecpA 进行转录组测序。主成分分析(PCA)显示,野生型与回补株在 PC1 维度紧密聚类(解释总方差的 96.4%),而 ΔecpA 缺失株与这两组明显分离(图 4A),表明 ecpA 敲除诱导了广泛的转录组变化,且回补株在很大程度上恢复了野生型转录谱。各组内生物学重复紧密聚类,证实重现性良好。差异表达分析显示,与野生型菌株相比,ΔecpA 缺失株有 1720 个显著差异表达基因(DEGs),其中 827 个上调、893 个下调。这些广泛的转录变化与观察到的运动、生物膜形成和黏附缺陷一致。相反,回补株 CΔecpA 与野生型菌株之间仅鉴定出 69 个 DEGs(20 个上调、49 个下调),证实回补株转录组已大体恢复至野生型水平。回补株与 ΔecpA 缺失株直接比较检测到 1712 个 DEGs,进一步证明突变株与回补株之间存在显著表达差异(图 4B)。对 ΔecpA 缺失株与野生型之间 1720 个 DEGs 的 GO 富集分析显示,DEGs 显著富集于翻译、肽生物合成、核糖体结构、有机氮化合物代谢和细胞代谢等生物学过程(图 4C)。KEGG 通路富集分析进一步揭示,这些基因显著富集于核糖体、氧化磷酸化、细菌趋化、鞭毛组装、嘧啶代谢、丙酮酸代谢和氮代谢等通路(图 4D)。这些功能通路与 ΔecpA 缺失株在运动、生物膜形成和黏附方面的缺陷高度一致,为表型观察提供了分子解释。
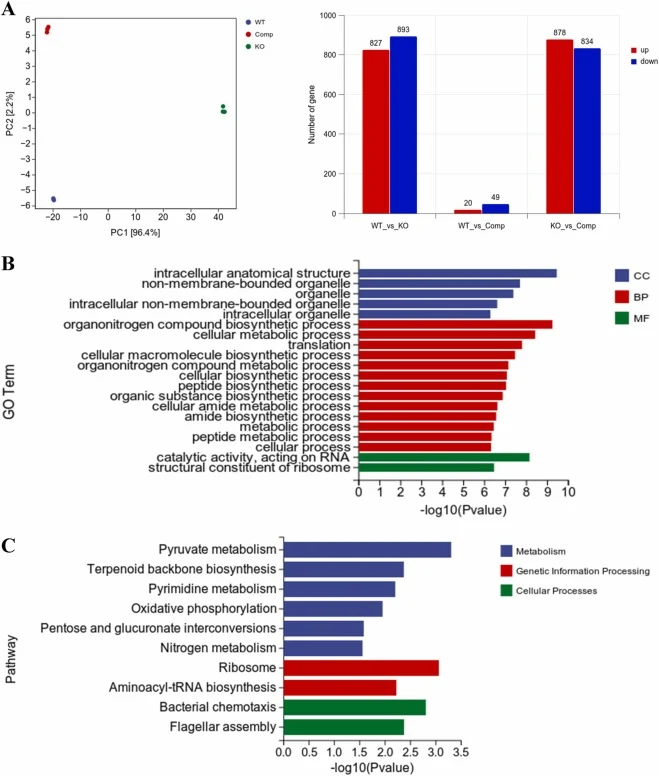
【数据】PC1 方差贡献:96.4%;ΔecpA vs 野生型:1720 个 DEGs(827 上调、893 下调);CΔecpA vs 野生型:69 个 DEGs(20 上调、49 下调);CΔecpA vs ΔecpA:1712 个 DEGs;阈值:|log₂ fold change| ≥ 1、P < 0.05;富集通路:核糖体、氧化磷酸化、细菌趋化、鞭毛组装、嘧啶代谢、丙酮酸代谢、氮代谢
3.5 ecpA 缺失减弱体内毒力与组织定植
鉴于 ECP 菌毛在黏附与定植中的已知作用,进一步研究 ecpA 是否参与 APEC 体内毒力。使用三日龄雏鸡感染模型,对野生型菌株、同源 ΔecpA 缺失株和回补株 CΔecpA 评估毒力。ΔecpA 缺失株表现出显著减弱的毒力,半数致死量(LD50)约为野生型菌株(1.1 × 10⁶ CFU/只)的 4.3 倍(4.7 × 10⁶ CFU/只)(表 2)。回补株毒力完全恢复(LD50 = 1.4 × 10⁶ CFU/只),证实减毒确由 ecpA 缺失所致。临床上,感染突变株的雏鸡症状明显较轻,仅表现为轻微嗜睡和轻度腹泻,且日采食量与体重增长显著高于野生型感染组(P < 0.01)(图 5A)。剖检进一步支持上述发现。感染 ΔecpA 缺失株导致器官病理显著减轻,特征为仅局灶性心包炎、轻度肝脂肪变性、脾肿大及相关出血明显减轻、肠道出血轻微。……(原文此处截断)
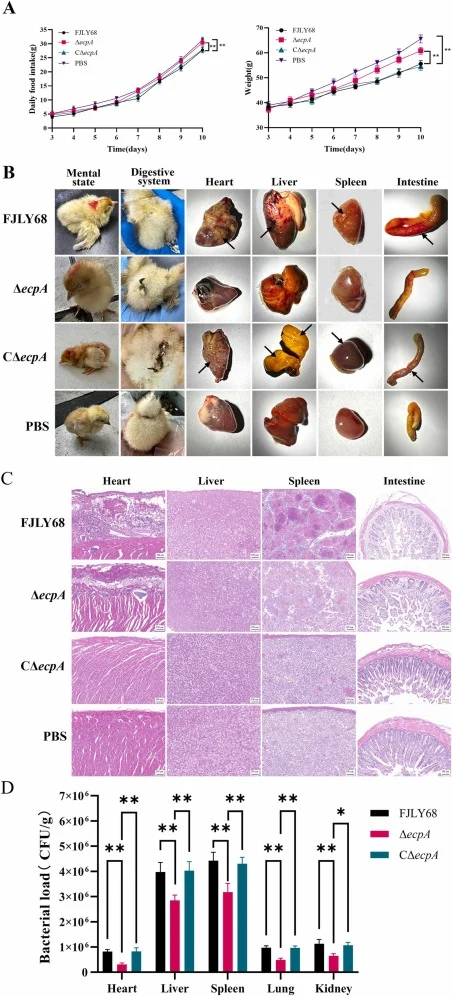
【数据】雏鸡日龄:3 日;野生型 LD50:1.1 × 10⁶ CFU/只;ΔecpA LD50:4.7 × 10⁶ CFU/只(约 4.3 倍);CΔecpA LD50:1.4 × 10⁶ CFU/只;采食量与增重:突变株组显著高于野生型组(P < 0.01);病理:局灶性心包炎、轻度肝脂肪变性、脾肿大及出血明显减轻、肠道出血轻微
讨论与解读
APEC 通过引起以高死亡率和重大经济损失为特征的系统性大肠杆菌病,对全球养禽业构成重大威胁。细菌黏附宿主组织是感染的关键初始步骤,常由菌毛等丝状表面附属物介导。其中,大肠杆菌共同菌毛(ECP)已被鉴定为肠道与肠外致病性大肠杆菌的关键黏附素,但其主要结构亚基基因 ecpA 在 APEC 致病性中的确切作用仍不明确。本研究系统解析了 ecpA 对 APEC 体外生物学特性与体内毒力的贡献:ecpA 缺失不影响总体生长适合度,却显著损害运动、生物膜形成、对禽源宿主细胞的黏附及菌毛组装,说明表型缺陷特异归因于 ecpA 而非生长改变;这些体外缺陷在雏鸡感染模型中得到验证,ecpA 缺失显著减弱毒力与组织定植。
编译者解读:该研究用 CRISPR/Cas9 无标记敲除加回补验证的经典组合,把 ecpA 从"ECP 结构亚基"提升为 APEC 多表型毒力枢纽,方法链条完整、因果闭环清晰。其应用价值在于 ecpA 失活不伤及细菌基本生长,符合减毒活疫苗"降毒不降活"的设计逻辑。局限也明显:表型与转录组的因果链仍以相关性为主,ECP 如何经鞭毛/趋化通路联动运动与生物膜尚缺直接分子证据;雏鸡模型虽给出 LD50 与病理数据,但田间宿主异质性与共感染场景未覆盖,距离候选疫苗株仍需更多安全性评价。
参考来源
期刊:Veterinary Microbiology, 2026
DOI: 10.1016/j.vetmic.2026.111145
DOI: 10.1016/j.vetmic.2026.111145