来源:Multi-omics insights into vanillin stress resistance in Escherichia coli: enhancing the bioproduction of natural food flavors(LWT)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
香兰素是食品工业中广泛使用的香料化合物,但微生物合成途径中香兰素的醛基亲电性带来的细胞毒性严重制约产量。本研究以大肠杆菌MG1655为对象,整合转录组与代谢组分析,系统揭示了其对香兰素胁迫的浓度依赖性响应机制。研究从中筛选并验证了13个候选基因,其中过表达alpA、rhoL和yoeB的菌株耐受性显著提升,alpA与rhoL共表达使香兰素产量达到876.61 mg/L,较亲本菌株提高90.1%。
研究背景
香兰素(4-羟基-3-甲氧基苯甲醛)是一种高价值香料化合物,具有独特的香草香气以及抗菌、抗氧化和抗群体感应等生物活性。天然香兰素主要从香草豆荚中提取,但生产1 kg香兰素约需500 kg豆荚,且高度依赖特定气候和土地资源,难以规模化。化学合成香兰素约占市场供应的85%,通常以愈创木酚或丁香酚等烃类为原料。愈创木酚合成路线需要碱性环境、Cu(II)催化剂和80–130 °C的高温反应条件,与可持续发展理念相悖。利用低成本底物的微生物生物合成因而成为有前景的替代方案。微生物合成的香兰素与天然香草提取物化学结构相同,完全符合国际食品安全规范和天然香料定义,在多元化食品生产中应用前景广阔。
然而,香兰素醛基的亲电性质导致其对微生物宿主具有细胞毒性,严重限制生产效率。理解香兰素对微生物宿主胁迫的分子机制,对于确保稳定、高质量的香兰素生产至关重要。
研究方法
2.1 菌株、质粒与培养条件
大肠杆菌DH5α用于质粒构建,大肠杆菌MG1655作为宿主。质粒pSB4A3用于基因表达。细胞在含5 g/L酵母提取物、10 g/L胰蛋白胨和10 g/L NaCl的LB培养基中培养。必要时添加氨苄青霉素(100 μg/mL)。所有标准品,包括香兰素、香草酸和香草醇,均购自Sigma-Aldrich。本研究所用菌株和质粒列于表S1。
对于香兰素胁迫实验,将过夜培养物以1:100稀释接种到新鲜LB培养基中。加入过滤灭菌的香兰素储备液(用70%甲醇配制)至终浓度0.5 g/L和1.0 g/L。对照组补充等体积不含香兰素的甲醇。所有培养物在37 °C、220 rpm振荡条件下孵育。每个实验进行三次独立生物学重复。
【数据】菌株:大肠杆菌DH5α(质粒构建)、大肠杆菌MG1655(宿主);质粒:pSB4A3;培养基:LB(5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L NaCl);抗生素:氨苄青霉素100 μg/mL;香兰素浓度:0.5 g/L和1.0 g/L;甲醇浓度:70%(储备液);接种稀释比:1:100;温度:37 °C;转速:220 rpm;重复数:3次独立生物学重复
2.2 生长曲线测定
所有菌株的生长曲线在标准摇瓶条件下获得。使用紫外-可见分光光度计(Shimadzu,日本)每2 h测定600 nm处光密度(OD600)以监测细菌生长。所有实验包括三次独立生物学重复。
【数据】检测方法:OD600;检测间隔:每2 h;仪器:紫外-可见分光光度计(Shimadzu,日本);重复数:3次独立生物学重复
2.3 微生物烃类黏附(MATH)实验
细胞表面疏水性采用MATH实验测定,以正十六烷为有机相,参照先前描述的方案(Goldberg et al., 1990; McLay et al., 2018)并稍作修改。培养12 h的细菌细胞经收获后,用无菌PBS(pH 7.4)洗涤两次,重悬至OD600为0.5–0.6(OD0)。取3 mL细胞悬液与1 mL PBS饱和的正十六烷在玻璃试管中混合,剧烈涡旋30 s,室温静置15 min进行相分离。小心收集下层水相,测定其OD600(OD1)。所有实验进行三次独立生物学重复。疏水性百分比计算如下:疏水性(%)=(1 – OD1/OD0)× 100。
【数据】有机相:正十六烷;培养时间:12 h;洗涤液:无菌PBS(pH 7.4);重悬OD600:0.5–0.6;细胞悬液体积:3 mL;正十六烷体积:1 mL;涡旋时间:30 s;静置时间:15 min;静置温度:室温;重复数:3次独立生物学重复;计算公式:疏水性(%)=(1 – OD1/OD0)× 100
2.4 转录组分析
为研究大肠杆菌对香兰素胁迫的转录响应,在胁迫处理12 h后收集细菌样品,每组三个生物学重复。总RNA使用TRIzol®试剂(Invitrogen,美国)提取。RNA质量严格控制,使用Agilent 2100 Bioanalyzer(Agilent Technologies,美国)和NanoDrop2000 One(Thermo Fisher Scientific,美国)评估完整性、纯度和浓度。所有样品的RNA完整性数值(RIN)均大于9.0。随后使用Illumina TruSeq Stranded mRNA Library Prep Kit构建链特异性RNA-seq文库。简言之,使用特异性探针去除核糖体RNA以富集mRNA。富集的mRNA被打断并用随机引物逆转录。在第二链cDNA合成过程中,掺入dUTP以保持链方向性。经过末端修复、加腺苷酸和接头连接后,用UDG酶消化第二链。随后用含索引的引物通过PCR扩增文库。最终文库在Illumina NovaSeq 6000平台(Illumina,美国)上测序,产生150 bp双端读数。原始测序数据用FastQC评估质量。使用Cutadapt(v1.9.1)修剪接头序列和低质量碱基,生成高质量干净读数。然后使用Bowtie2(v2.2.6)将这些读数比对到大肠杆菌MG1655参考基因组(NCBI RefSeq: GCF_000005845.2)。基于比对结果使用featureCounts定量基因表达水平。差异表达分析使用DESeq2 R包进行,应用|log2FC| ≥ 1和错误发现率(FDR)< 0.05的阈值鉴定差异表达基因(DEGs)。为解释DEGs的生物学功能,我们进行了基因本体论(GO)和京都基因与基因组百科全书(KEGG)富集分析。GO富集使用GOSeq(v1.34.1)实现,p值 < 0.05表示在生物学过程、细胞组分和分子功能中术语显著富集。KEGG通路富集使用clusterProfiler R包进行,同样使用p值 < 0.05定义显著富集的通路。这种整合方法系统性地鉴定了受香兰素胁迫影响的代谢和信号通路。
【数据】取样时间:胁迫后12 h;重复数:每组3个生物学重复;RNA提取试剂:TRIzol®;RIN阈值:>9.0;测序平台:Illumina NovaSeq 6000;读长:150 bp双端;比对工具:Bowtie2 v2.2.6;参考基因组:GCF_000005845.2;差异表达阈值:|log2FC| ≥ 1,FDR < 0.05;GO富集工具:GOSeq v1.34.1,p < 0.05;KEGG富集工具:clusterProfiler R包,p < 0.05
2.5 代谢组分析
香兰素胁迫处理12 h后,收集所有实验组和对照组的培养上清液,每组三个生物学重复。样品立即储存于−80 °C直至分析。代谢物提取遵循标准方案。简言之,样品用预冷的甲醇、乙腈和水混合溶剂(2:2:1,v/v)提取,溶剂中含同位素标记内标。混合物经涡旋、匀浆、冰水浴超声处理,然后在−40 °C孵育1 h以沉淀蛋白质。孵育后,样品在4 °C、12,000 ×g离心15 min,收集上清液用于分析。代谢物分离使用Vanquish UHPLC系统(Thermo Fisher Scientific,美国),配备Waters ACQUITY UPLC BEH Amide柱(2.1 mm × 50 mm,1.7 μm)。流动相由(A)25 mM乙酸铵和25 mM氢氧化铵水溶液(pH 9.75)和(B)乙腈组成。自动进样器温度维持在4 °C,进样体积2 μL。质谱检测在Orbitrap Exploris 120质谱仪(Thermo Fisher Scientific,美国)上进行,配备电喷雾离子源,在正离子和负离子模式下运行。关键仪器参数如下:鞘气流量50 arb;辅助气流量15 arb;毛细管温度320 °C;全MS分辨率60,000;MS/MS分辨率15,000;碰撞能量阶梯式(20、30、40 eV);喷雾电压3.8 kV(正离子)和−3.4 kV(负离子)。为确保仪器稳定性,质控(QC)样品通过混合所有样品的等分试样制备,在整个测序运行中定期分析。原始数据使用ProteoWizard转换为mzXML格式。然后使用基于XCMS的内部R脚本进行峰提取、对齐和积分。代谢物通过Thermo Fisher的mzCloud和mzVault MS/MS库以及内部MassList前体质量数据库进行鉴定。分子量从全扫描前体m/z获得;使用加合物离子数据在5 ppm质量容差内预测分子式,随后进行初步数据库匹配。具有MS/MS谱的化合物通过片段和碰撞能量比对与谱库进行验证。MassList存储标准品和注释代谢物的保留时间和前体质量。鉴定置信度根据代谢组学标准倡议评估。多变量统计分析包括无监督主成分分析(PCA)以可视化全局样本分布,随后进行有监督正交偏最小二乘判别分析(OPLS-DA)以最大化组间分离。每个OPLS-DA模型的可靠性通过7折交叉验证和1000次置换检验验证,使用R2Y(拟合优度)和Q2(预测能力)量化模型性能。差异代谢物通过结合第一OPLS-DA组分的变量重要性投影(VIP)值(VIP ≥ 1)、Student's t检验p值(p ≤ 0.05)和|log2FC| ≥ 1阈值进行筛选。为阐明差异代谢物的生物学相关性,进行了KEGG通路注释和富集分析。
【数据】取样时间:胁迫后12 h;重复数:每组3个生物学重复;储存温度:−80 °C;提取溶剂:甲醇:乙腈:水(2:2:1,v/v)含同位素标记内标;蛋白沉淀温度:−40 °C;蛋白沉淀时间:1 h;离心条件:12,000 ×g,15 min,4 °C;色谱柱:Waters ACQUITY UPLC BEH Amide(2.1 mm × 50 mm,1.7 μm);流动相A:25 mM乙酸铵+25 mM氢氧化铵(pH 9.75);流动相B:乙腈;自动进样器温度:4 °C;进样体积:2 μL;鞘气流量:50 arb;辅助气流量:15 arb;毛细管温度:320 °C;全MS分辨率:60,000;MS/MS分辨率:15,000;碰撞能量:20、30、40 eV;喷雾电压:3.8 kV(正)、−3.4 kV(负);质量容差:5 ppm;OPLS-DA验证:7折交叉验证,1000次置换检验;差异代谢物筛选:VIP ≥ 1,p ≤ 0.05,|log2FC| ≥ 1
研究结果
3.1 大肠杆菌对香兰素胁迫的动态响应
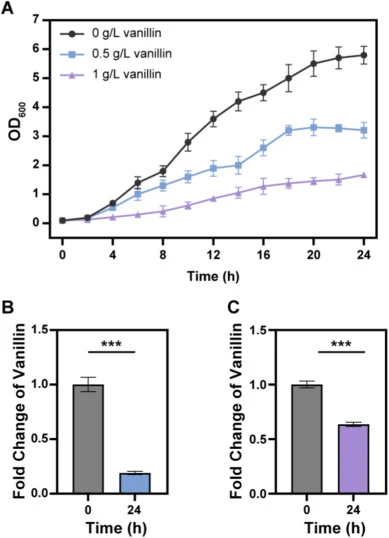
为评估大肠杆菌对香兰素的耐受性,在梯度浓度香兰素下监测细菌生长。如图1A所示,细胞在无香兰素培养基中生长旺盛,24 h后最终OD600达到5.72。香兰素浓度升高逐步抑制细胞生长,显著延长滞后期,减缓指数生长速率,最终降低生物量产量。值得注意的是,添加1 g/L香兰素的培养物维持持续低生物量积累(图1A),表明强烈的生长抑制效应。细胞表面疏水性实验显示,香兰素暴露后呈剂量依赖性增加(图S1),表明膜疏水胁迫加剧。在中等胁迫下(0.5 g/L香兰素),香兰素被大量消耗,暗示大肠杆菌能够将香兰素转化为毒性较低的代谢物(图1B)。相比之下,高浓度组(1.0 g/L香兰素)中残留香兰素的下降远不如中等浓度组显著(图1C)。这些发现表明,大肠杆菌具有可检测的耐受和代谢香兰素的能力,但该能力不足以在高浓度香兰素胁迫下维持正常生长和代谢活动。
【数据】对照最终OD600:5.72(24 h);香兰素浓度:0.5 g/L和1.0 g/L;培养时间:24 h;检测指标:OD600、细胞表面疏水性、残留香兰素浓度
3.2 香兰素胁迫下大肠杆菌的转录组与代谢组景观
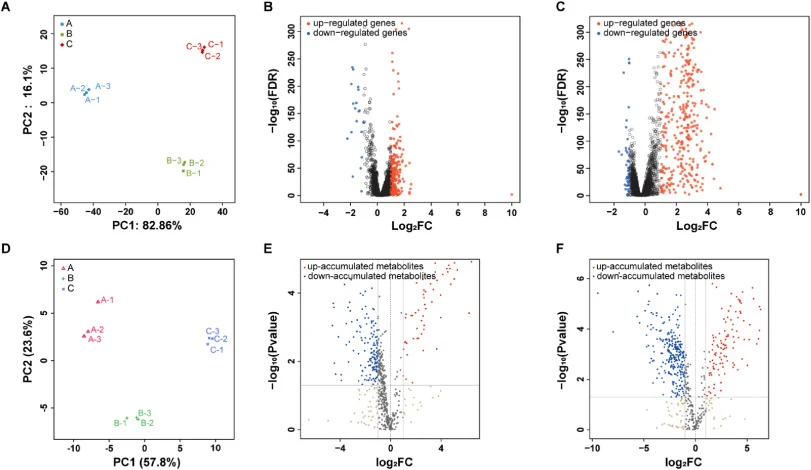
为阐明大肠杆菌响应香兰素胁迫的全局分子机制,进行了转录组学和非靶向外代谢组学的整合分析。两个组学数据集的PCA分析揭示了明显的样本聚类,与香兰素浓度梯度一致的清晰分离(图2A–D)。代谢组OPLS-DA模型表现出高拟合和预测性能:R2Y = 0.996,Q2 = 0.969(p = 0.097,中等浓度胁迫)和R2Y = 1.000,Q2 = 0.987(p = 0.108,高浓度胁迫)(图S2)。经过严格质量控制和统计过滤(转录组:|log2FC| ≥ 1,FDR < 0.05;代谢组:P < 0.05,VIP ≥ 1),鉴定出一系列显著改变的分子特征。在中等浓度胁迫下,筛选出589个差异表达基因(DEGs;530个上调,59个下调)和209个差异丰度代谢物(DAMs;57个上调,152个下调)(图2B–E)。在高浓度胁迫下,检测到705个DEGs(675个上调,30个下调)和364个DAMs(102个上调,262个下调)(图2C–F)。这些结果揭示了大肠杆菌在转录和代谢水平上协调的剂量依赖性响应,典型表现为转录防御程序的广泛激活伴随代谢物的广泛耗竭。
【数据】OPLS-DA模型(中等浓度):R2Y = 0.996,Q2 = 0.969,p = 0.097;OPLS-DA模型(高浓度):R2Y = 1.000,Q2 = 0.987,p = 0.108;中等浓度DEGs:589个(530上调,59下调);中等浓度DAMs:209个(57上调,152下调);高浓度DEGs:705个(675上调,30下调);高浓度DAMs:364个(102上调,262下调);转录组阈值:|log2FC| ≥ 1,FDR < 0.05;代谢组阈值:P < 0.05,VIP ≥ 1
3.3 香兰素胁迫下DEGs的功能注释与富集分析
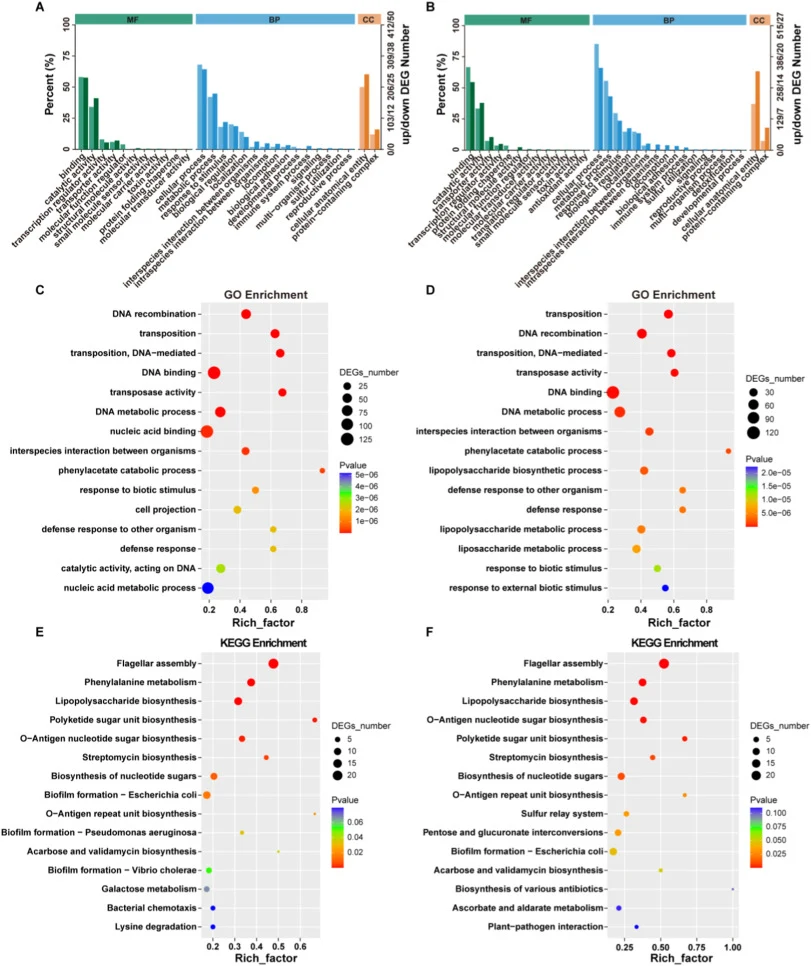
为系统表征香兰素胁迫对大肠杆菌的生物学影响,在三个主要类别中进行了GO富集分析:生物学过程(BP)、细胞组分(CC)和分子功能(MF)。BP富集分析揭示了细胞适应性响应中显著的剂量依赖性转变。在中等浓度胁迫下,与细胞生长和发育过程相关的通路中度富集(图3A)。相反,在高浓度胁迫下,生长相关通路的富集减弱,而解毒和抗氧化过程显著激活(图3B)。这种通路富集的动态转变暗示了细胞内资源对香兰素浓度增加的战略性重分配。在中等胁迫下,大肠杆菌倾向于通过精细调节信号转导和基因表达调控来优先维持稳态生长。随着香兰素浓度增加,细胞生存策略转向全面防御响应,将资源重新导向激活解毒和抗氧化系统,以快速消除香兰素及其相关活性氧,从而减轻细胞损伤。在MF类别中,包括结合和催化活性在内的核心生化功能在两种胁迫条件下均富集(图3A和B)。在中等浓度胁迫下,转录调节因子活性显著富集(图3A),而高浓度胁迫触发抗氧化活性激活并增强翻译调节因子活性的富集(图3B)。两种胁迫条件下结合和催化活性的持续富集表明细胞防御机制的普遍激活,包括广泛的底物、辅因子、金属离子结合,以及酶重编程以对抗香兰素引起的生理紊乱。不同胁迫强度下的特定富集模式揭示了分层调控策略。在中等胁迫下,大肠杆菌利用转录因子和调节蛋白精细调节基因表达并维持正常细胞稳态。在严重胁迫下,翻译调节因子活性的富集进一步将这一调控网络延伸至翻译水平,实现更快速的蛋白质组适应性响应。分子转导活性、分子功能调节和分子载体活性的同时改变表明适应性修饰以增强细胞骨架稳定性和分子伴侣功能,促进严重胁迫下细胞稳态的维持(Wang, Kang, et al., 2023)。CC分析表明,香兰素胁迫触发了细胞解剖实体和含蛋白复合物的广泛结构扰动,其严重程度与香兰素浓度正相关(图3A和B)。总体而言,GO富集结果表明香兰素胁迫抑制了涉及核酸代谢和大分子生物合成等核心过程的通路(图3C和D)。相反,与DNA重组和修复、解毒和细胞膜完整性相关的通路被激活。值得注意的是,与生物膜形成和脂多糖代谢相关的通路在高浓度香兰素胁迫下高度富集。随后,进行KEGG富集分析以探索大肠杆菌对香兰素胁迫的代谢适应,分别在0.5 g/L和1.0 g/L香兰素胁迫下鉴定出73和81个显著富集的通路(图3E和F)。尽管胁迫强度不同,若干核心通路在两组中持续富集,如鞭毛组装、苯丙氨酸代谢和脂多糖生物合成。富集谱的比较分析揭示了大肠杆菌的浓度依赖性适应策略。在高浓度胁迫下,涉及构建物理屏障的通路,包括脂多糖生物合成、核糖体功能和O-抗原核苷酸糖生物合成被更强烈地上调(图3F)。这表明在急性胁迫下,大肠杆菌通过增强脂多糖和其他膜组分的合成来强化外膜,以限制香兰素渗透(Qin et al., 2025)。核糖体相关通路的同时上调表明蛋白质合成能力增强,这可能是产生资源密集型防御系统如膜蛋白和解毒酶所必需的(Zhu, Mu, & Dai, 2024)。这些响应共同反映了细胞资源的系统性重分配,以优先……
【数据】中等浓度KEGG显著富集通路数:73个;高浓度KEGG显著富集通路数:81个;GO富集p值阈值:< 0.05;富集分析类别:BP、CC、MF;共有富集通路:鞭毛组装、苯丙氨酸代谢、脂多糖生物合成
讨论与解读
本研究通过整合转录组和代谢组分析,系统解析了大肠杆菌在香兰素胁迫下的响应特征。研究发现细胞对香兰素的响应严格呈剂量依赖性:中等浓度胁迫下,大肠杆菌优先维持生长和代谢精细调节;高浓度胁迫则迫使细胞转向以生存为导向的系统,包括解毒、抗氧化防御和细胞包膜强化。代谢组证据进一步证实了系统性重编程,特征为中心碳通量重定向、氧化还原辅因子耗竭、膜完整性受损以及氨基酸代谢网络的广泛重构。严重胁迫下谷胱甘肽系统的崩溃暗示大肠杆菌内源性防御的潜在瓶颈。
基于这些机制见解,研究鉴定并验证了一系列非转化依赖性耐受靶点,包括alpA、rhoL和yoeB。这些靶点通过增强内源性细胞胁迫韧性而非将香兰素转化为低毒衍生物来赋予耐受性。这一显著优势表明它们在工程化经济型香兰素生物生产菌株方面具有巨大潜力。alpA和rhoL的协同共表达实现了876.61 mg/L的香兰素滴度,较亲本菌株提高90.1%。
编译者解读: 该研究的方法学亮点在于将非转化依赖性耐受靶点与转化依赖性代谢工程策略区分开来。传统思路多聚焦于增强香兰素向低毒产物的转化,但这会分流前体、降低目标产量。alpA和rhoL等靶点通过提升细胞本底胁迫韧性起作用,理论上可与任何生产途径叠加,适配性更强。不过,研究目前仅在摇瓶水平验证,876.61 mg/L的滴度距工业需求仍有差距,且谷胱甘肽池耗竭这一瓶颈尚未通过代谢工程手段直接解决。后续若能将耐受靶点与谷胱甘肽再生系统共改造,或可进一步突破产量天花板。
参考来源
期刊:LWT, 2026
DOI: 10.1016/j.lwt.2026.119834
DOI: 10.1016/j.lwt.2026.119834