来源:蛋白表达量低宿主菌株选择(DNA Lab Space 实验教程)| 编译:DNA Lab Space
做重组蛋白,最让人挠头的不是没条带,是条带弱得跟背景一样。你换了载体、调了IPTG、跑了三次SDS-PAGE,目标带还是若有若无。多数人第一反应是"载体不行",然后重新克隆,白干两周。实际上,表达量低里至少一半的坑出在宿主菌株选择上——菌株不对,再优化的启动子也白搭。这篇按实验流程拆开讲:从低级失误到菌株基因型匹配,每一步给你判断依据、验证动作和具体参数。照着走,大概率能找到那个卡住你的环节。
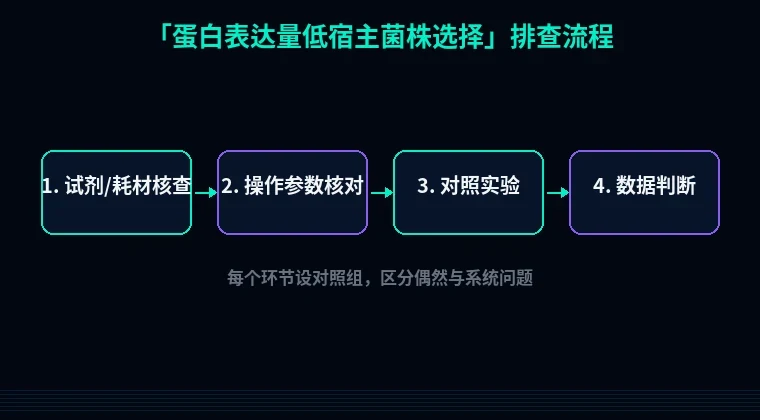
第一步:先别急着换菌,把这几个低级错误排掉
新手翻车往往不是菌株选错,而是操作细节漏了。
1. 抗生素忘加或浓度减半。 现象是诱导后菌液OD600涨得飞快,但质粒早就丢了。LB里卡那霉素用50 µg/mL,氨苄青霉素100 µg/mL,且氨苄要现配——β-内酰胺酶会把老母液降解掉,菌长得欢,质粒全是空载。
2. 诱导时机不对。 OD600 0.1就加IPTG,菌还没长起来;OD600 1.5才诱导,菌已经进平台期,代谢活性差。标准是OD600 0.6–0.8,37°C大约养2.5–3小时。
3. 温度一条道走到黑。 37°C加0.5 mM IPTG诱导4小时,对多数可溶蛋白是灾难,全进包涵体。先降16°C过夜(16–18小时),IPTG降到0.1–0.3 mM试试。
4. 甘油管反复冻融。 每次划线都从-80°C取同一管,三次以后活力掉一半。重新转化新鲜质粒,别偷懒。
第二步:按表达流程分维度系统排查
前面四步都干净,还是低,那就要动菌株了。按"启动子匹配→毒性→密码子→折叠"的顺序查。
1. 你的质粒和菌株的聚合酶对上了吗?
现象:换了几种培养基,表达量纹丝不动,连本底都没有。
原理:pET系列用T7启动子,必须用带DE3溶原的菌(BL21(DE3)、Rosetta(DE3)等)才能提供T7 RNA聚合酶。你要是把pET质粒转进普通BL21或DH5α,根本没人读这个启动子。
解决:核对质粒启动子。T7体系→BL21(DE3)类;pGEX、pMAL用tac/lac启动子→普通BL21即可,用DE3反而会因为本底T7聚合酶带来额外负担。验证方法:跑一管不加IPTG的对照,如果加与不加条带强度一样,启动子/聚合酶大概率没匹配上。
2. T7聚合酶泄漏表达,把菌"毒"死了
现象:转化后平板菌落特别小,液体培养长得慢,诱导后OD600不升反降。
原理:BL21(DE3)的DE3溶原由lacUV5控制,没加IPTG也有少量泄漏。表达膜蛋白、毒性蛋白时,这点泄漏就够让质粒丢失或菌裂解。
解决:换BL21(DE3)pLysS或pLysE。它们额外带一个表达T7溶菌酶的质粒,专一抑制T7聚合酶本底活性。代价是pLysS要加氯霉素34 µg/mL,且溶菌酶会让菌更脆,收菌后别放太久。验证:同一质粒平行转BL21(DE3)和pLysS,比平板菌落大小和诱导前OD600曲线。
**
**
3. 稀有密码子拖慢翻译
现象:表达量低,但mRNA水平正常(qPCR能查到),蛋白就是上不去。
原理:大肠杆菌里Arg的AGG/AGA、Ile的AUA、Leu的CUA丰度低。你的基因若来自人、拟南芥,这些密码子成簇出现,核糖体就卡在那儿。
解决:两种路子。一是换Rosetta(DE3)或BL21 CodonPlus,它们补表达了稀有tRNA;二是做密码子优化,把rare codon替换成偏好密码子,但要注意别把mRNA二级结构改出问题。验证:先用Rosetta试一次,条带变强就坐实了密码子问题,再决定是否重新合成基因。
4. 二硫键折叠受限
现象:目标蛋白出现在沉淀里,上清几乎没有;或者上清里有,但活性检测为零。
原理:BL21的胞质是还原环境,含二硫键的蛋白在这儿折不出正确构象。Origami系列敲了thioredoxin reductase(trxB)和glutathione reductase(gor),胞质偏氧化;Shuffle T7进一步过表达DsbC,专治多二硫键蛋白。
解决:含二硫键的分泌蛋白或抗体片段,直接上Shuffle T7,16°C诱导过夜。注意Shuffle生长慢,诱导前OD600到0.4–0.6就够了,别等到0.8。验证:同时跑还原与非还原SDS-PAGE,非还原胶上条带迁移率变了,说明二硫键形成了。
5. 蛋白酶降解,条带刚出来就没了
现象:诱导30分钟有条带,2小时后反而变淡。
原理:BL21本身缺lon和ompT两个主要蛋白酶,已经比K-12系好。但你要表达的是小蛋白或带特殊序列,残留蛋白酶还是会啃。
解决:确认用的是BL21系列而不是DH5α、TOP10这类克隆菌。若仍降解,换BL21(DE3)的衍生株或加蛋白酶抑制剂cocktail(1片/10 mL裂解液)。验证:诱导后0、1、2、4小时各取1 mL,加loading buffer煮沸后冻存,最后一起跑胶看时程。
第三步:进阶疑难——那些换了菌株也没用的情况
毒性蛋白的精细调控。 Lemo21(DE3)带一个可调表达的T7溶菌酶质粒,用鼠李糖控制抑制强度:0 µM鼠李糖→全抑制,2000 µM→几乎不抑制。表达膜蛋白时从500 µM开始梯度试,找到"菌能长、蛋白能出"的窗口,比死磕pLysS灵活得多。
冷激与低温折叠。 ArcticExpress共表达嗜冷菌的Cpn10/Cpn60伴侣,4–13°C诱导。对容易聚集的蛋白,12°C过夜往往比16°C效果好。代价是长得极慢,诱导前OD600到0.5就行,别指望过夜能到2.0。
无细胞体系救急。 真碰到膜蛋白、毒性蛋白,菌株怎么调都不出,别硬耗。大肠杆菌无细胞提取物加你的质粒,3–4小时反应,避开毒性和包涵体问题。适合小量验证,不适合放大。
避坑总结与实操建议
三条结论:一是先核对启动子与聚合酶匹配,这一步错后面全白费;二是毒性蛋白优先考虑pLysS/pLysE或Lemo21,别在BL21(DE3)上硬扛;三是稀有密码子和二硫键是两类独立问题,Rosetta和Shuffle别混用,先判断属于哪一类。
两个日常习惯:转化后一定留对照平板(空载体+同菌株),每次表达都带上,不然你连"菌株本身不干活"还是"构建有问题"都分不清;诱导前取样测OD600并记录,建立自己的菌株生长曲线库,下次一眼能看出异常。
基因还没合成的,先把密码子优化做一遍,把AGG/AGA、AUA这些换成大肠杆菌偏好密码子,再决定要不要Rosetta。引物设计时留意5'端GC含量和Tm,别让二级结构拖累翻译起始。蛋白老是进沉淀的,试试可溶性优化工具预测一下标签位置和截短方案,比盲目换菌株省时间。这几步在站内都有对应工具,顺着用一遍,再上摇床。