来源:蛋白电泳条带缺失抗体孵育时间(DNA Lab Space 实验教程)| 编译:DNA Lab Space
做了一整天WB,ECL压片后胶片上一片空白,只有marker还在。第一反应往往是"抗体坏了"或者"孵育时间不够",于是把一抗从1小时改成过夜,结果还是没条带。抗体孵育时间确实关键,但它很少是单独作案的凶手。这篇教程按实验流程拆解,从样本制备到显影,把条带缺失的真实原因一条条揪出来,重点讲清楚孵育环节怎么判断、怎么验证、怎么补救。
第一步:先查这几个低级错误,别急着怀疑抗体
新手翻车,十有八九栽在这几处。花五分钟核对,能省你一整天。
1. 转膜方向搞反了。 胶靠近滤纸还是膜?记住"膜在正极侧"。转完看一眼膜上有没有预染marker,没有就是没转上,别往下走了。
2. 一抗种属对不上。 兔源一抗配了兔源二抗,二抗直接失联。确认一抗种属和标签,再选对应二抗(抗兔/抗鼠/抗羊)。
3. 封闭液和抗体稀释液用了脱脂奶粉做磷酸化蛋白。 奶粉里的酪蛋白本身就是磷酸化蛋白,会跟抗体抢靶点。磷酸化抗体一律用5% BSA。
4. ECL工作液失效。 A液B液1:1混合后,避光放置超过10分钟活性就掉了。现配现用,别心疼。
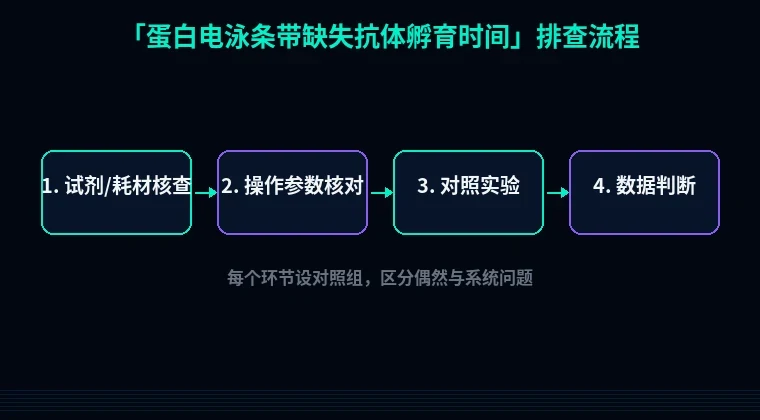
第二步:分维度系统排查,顺着流程走
1. 样本端:蛋白到底在不在膜上?
现象:连内参(如GAPDH、β-actin)都没条带,整张膜全空。
原理:内参缺失说明不是目标蛋白的问题,是上样量或转膜出了问题。内参是阳性对照,它的存在与否决定你往哪个方向查。
解决步骤:取10 μL裂解液做BCA定量,确保每孔上样20-30 μg。裂解液里补加蛋白酶抑制剂(PMSF 1 mM、cocktail 1×),冰上操作。煮沸变性5分钟,100°C,别偷懒只煮2分钟。
验证方法:跑一块胶,考马斯亮蓝染色看总蛋白条带是否完整。或者丽春红染膜,看转膜效率。
2. 转膜端:小蛋白转过头的坑
现象:内参有,目标蛋白没有,且目标蛋白分子量小于30 kDa。
原理:小分子蛋白在湿转时容易穿透膜跑到滤纸里。200 mA转2小时对20 kDa的蛋白就是灾难。
解决步骤:小蛋白改用0.22 μm孔径PVDF膜(不是0.45 μm),转膜电流降到100 mA,时间缩到40-60分钟,或者加20%甲醇降低迁移速率。
验证方法:转膜后用丽春红染膜,能看到目标分子量位置的条带就说明蛋白在膜上。
3. 封闭端:封闭过头等于没信号
现象:背景干净得可疑,一点杂带都没有。
原理:封闭液浓度过高(5%脱脂奶粉)或者封闭时间过长(过夜),会把膜上所有结合位点糊死,抗体进不去。
解决步骤:改用5% BSA或3%脱脂奶粉,室温封闭1小时。别过夜封闭,除非你做的是磷酸化蛋白且用BSA。
验证方法:做一次梯度实验,封闭30分钟、1小时、2小时各跑一膜,对比信号强度。
4. 抗体孵育端:时间和浓度的平衡术
现象:一抗孵育1小时没条带,改成过夜还是没条带,或者背景极高但目标带模糊。
原理:抗体孵育是浓度×时间的乘积。浓度太低,孵育再久也结合不上;浓度太高,过夜孵育导致非特异性结合爆表。一抗工作浓度通常在1:1000到1:5000,过夜孵育建议用1:5000-1:10000。
解决步骤:一抗4°C孵育过夜(12-16小时),用1×TBST稀释。二抗室温孵育1小时,浓度1:5000-1:10000。洗膜:一抗后洗3次,每次10分钟,TBST;二抗后同样洗3次。
验证方法:设置浓度梯度,1:500、1:1000、1:2000各孵一膜,找到信噪比最好的点。记住这个浓度,下次直接用。
5. 显影端:ECL和压片的时间控制
现象:抗体没问题,但曝光后胶片空白。
原理:ECL反应产生的化学发光信号随时间衰减,压片时间太短捕捉不到,太长则背景全黑。
解决步骤:ECL A液B液1:1混合,均匀滴在膜上,避光反应1-3分钟。暗室压片,先压30秒看有没有信号,有信号再调整到1分钟、5分钟。
验证方法:用X光片或者CCD成像仪,先短时间曝光,避免一次性压片20分钟把底片压废。
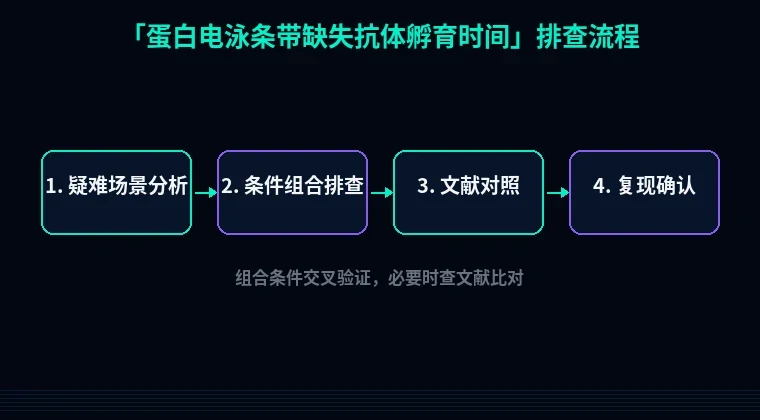
第三步:进阶疑难,这些坑老手也常踩
1. 抗体被叠氮钠污染。 叠氮钠(NaN₃)是常用的防腐剂,但它是HRP的强抑制剂。如果一抗稀释液里含0.02%叠氮钠,ECL信号会被直接灭掉。换掉稀释液,用不含叠氮钠的TBST。
2. 膜干了。 PVDF膜一旦干燥,蛋白就不可逆地吸附在膜上,抗体再也结合不上去。转膜后到显影前,膜必须始终保持湿润。操作台旁边放个装TBST的托盘,膜不操作时就泡着。
3. 目标蛋白被降解。 如果内参好、抗体新、转膜也对,目标带还是没有,很可能是裂解时蛋白降解了。裂解液必须新鲜加抑制剂,全程冰上,裂解后立即煮沸或冻存-80°C。
避坑总结+实操建议
三条核心结论:
1. 内参是分水岭。 内参没有,查样本和转膜;内参有目标没有,查抗体和封闭。
2. 孵育时间不是越长越好。 一抗过夜配高稀释比(1:5000以上),二抗室温1小时配1:5000。
3. 每一步都要有阳性对照。 预染marker看转膜,丽春红看载量,内参看整体流程。
两条日常好习惯:
- 抗体分装冻存,避免反复冻融。一抗按每次用量分装,-20°C保存,用多少取多少。
- 每次实验记详细记录:抗体批号、稀释比、孵育时间、曝光时长。出问题时能快速回溯。
工欲善其事,先用对工具
排查完实验操作,如果问题出在抗体本身或者靶点设计上,站内工具能帮你省不少事。做WB之前,用引物设计工具确认你的克隆序列没问题;表达重组蛋白时,密码子优化能提高表达量,避免因为蛋白量太低导致条带缺失;如果是可溶性蛋白表达困难,蛋白可溶性优化工具能帮你调整标签和宿主,从源头提高上样量。工具用对了,实验少走一半弯路。