来源:Development of an Escherichia coli-based diterpenoid bioproduction foundry(Chemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
二萜类化合物结构复杂、生物活性丰富,但在微生物异源生产中长期受制于前体供应不足、代谢流失衡和中间体毒性,大肠杆菌中的产量尤为有限。本研究建立了二萜生物合成铸造厂(diBTF)平台,将底盘-途径组合评估、基因组尺度模型(GEM)指导的代谢网络重塑与酶优化整合为决策规则驱动的工作流。以香紫苏醇和甜菊醇糖苷为对象,香紫苏醇产量达8.09 g/L(0.112 g/L/h),甜菊醇糖苷达4.95 g/L(0.024 g/g葡萄糖,0.052 g/L/h),均创微生物宿主最高纪录。
研究背景
二萜类化合物是萜类中结构多样性最高、功能最丰富的亚类之一,衍生自C20前体GGPP(香叶基香叶基焦磷酸),具有多样的碳骨架、多个立体中心和环化后修饰,在医药、农药、香料和功能材料领域应用广泛。然而,大多数二萜在天然植物或动物来源中积累量低,提取依赖长种植周期、大面积土地和环境敏感型加工条件。微生物生物合成提供了可持续的替代方案——倍半萜和三萜已在微生物宿主中实现高滴度生产并有商业化案例,但二萜仍面临宿主兼容性差、生产效率低和总成本高等长期挑战,缺乏经济、标准化的生产平台。大肠杆菌作为原核模式宿主,其二萜产量(< 2.0 g/L)显著低于真核酵母。为此,作者建立了diBTF平台,整合底盘评估、途径模块化、GEM迭代修饰和酶优化,并以结构及生物合成复杂度不同的香紫苏醇和甜菊醇糖苷验证平台的通用性。
研究方法
2.1 菌株与培养基
本研究使用的所有菌株和质粒列于表S1。基因克隆时,大肠杆菌DH5α在Luria–Bertani(LB)培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)中37 °C、250 rpm振荡培养。JM109(DE3)、BL21(DE3)、MG1655(DE3)、ArcticExpress(DE3)和W3110(DE3)用作香紫苏醇和甜菊醇糖苷生产的宿主菌株,重组大肠杆菌在25 °C、250 rpm条件下于含25 mL M9KG培养基(4.2 g/L KH2PO4、12 g/L K2HPO4、2 g/L (NH4)2SO4、1.96 g/L柠檬酸·H2O、35 g/L甘油、20 g/L酵母提取物)的250 mL摇瓶中培养,并添加适当抗生素。香紫苏醇生产时,向M9KG培养基中加入10%(v/v)正十二烷。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)、M9KG(4.2 g/L KH2PO4、12 g/L K2HPO4、2 g/L (NH4)2SO4、1.96 g/L柠檬酸·H2O、35 g/L甘油、20 g/L酵母提取物);温度:37 °C(克隆)、25 °C(生产);转速:250 rpm;正十二烷:10%(v/v);摇瓶:250 mL含25 mL培养基
2.2 质粒与突变变体
所有编码重组蛋白的基因均经密码子优化并由通用生物(安徽)有限公司合成,插入pET-28a载体的NdeI和HindIII限制性位点(表S2)。为供应二萜生产所需的GGPP前体,扩增编码BsDxs、EcDxr和BsFni的DNA片段并组装入pCDFDuet-1,得到质粒pMEP;SfPhon、MtIPK和BsFni同样克隆入pRSFDuet-1生成pIUP;EcAtoB、EfmvaS、EfmvaE、Samvk1、Samvk2、SamvaD和BsFni插入pACYCDuet-1,产生质粒pMVA001。此外,LmXpk和CkPta与pMVA001重组创建pMANOG001。为生产香紫苏醇,从丹参中扩增密码子优化的SsLPS和SsScs基因,以及从红豆杉中扩增TcGGPPS基因片段,与修饰的pET21d载体片段(氨苄青霉素抗性基因被阿普霉素抗性基因替换)重组,获得香紫苏醇生产质粒pSC001。为从GGPP生产甜菊醇糖苷,构建了两个质粒。第一,通过将密码子优化的TcGGPPS、SrCPS、SrKS、SrKO、SrCPR和SrKAHel片段插入pET21d-AprR,克隆GGPP到甜菊醇模块,得到pSTV001。第二,通过将SrUGT74G1和SrUGT85C2连接到pET28a,构建UDP-Glc供体和糖基转移酶模块,生成pRub001。pSTV001和pRub001在大肠杆菌中共表达将GGPP转化为甜菊醇糖苷。所有Samvk2、SsLPS、SsScs、SrKAHel、SrUGT74G1和SrUGT85C2的突变体均使用表S3所列算法生成。亲本质粒pMANOG004、pSC007、pSTV001和pRub002用作突变构建的模板。不同突变体通过全质粒PCR技术扩增。PCR产物经DpnI消化后转化入大肠杆菌DH5α。阳性克隆通过菌落PCR筛选,突变通过Sanger测序确认。
【数据】载体:pET-28a、pCDFDuet-1、pRSFDuet-1、pACYCDuet-1、pET21d(AprR)、pET28a;质粒:pMEP、pIUP、pMVA001、pMANOG001、pSC001、pSTV001、pRub001;限制性位点:NdeI、HindIII;消化酶:DpnI;验证方法:菌落PCR、Sanger测序
2.3 大肠杆菌底盘遗传修饰
所有大肠杆菌菌株均使用CRISPR-Cas9介导的基因编辑技术进行遗传修饰。以Δedd::PJ23119-zwf的遗传修饰为例说明。通过在线CRISPR gRNA设计工具(http://crispor.tefor.net/)设计靶向edd基因的N20序列。以质粒pEcgRNA为模板,使用引物对F/R-edd进行PCR扩增以线性化质粒,所得PCR产物随后环化构建携带靶gRNA的重组质粒pEcgRNA-edd。以大肠杆菌染色体为模板,使用引物对F/R-D1和F/R-D3分别进行PCR扩增,获得上游同源臂(D1)和下游同源臂(D3)。引物F/R-D2用于敲入基因扩增,使用相应模板(zwf敲入时使用大肠杆菌BL21(DE3)染色体)。三个片段通过重叠PCR组装,生成供体片段Donor-edd-zwf。将重组质粒pEcgRNA-edd和供体片段Donor-edd-zwf共转化入含pEcCas9质粒的大肠杆菌BL21(DE3)感受态细胞。挑取平板上的单菌落进行菌落PCR,验证edd基因的敲除效率和zwf基因的敲入状态,阳性克隆进一步通过DNA测序确认。对于测序验证的阳性克隆,分别加入L-鼠李糖消除pEcgRNA-edd质粒,加入蔗糖消除pEcCas9质粒,最终获得空底盘菌株ΔSCR001。
【数据】编辑技术:CRISPR-Cas9;靶基因:edd(敲除)、zwf(敲入);启动子:PJ23119;质粒:pEcgRNA、pEcCas9;消除剂:L-鼠李糖(消除pEcgRNA-edd)、蔗糖(消除pEcCas9);验证:菌落PCR、DNA测序;最终菌株:ΔSCR001
2.4 香紫苏醇和甜菊醇糖苷的摇瓶培养
香紫苏醇和甜菊醇糖苷的摇瓶培养使用M9KG培养基。种子培养时,取20 μL重组菌株接种于25 mL含适当抗生素的LB培养基中。种子培养在37 °C、250 rpm下生长12 h,然后以1%(v/v)接种量转入含微量元素和抗生素的新鲜M9KG培养基中。在相同条件下培养。当OD₆₀₀达到0.5–0.8时,用0.1 mM IPTG诱导。对于IUP测定,同时加入5 g/L异戊烯醇。随后温度降至25 °C继续培养。香紫苏醇菌株和甜菊醇糖苷菌株的培养时间分别为72 h和96 h,然后取样进行HPLC分析。所有实验均做三个平行。
【数据】接种量:20 μL种子液/25 mL LB;转接量:1%(v/v);诱导剂:0.1 mM IPTG;诱导OD₆₀₀:0.5–0.8;IUP测定添加:5 g/L异戊烯醇;培养温度:37 °C(种子)、25 °C(生产);培养时间:香紫苏醇72 h、甜菊醇糖苷96 h;检测方法:HPLC;平行数:3
2.5 UGT74G1和UGT85C2的体外活性测定
UGT74G1和UGT85C2及其相应突变体的体外生化测定使用粗酶进行。终浓度2 mM甜菊醇作为底物,加入1 mL反应混合物中,反应混合物由20 mM Tris-HCl缓冲液(pH 7.2)和10 mM UDP-Glc组成。蛋白表达时,将质粒pRub002转化入大肠杆菌BL21(DE3)进行过表达。菌株培养时,使用0.5 mM IPTG在TB培养基(12 g/L胰蛋白胨、24 g/L酵母提取物、4 mL/L甘油、2.32 g/L KH2PO4和12.54 g/L K2HPO4)中于25 °C诱导表达18 h。取1 mL培养物的大肠杆菌细胞离心收集,重悬于1 mL反应混合物中,然后超声裂解。反应体系在30 °C孵育10 h。取60 μL等分样品进行HPLC分析。所有实验均做三个平行。
【数据】底物:2 mM甜菊醇;缓冲液:20 mM Tris-HCl pH 7.2;糖基供体:10 mM UDP-Glc;反应体积:1 mL;诱导剂:0.5 mM IPTG;表达温度/时间:25 °C、18 h;培养基:TB(12 g/L胰蛋白胨、24 g/L酵母提取物、4 mL/L甘油、2.32 g/L KH2PO4、12.54 g/L K2HPO4);反应温度/时间:30 °C、10 h;取样量:60 μL;检测:HPLC;平行数:3
2.6 香紫苏醇的补料分批发酵
香紫苏醇生产采用补料分批发酵策略。取20 μL重组菌株SCL172接种于25 mL含100 μg/mL阿普霉素和34 μg/mL氯霉素的LB培养基中。培养物在37 °C、250 rpm下孵育。过夜培养后,种子培养物转入100 mL LB培养基中。当OD₆₀₀达到2时,将种子培养物接种到7 L生物反应器中的3 L矿物培养基中。通气速率设为1 vvm,反应器压力维持在0.02 MPa。当溶解氧(DO)水平降至30%后,通过搅拌速度的级联控制维持在30–40%之间。pH通过自动添加25–28%氨水溶液维持在6.8,生长阶段温度控制在37 °C。初始5 g/L葡萄糖耗尽后开始补料分批,补料分批发酵期间不再添加抗生素。当OD₆₀₀达到30–40时,温度降至25 °C,加入1 mM IPTG诱导重组蛋白表达。诱导后立即向培养物中加入10%(v/v)正十二烷用于香紫苏醇的原位萃取。在72 h发酵期间收集发酵样品。基础发酵培养基含14.73 g/L K2HPO4·3H2O、4.2 g/L KH2PO4、5 g/L酵母提取物、5 g/L葡萄糖、2 g/L (NH4)2SO4、1.7 g/L柠檬酸、0.5 g/L MgSO4·7H2O和0.005 g/L维生素B1。补料分批补充培养基含25 g/L酵母提取物、400 g/L葡萄糖和12 g/L MgSO4·7H2O。
【数据】菌株:SCL172;接种量:20 μL/25 mL LB;抗生素:100 μg/mL阿普霉素、34 μg/mL氯霉素;种子培养:37 °C、250 rpm;接种OD₆₀₀:2;生物反应器:7 L含3 L矿物培养基;通气:1 vvm;压力:0.02 MPa;DO:30–40%;pH:6.8(25–28%氨水);生长温度:37 °C;诱导条件:OD₆₀₀ 30–40、25 °C、1 mM IPTG;萃取剂:10%(v/v)正十二烷;发酵时间:72 h;基础培养基:14.73 g/L K2HPO4·3H2O、4.2 g/L KH2PO4、5 g/L酵母提取物、5 g/L葡萄糖、2 g/L (NH4)2SO4、1.7 g/L柠檬酸、0.5 g/L MgSO4·7H2O、0.005 g/L维生素B1;补料培养基:25 g/L酵母提取物、400 g/L葡萄糖、12 g/L MgSO4·7H2O
2.7 甜菊醇糖苷的补料分批发酵
甜菊醇糖苷的补料分批发酵中,取20 μL重组菌株RUB074接种于25 mL含100 μg/mL阿普霉素的LB培养基中(原文此处截断,后续步骤原文未详述)。
【数据】菌株:RUB074;接种量:20 μL/25 mL LB;抗生素:100 μg/mL阿普霉素;其余参数:原文未详述
研究结果
3.1 diBTF工作流原理与二萜生物合成总体框架
为解决大肠杆菌中二萜生物合成的挑战——即前体供应不足[27]、底盘特性多样化[28]、代谢重塑复杂和酶效率差[29,30]——作者引入了diBTF工作流,将底盘-途径评估、基于GEM的代谢网络重塑和AI辅助的关键酶优化整合到单一代谢工程系统中(图1a)。实际操作中,工作流从系统性底盘-途径映射步骤开始,平行评估多种大肠杆菌背景(BL21(DE3)、MG1655(DE3)、JM109(DE3)等)与替代前体模块(天然MEP、异源MVA、异戊烯醇喂养策略和MVA偶联非氧化糖酵解(MANOG)),以鉴定能够自然地将碳和辅因子导向目标骨架的宿主-模块配对。有前景的组合随后输入GEM进行通量平衡分析和算法靶点预测,突出基因缺失、过表达和途径重定向步骤,将前体、辅因子和其他限制性资源重定向到代谢池中[31]。此外,diBTF将途径酶挖掘与结构感知的深度学习指导突变相结合,以改善前体酶、萜烯合酶和修饰酶反应(如氧化、还原、酰化和糖基化)[32],这些通常是大肠杆菌中萜类生物合成的限速步骤。diBTF平台设计为高度可扩展和可重复使用,提供高效的多步工程循环以加速高产二萜生产菌株的构建。为展示该集成工程平台的广泛适用性,作者选择香紫苏醇和甜菊醇糖苷作为两种代表性二萜进行途径构建和生产测试。选择这两种化合物基于三个关键考虑。第一,两种化合物均具有显著商业价值和市场需求:香紫苏醇是半合成Ambrox®的关键起始原料,后者是香料工业中动物源龙涎香的可持续替代品[33];甜菊醇糖苷是天然低热量甜味剂,在食品饮料领域应用日益增长[34]。第二,尽管共享共同的二萜前体GGPP,其生物合成复杂度差异显著:香紫苏醇生物合成主要涉及二萜合酶介导的环化后单步去磷酸化,而甜菊醇糖苷生产需要额外的P450介导氧化和多步糖基化(图1b)。第三,尽管在酵母等真核宿主中已有大量工程改造,但由于原核固有约束,包括前体供应不足、氧化还原辅因子平衡效率低[35,36]以及植物源酶功能表达差,其在大肠杆菌中的生产仍然有限。通过应用模块化和协调的diBTF平台,作者旨在克服这些限制并提高两种化合物的产量,从而验证平台重构不同二萜途径的能力,并支持大肠杆菌作为高价值二萜生物制造的可扩展宿主。
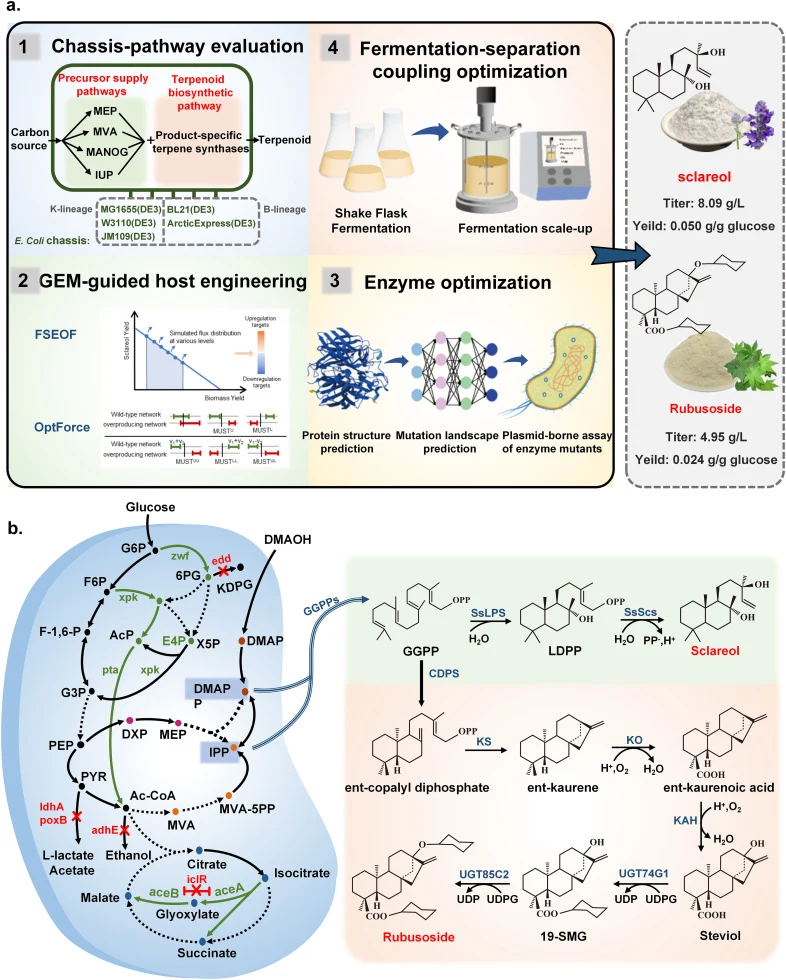
【数据】底盘:BL21(DE3)、MG1655(DE3)、JM109(DE3)等;前体模块:MEP、MVA、IUP、MANOG;目标化合物:香紫苏醇、甜菊醇糖苷;香紫苏醇途径:二萜合酶环化+单步去磷酸化;甜菊醇糖苷途径:P450氧化+多步糖基化
3.2 香紫苏醇生产的整合底盘-途径评估
实现高产异源二萜生物合成需要平衡细胞生长和产物形成。细胞生长为产物合成提供必要的生物量、前体和能量,但外源途径的引入带来代谢负担,包括资源竞争、质粒维持和中间体或产物的潜在毒性[37,38](图2a)。作者评估了两个大肠杆菌谱系用于异源表达:B谱系菌株具有快速生长和蛋白酶缺陷背景,展示增强的异源蛋白表达;相比之下,K谱系菌株提供稳定的膜和表征良好的代谢,更好地支持需要精确折叠和翻译后修饰的复杂蛋白,如细胞色素P450系统[28,39]。这些生理相互作用是非线性的且依赖上下文,健康生长不能可靠预测高产物流量,反过来,适度的生长有时可能伴随优异的生产,如果资源分配被有利地重定向。这种复杂的双向耦合使得仅凭直觉难以选择最优表达系统或前体途径。diBTF实施的系统性底盘-途径组合评估直接测量跨宿主背景和前体模块的这些权衡的综合结果,提供经验性的排序读数,揭示哪些宿主-模块组合最佳平衡了生长、辅因子供应和途径性能。为验证生物合成能力,作者首先在大肠杆菌MG1655(DE3)中构建了初步的香紫苏醇生产系统,依赖天然MEP途径和TPSs。结果显示SCL001仅产生不到3 mg/L香紫苏醇(天然MEP途径)。在pCDFDuet-1质粒中表达增强型MEP导致188.7 mg/L香紫苏醇(图2b)。此外,香紫苏醇生产高度依赖LPS和Scs的活性,据报道截短后活性更好[22,40]。评估了LPS的不同截短(∆53和∆63)和Scs(∆50)。结果表明LPS(∆53)展示最高产量206 mg/L,而Scs(∆50)对系统有害,导致产量下降35倍。为系统评估二萜生物合成中的宿主-途径兼容性,选择了五种大肠杆菌菌株:BL21(DE3)和ArcticExpress(DE3)代表B谱系,JM109(DE3)、W3110(DE3)和MG1655(DE3)代表K谱系。两个谱系展示不同的基因型,如图2c所示。此初始菌株选择作为概念验证验证,使用这些可获取、表征良好的遗传背景为未来研究建立了清晰的基线和可重复的参考框架。采用了四种异戊二烯前体途径:内源MEP途径[41]、异源MVA途径[26]、异戊烯醇利用途径(IUP)[23],以及通过Xpk和Pta与非氧化糖酵解整合的优化MVA变体[42],命名为MANOG。这四种途径的末端反应如图2d所示。使用这些底盘和前体途径,作者构建了5底盘×4途径的组合评估试验。每个底盘转化一对兼容质粒,一个编码GGPP合酶(GGPPS)、赖百当二烯醇二磷酸合酶(LPS)、香紫苏醇合酶(Scs)盒,另一个携带所选前体模块。香紫苏醇积累在不同底盘和前体模块间差异显著。结果显示JM109(DE3)在MVA条件下产生最高的607.07 mg/L。对于IUP和MEP(图2e),MG1655(DE3)展示高于其他底盘的最高产量,滴度分别为77.07 mg/L和206.03 mg/L。当引入MANOG时,携带MANOG途径的BL21(DE3)实现最高的香紫苏醇滴度676.48 mg/L,比第二最佳组合JM109(DE3)加MVA高约11.4%,比野生型MG1655(DE3)的基线MEP配置高200倍以上(图S1)。值得注意的是,尽管JM109(DE3)在MVA条件下显示高于BL21(DE3)的产量,进一步与NOG组合并未改善生物生产性能,这可能是由于不同底盘菌株的内在差异。总体而言,对于不同底盘,B系列菌株表现优于K系列菌株。对于不同途径,大多数菌株表现出相似的趋势(原文此处截断)。
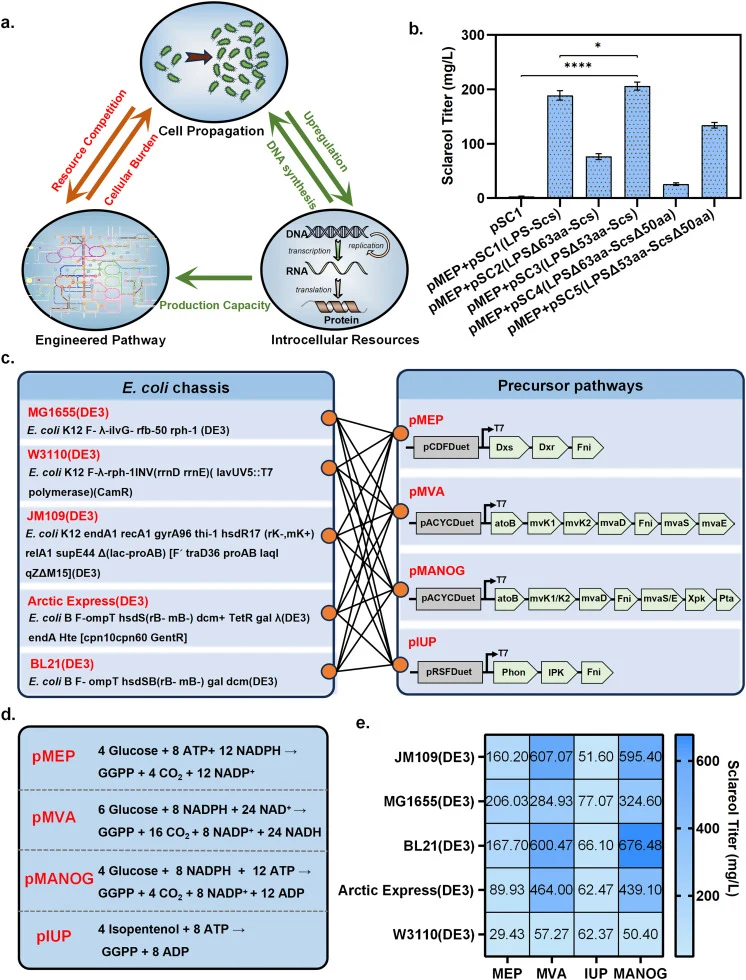
【数据】基础菌株SCL001(MG1655(DE3)+天然MEP):<3 mg/L;增强MEP:188.7 mg/L;LPS(∆53):206 mg/L;Scs(∆50):产量下降35倍;JM109(DE3)+MVA:607.07 mg/L;MG1655(DE3)+IUP:77.07 mg/L;MG1655(DE3)+MEP:206.03 mg/L;BL21(DE3)+MANOG:676.48 mg/L(比第二最佳高11.4%,比基线高200倍以上)
3.3 基于GEM的代谢网络重塑
(原文该部分内容未在节选中完整呈现,以下为图3相关内容的翻译)
图3展示了途径设计算法的示意图:FSEOF和OptForce(图3a)、算法预测的基因修饰靶点结果(图3b)、香紫苏醇生产菌株的途径设计(图3c)、已鉴定工程靶点在不同代谢途径中的分布(图3d)以及香紫苏醇产量(图3e)。
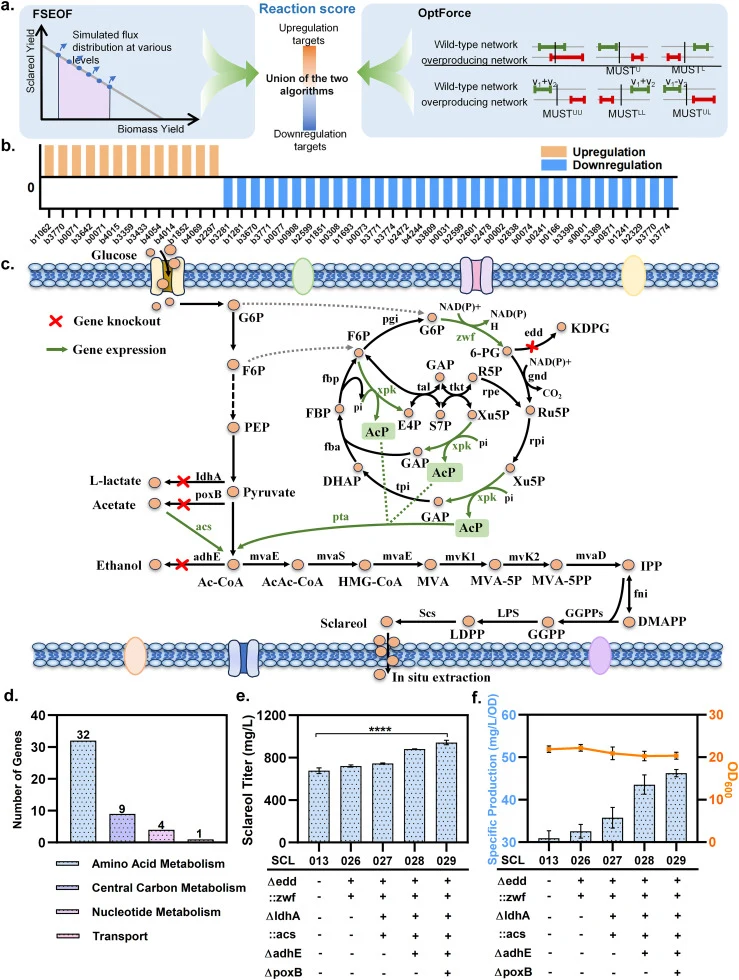
【数据】算法:FSEOF、OptForce;应用:基因修饰靶点预测、途径设计;具体数值:原文未详述
3.4 途径酶优化
(原文该部分内容未在节选中完整呈现,以下为图4相关内容的翻译)
图4展示了途径酶修饰流程示意图(图4a)、菌株SCL013和SCL029中中间体甲羟戊酸(MVA)的积累(图4b)、不同来源MVK1菌株的香紫苏醇产量(图4c)、MVK2突变菌株的香紫苏醇产量(图4d)以及不同菌株的香紫苏醇产量(图4e)。
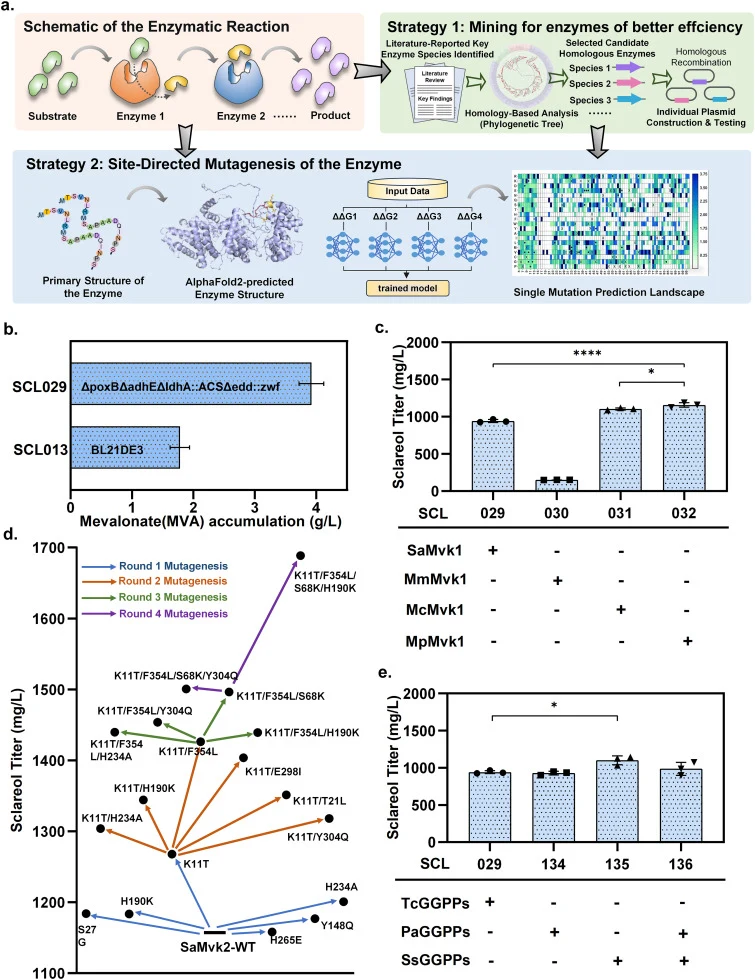
【数据】菌株:SCL013、SCL029;中间体:MVA;酶:MVK1、MVK2;具体数值:原文未详述
3.5 组合优化与补料分批发酵
(原文该部分内容未在节选中完整呈现,以下为图5相关内容的翻译)
图5展示了MVK1变体、MVK2突变体和GGPPS变体组合对香紫苏醇生产的影响(图5a)、突变SsLPS和SsScs菌株的香紫苏醇产量(图5b)、菌株SCL172在补料分批发酵中的细胞生长(蓝线)和葡萄糖消耗(橙线)(图5c)以及培养物中的香紫苏醇滴度(图5d)。
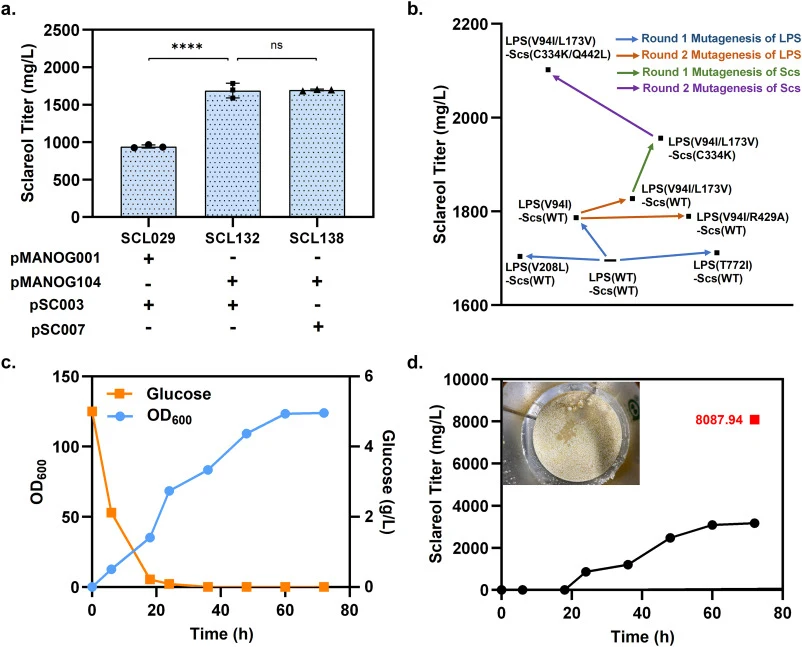
【数据】菌株:SCL172;发酵方式:补料分批;监测指标:细胞生长、葡萄糖消耗、香紫苏醇滴度;具体数值:原文未详述
3.6 甜菊醇糖苷生产
(原文该部分内容未在节选中完整呈现,以下为图6相关内容的翻译)
图6展示了五种底盘与四种前体途径组合的菌株的甜菊醇糖苷生产测定(图6a)、携带糖基转移酶质粒的载体测试(图6b)、甜菊醇糖苷生产菌株的途径设计示意图(图6c)以及工程化JM109(DE3)菌株的甜菊醇糖苷生产:糖酵解途径(图6d)。
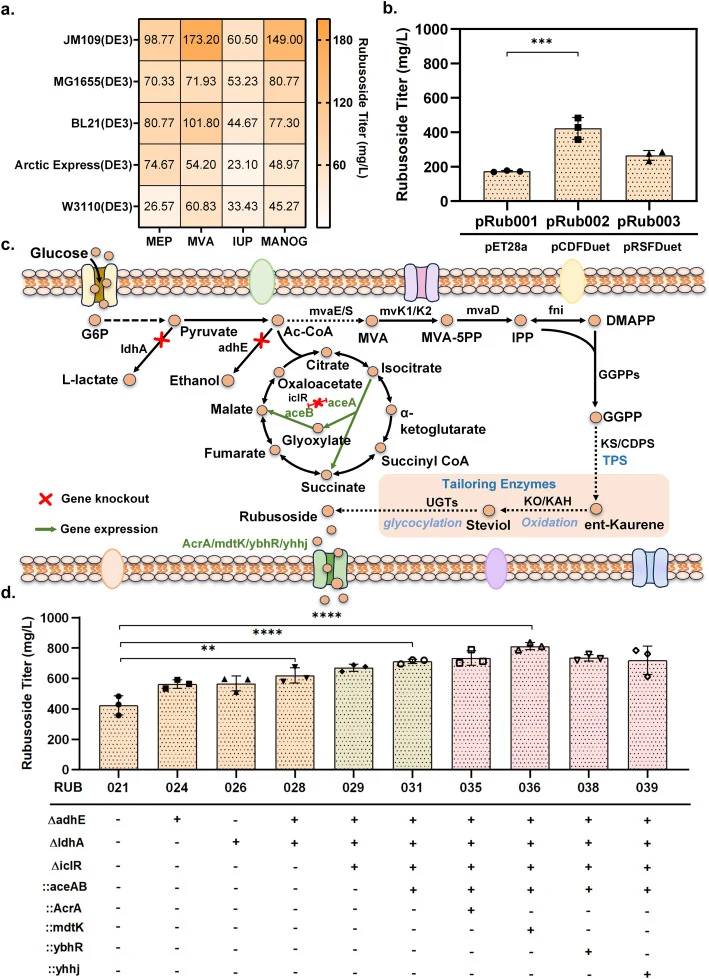
【数据】底盘:5种;前体途径:4种;工程菌株:JM109(DE3);具体数值:原文未详述
3.7 甜菊醇糖苷途径优化与发酵
(原文该部分内容未在节选中完整呈现,以下为图7相关内容的翻译)
图7展示了菌株RUB036中甜菊醇、贝壳杉烯酸和甲羟戊酸关键中间体的积累(图7a)、KAH突变菌株的甜菊醇糖苷产量(图7b)、UGT74G1和UGT85C2突变菌株的甜菊醇糖苷产量(图7c)以及菌株RUB074在补料分批发酵中的细胞生长(蓝线)和葡萄糖消耗(橙线)(图7d)。
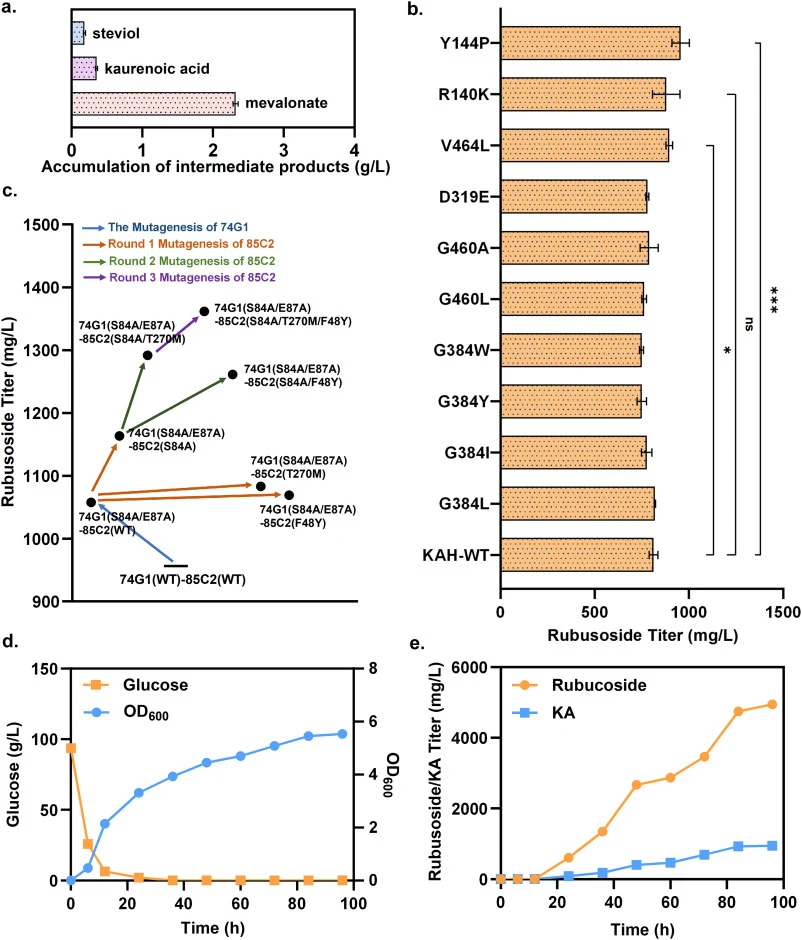
【数据】菌株:RUB036、RUB074;中间体:甜菊醇、贝壳杉烯酸、甲羟戊酸;酶:KAH、UGT74G1、UGT85C2;发酵方式:补料分批;具体数值:原文未详述
讨论与解读
本研究展示了diBTF——一个基于大肠杆菌的模块化二萜生物制造框架,包括底盘评估、途径模块化、GEM指导的宿主工程和酶优化。通过系统整合这些策略,diBTF克服了前体失衡、宿主特异性限制和途径复杂性等瓶颈,使大肠杆菌达到该宿主中创纪录的二萜滴度。在该平台上,香紫苏醇生产菌株在7 L生物反应器中达到8.09 g/L、0.112 g/L/h,创大肠杆菌中报道的最高滴度和迄今最高微生物生产率;甜菊醇糖苷生产菌株达到4.95 g/L,产率0.024 g/g葡萄糖,生产率0.052 g/L/h,超越所有先前基准。这些结果证明了基于大肠杆菌的二萜生产的经济竞争力——更短的发酵周期、更高的体积产出以及与成熟原核生物工艺的兼容性。diBTF平台展示了在更具成本效益的原核宿主中系统性自下而上构建如何克服复杂植物源化合物生产的长期障碍,推动植物源化合物的生物制造走向可扩展、可持续的生产,彰显了合成生物学连接天然产物复杂性与工业适用性的能力。
编译者解读:diBTF的核心价值在于将"试错式"代谢工程转变为"决策规则驱动"的系统流程——底盘×途径矩阵评估以极低成本锁定最优组合,GEM算法预测替代了盲目过表达,深度学习指导的酶突变则精准打击限速步骤。香紫苏醇8.09 g/L的成绩证明大肠杆菌完全有能力挑战酵母在二萜生产中的主导地位,且发酵周期更短、工艺更成熟。局限在于当前平台仍依赖多质粒共表达体系,质粒稳定性与抗生素使用在工业规模下是隐患;此外,甜菊醇糖苷的产量(4.95 g/L)虽创纪录,但产率(0.024 g/g葡萄糖)仍有较大提升空间,碳流走向糖基化供体UDP-Glc的效率是下一个瓶颈。
参考来源
期刊:Chemical Engineering Journal, 2026
DOI: 10.1016/j.cej.2026.180407
DOI: 10.1016/j.cej.2026.180407