来源:微生物发酵氧传递系数下降搅拌转速补偿(DNA Lab Space 实验教程)| 编译:DNA Lab Space
发酵中后期DO突然往下掉,kLa从120 h⁻¹跌到60 h⁻¹,你第一反应是提转速:200 rpm拉到350 rpm,DO只回来5%。电机温度上来了,泡沫也起来了。问题不在“转速不够”,而在氧传递链条上某个环节先断了。本文按传感器、供气、搅拌、物料、设备几何、放大疑难六个层面拆解,给你能直接上手的判断、验证和补偿动作。
第一步:快速排查低级错误
- DO电极没校准或膜破了:现象是DO值无故偏高/偏低且响应慢;用饱和亚硫酸钠法校零点、空气校100%,换膜后37°C极化30分钟再装罐。
- 搅拌桨装反或转向错:桨叶“推”而不是“吸”,气泡只打旋不分散;直接看轴端箭头,点动确认转向,径向流桨凹面朝下、轴向流桨叶片迎液面。
- 通气流量单位搞混:把1.0 vvm当成1.0 L/min,10 L罐只给1 L/min;按装液量7 L算,1 vvm就是7 L/min,流量计标定后贴标签。
- 装液量过高或挡板缺失:70%装液量以上、4块挡板缺一块,搅拌功率直接掉;降到60%–70%,补挡板,检查罐盖密封圈和取样口漏气。
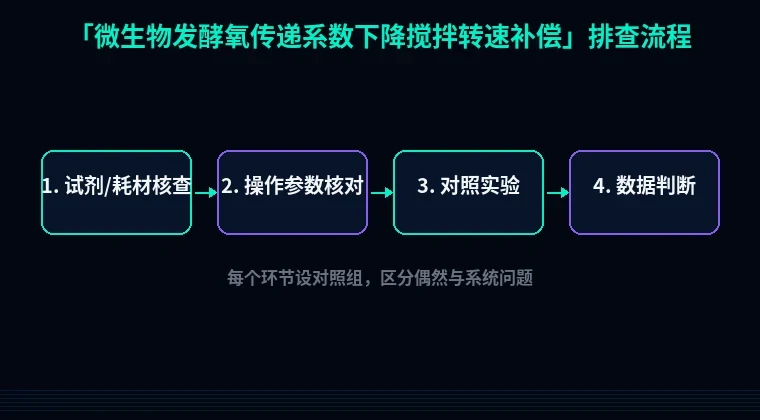
第二步:分维度系统排查
1. 传感器与kLa算法失真
现象:DO曲线滞后3–5分钟,尾气O₂和DO对不上,kLa算出来忽高忽低。原理:kLa常用动态法或尾气平衡算,电极响应时间大于15秒就会把真实下降抹平。解决:换响应<10秒的电极,校准后做一次氮气驱氧,记录DO从100%降到30%的时间;尾气分析仪先通标准气,O₂和CO₂零点/量程各校一次。验证:同一罐同一转速下连续测两次kLa,偏差应<10%,否则先别怪搅拌。
2. 供气侧实际供氧不足
现象:提高转速后DO略升但尾气O₂仍低于18%,罐压表在0.02 MPa以下。原理:OTR= kLa×(C−C),C由罐压和氧分压决定,通气量不够时提转速只是把有限氧气打碎。解决:通气从0.5 vvm提到1.0–1.5 vvm,罐压维持0.05 MPa,检查空气过滤器压差是否>0.05 MPa、管路是否折弯。验证:关搅拌只通气,看DO能否从30%升到60%以上;不能就是供气侧问题。
3. 搅拌功率输入不够或发生气泛
现象:转速加到350 rpm,电流不升反降,液面翻涌但气泡大而少。原理:气泛时桨叶被气穴包围,功率准数骤降,提转速变成“空转”。解决:先降通气到0.5 vvm,把转速提到能压住气穴的临界点,再逐步恢复通气;检查桨径/罐径比是否在0.33–0.5,双层桨间距按1倍桨径装。验证:记录不同转速下的搅拌电流,功率应随转速三次方上升;电流不升就是气泛或电机皮带打滑。
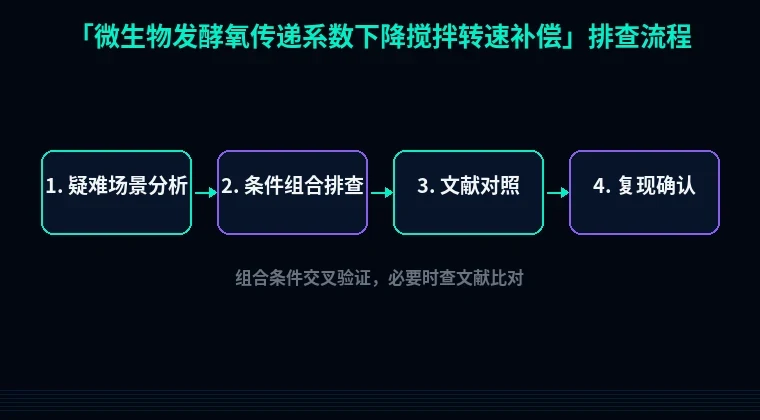
4. 发酵液变黏、菌体形态改变
现象:菌浓OD₆₀₀从20升到60后,kLa一周内掉40%,泡沫变黏。原理:丝状菌或高浓度菌液使表观黏度升高,气泡聚并加快,比表面积下降。解决:补料速率从15 g/L/h降到8 g/L/h,避免残糖>5 g/L;消泡剂用聚醚类,总浓度控制在0.05%–0.1%,别一次猛加。验证:取发酵液测黏度,25°C下超过50 mPa·s就要降补料;镜检看菌丝是否成团。
5. 设备几何与装液量不匹配
现象:小试kLa 150 h⁻¹,放大到50 L只剩50 h⁻¹,提转速到400 rpm电机过载。原理:单位体积功率密度下降,挡板、蛇管、罐壁效应改变气泡停留时间。解决:装液量降到65%,挡板宽度取罐径1/10,搅拌桨离底0.25–0.3倍桨径;按0.5–1.0 kW/m³校功率密度。验证:做冷模水实验,测不同转速下气泡尺寸和混合时间,混合时间应<30秒。
第三步:进阶疑难问题
气泛临界点被误判成“转速不够”。表现是转速一过280 rpm电流反而掉,DO不升。别继续拉转速。先降通气看电流是否恢复,再用阶梯升速找到功率回升点,那个点才是临界转速。补偿时优先加罐压到0.05–0.08 MPa,比硬提转速省电机。
丝状菌发酵里,提转速会把kLa“补”出剪切伤。菌丝长度从50 μm碎到20 μm,短期内kLa升了,48小时后菌体自溶、DO又掉。解决是控制tip speed<2 m/s,用低剪切轴向流桨,补料维持比生长速率0.05–0.1 h⁻¹。验证看菌丝碎片比例和胞外蛋白,别只看DO。
消泡剂过量造成“假性kLa下降”。硅油加到0.3%以上,气泡聚并,kLa掉一半,DO电极还滞后。先停消泡剂2小时,用机械消泡或提高罐压,观察kLa是否回升;需要加时用蠕动泵按0.01%/h连续流加。
避坑总结+实操建议
三条核心结论:第一,kLa下降先分真假,电极和尾气数据对不上就别调搅拌。第二,提转速只解决气泡分散,不解决供气、黏度和气泛,补偿顺序是罐压→通气→转速。第三,每次改转速后等3–5分钟稳定再记录,别拿瞬态DO做判断。
两个日常好习惯:每次批前做一次冷模水实验,记下转速-功率曲线;每批中后期取2 mL发酵液测黏度和镜检,提前预判kLa拐点。
做菌株构建时,先把表达负担降下来:用站内密码子优化调整稀有密码子,用蛋白可溶性优化减少包涵体,高耗氧的过表达会直接推高OUR。敲除或过表达片段前,用引物设计工具检查二级结构和二聚体,别让引物二聚体拖慢整个构建周期。发酵前的分子设计稳了,罐上的kLa排查才不会被“菌本身就不对”带偏。