来源:细胞转染凋亡内体逃逸增强肽(DNA Lab Space 实验教程)| 编译:DNA Lab Space
做凋亡肽递送的人大多踩过这个坑:显微镜下荧光明明进了细胞,Annexin V阳性率却趴在地上不动;换了个pH敏感肽,Calcein释放实验更是纹丝不动。问题往往不在肽设计,而在转染链条上某个环节悄悄失效了。这篇教程按"转染前—复合物—摄取—逃逸—检测"的顺序拆解排查动作,每个原因都给出判断、验证和解决方案,参数按24孔板体系给全,你可以直接对着做。
第一步:先看这四个低级错误
别急着怀疑肽设计,先把手边这四件事核对一遍。
1. 多肽没除盐就冻干称重。三氟乙酸盐残留会让肽在培养基里析出成絮状,直接看冻干粉溶解后是否澄清,有絮状就用0.22 μm滤膜过滤后再定量。
2. 细胞铺得太密。24孔板每孔5×10⁴个细胞、转染时融合度60–70%,铺到90%以上复合物根本贴不上细胞,重铺一次比优化比例省事。
3. 质粒和肽加反了顺序。正确顺序是Opti-MEM预稀释肽(25 μL体系),再滴加质粒,室温静置15 min形成复合物;反过来肽会把DNA裹死。
4. 转染4–6 h没换液。含血清完全培养基里转染超过8 h,毒性叠加,凋亡背景升高,把真实信号吃掉。
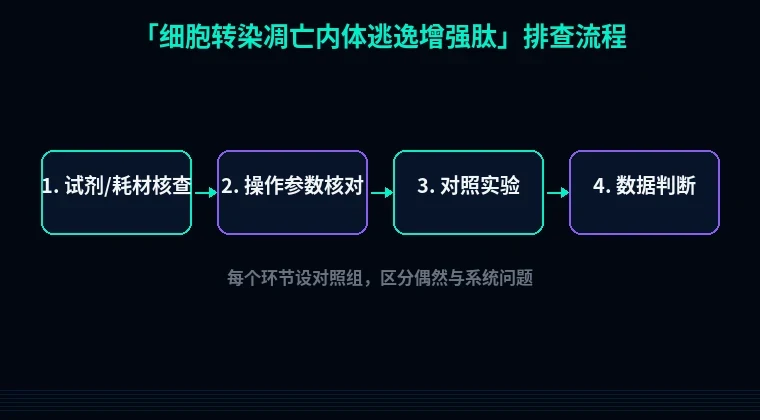
第二步:分维度系统排查
A. 转染前:肽本身有没有问题
1. 序列的pH响应窗口跑偏
现象:HA2类肽在细胞上几乎不引起Calcein释放,但阳性对照氯喹(25–50 μM)释放明显。
原理:HA2的融合域要在pH 5.0–6.0才从无规卷曲转成α螺旋,如果内体成熟慢或肽pKa偏高,它到不了这个窗口。
解决步骤:先用100 nM巴弗洛霉素A1预处理细胞1 h把内体酸化压住,再做同一批转染做对照;同时把检测时间从6 h延后到8–10 h,让内体自然成熟。
验证方法:用LysoTracker Red DND-99(50 nM,37 °C孵育30 min)标记,活细胞共聚焦看肽荧光与溶酶体探针的重叠系数,48 h内重叠率从0.7降到0.3才说明逃逸在发生。
2. 荧光标签被酸性淬灭
现象:FITC标记的肽进细胞后荧光越来越暗,误判为"没进去"。
原理:FITC在pH<6时荧光强度可掉一半以上,内体腔正好是酸性。
解决步骤:换pH不敏感的标签,如Cy5或TAMRA;或改用抗标签抗体做免疫荧光定量。
验证方法:同一批细胞同时做活细胞成像和固定后染色,两套数据差2倍以上基本就是淬灭。
B. 复合物:比例和孵育条件
3. 肽与DNA结合过紧,把肽"锁"在复合物里
现象:更换N/P比(5、10、20)后凋亡率没有梯度变化,一直在10%左右。
原理:阳离子肽与质粒磷酸骨架静电结合太强,进入内体后肽仍裹在DNA上,膜活性域被屏蔽。
解决步骤:在复合物孵育后额外补加游离肽(终浓度5–10 μM)作为"逃逸辅助";或改用可断裂的二硫键交联肽。质粒用量控制在每孔0.5–1 μg,Lipo3000 1.5 μL、P3000 2 μL,各稀释于25 μL Opti-MEM。
验证方法:做琼脂糖凝胶阻滞实验,肽/DNA质量比从0到5梯度,看DNA条带完全滞留的临界点,复合物按临界点附近配。
4. 血清把复合物提前拆了
现象:无血清转染有信号,一加10% FBS就归零。
原理:血清白蛋白和脂蛋白竞争结合阳离子肽。
解决步骤:转染全程用Opti-MEM,孵育4–6 h后再换回完全培养基;确需含血清时改用脂质体包被。
验证方法:同批样本做无血清/含血清平行组,差异>3倍就固定用无血清流程。
C. 逃逸与检测:时间点和方法
5. 检测时间点错位
现象:24 h检测Annexin V阴性,48 h才出现阳性。
原理:内体逃逸发生在4–8 h,凋亡执行需要额外12–24 h,caspase-3/7激活早于PS外翻。
解决步骤:设4、8、24、48 h四个时间点;逃逸用Calcein-AM(1 μM,37 °C 30 min)自淬灭释放法,凋亡用Annexin V-FITC/PI(1×10⁵细胞加100 μL binding buffer、5 μL Annexin V、5 μL PI,室温避光15 min)流式检测。
验证方法:Caspase-Glo 3/7试剂37 °C孵育30–60 min读化学发光,信号应比对照高3倍以上。
6. 固定透膜制造"假逃逸"
现象:固定后共聚焦看到肽弥散在胞质,活细胞却是点状。
原理:甲醇或Triton透膜会把内体膜打穿,肽重新分布。
解决步骤:定量逃逸一律用活细胞成像,或改用膜不通透的染料做对照。
验证方法:同视野先活细胞拍一次,固定后再拍一次,位置发生明显弥散就说明固定造成了假象。
第三步:进阶疑难
7. pH依赖性的"假阴性"
你想证明肽是pH响应型,结果巴弗洛霉素A1组和对照没差别——不一定是肽坏了,可能是内体酸化本来就没发生。加NH₄Cl(20 mM)作为第二种中和对照,两套抑制剂都无效时才回头查序列。另外Galectin-9招募实验更直接:内体膜一旦破损,Galectin-9在30 min内聚集到损伤点,免疫荧光斑点计数比Calcein更灵敏。
8. Calcein自淬灭实验本身会骗人
Calcein-AM进细胞后被酯酶切成Calcein,高浓度时自淬灭,只有稀释到胞质里才发亮。如果细胞酯酶活性低(某些悬浮细胞),会出现"没逃逸也发亮"的假阳性。用Calcein free acid做阴性对照,两者释放率差值才是真实逃逸效率。
9. 逃逸后胞质降解
肽逃逸成功但凋亡诱导域被胞质蛋白酶切掉。现象是Western blot里全长肽条带弱、降解片段多。解决:在肽两端加D-氨基酸或做环化,检测时用抗N端和抗C端两个抗体夹心确认完整性。
避坑总结+实操建议
三条核心结论:第一,先排除细胞密度和换液时机,这两项占失败原因的一半以上;第二,逃逸定量必须活细胞做,固定染色的结论只能当参考;第三,pH敏感肽一定要配巴弗洛霉素A1和NH₄Cl双对照,否则无法判断是肽失效还是内体没酸化。
两个日常好习惯:每次转染留一孔只转空载体、一孔只加肽不加DNA,作为背景对照;新批次肽到货先跑一次凝胶阻滞定临界比例,别直接用上次的参数。
需要做肽的重组表达或融合构建?
如果你的逃逸肽要从化学合成转到重组表达,或者要做凋亡域-逃逸肽的融合蛋白,站内的密码子优化工具能按大肠杆菌或哺乳动物密码子偏好重编码,减少稀有密码子带来的翻译停顿;蛋白可溶性优化模块可以先跑一遍序列,把容易形成包涵体的疏水片段标出来再决定是否加SUMO或GST标签;上游的引物设计工具支持融合片段的overlap引物自动生成,省掉手动拼接的麻烦。转染前把构建这一步做扎实,后面排查能少走一半弯路。