来源:蛋白分泌表达低信号肽(DNA Lab Space 实验教程)| 编译:DNA Lab Space
做分泌表达,最让人抓狂的不是完全不表达,是"好像表达了,又好像没有"。上清里跑Western能看到淡淡一条带,培养基活性检测却低得可怜。你怀疑构建、怀疑宿主、怀疑培养条件,来回折腾两周,最后发现是信号肽序列在克隆时移码了。这篇教程按"低级错误→表达流程系统排查→疑难杂症"三段走,覆盖信号肽选择、周质/胞外转运、培养条件、检测方法等关键环节,帮你把假阴性、低效率、无效分泌三类情况一次分辨清楚。
第一步:先排除低级错误,别急着怀疑设计
新手最容易在构建层面翻车,花5分钟先查这几项。
1. 信号肽与目的基因读框错误。克隆时酶切位点带进了额外碱基,信号肽最后一位和成熟蛋白第一位之间多了1-2个碱基,整个下游移码。解决:把构建全测序,翻译成氨基酸看读框是否连续。
2. 信号肽未切除或切除位点错。信号肽酶识别位点(如AXA↓)附近氨基酸被改动,前体蛋白无法加工。解决:比对原生信号肽的-1、-3位氨基酸,尽量保留Ala、Ser这类小侧链残基。
3. 标签位置选错。His标签放在信号肽和成熟蛋白之间,信号肽被切除时标签跟着走,上清里自然检测不到。解决:把标签放在成熟蛋白C端,或N端但要留出信号肽酶切位点。
4. 质粒拷贝数与启动子不匹配。T7强启动子配高拷贝pET,本底表达压不住,包涵体比例高,可溶分泌量反而低。解决:换pET-22b、pET-39b这类带pelB或DsbA信号肽的中低拷贝载体试试。
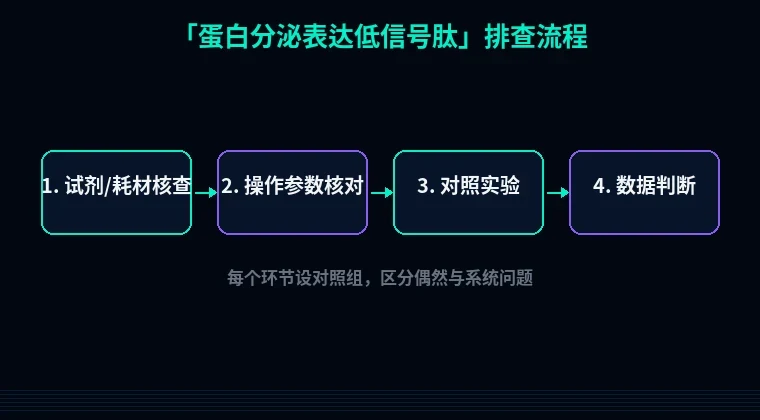
第二步:按表达流程分维度系统排查
分泌表达走的是"合成→跨膜转运→折叠加工→释放到胞外"这条链,哪一环卡住,上清信号都会弱。按顺序查。
1. 信号肽本身选得不合适
现象:胞内前体蛋白大量积累,上清几乎无目标蛋白,周质提取物里有明显前体条带。
原理:不同信号肽的疏水核心长度和转运途径不一样。OmpA走Sec途径,PelB偏Sec,DsbA依赖氧化环境,MBP可自分泌到胞外。大肠杆菌内膜转运效率对疏水段长度敏感,通常18-25个疏水残基最稳。
解决步骤:①先做小量平行筛选,把同一目的基因分别接到pelB、OmpA、DsbA三个信号肽下,BL21(DE3)中20°C诱导。②每个组合取上清、周质、全菌三份样跑SDS-PAGE。③比较前体与成熟蛋白条带比例,选成熟条带占比最高的那个。④若三个都不行,换枯草芽孢杆菌或毕赤酵母宿主。
验证方法:用抗His抗体Western能同时看到前体和成熟两条带,差1-2 kDa;质谱确认N端序列是否切除干净。
2. 转运途径被堵,前体堆积
现象:诱导后2小时内前体大量出现,4小时后菌体生长明显受抑制,上清目标蛋白不涨。
原理:Sec途径转运需要膜电位和ATP,高浓度IPTG强诱导会让前体合成速度超过转运能力,前体堵在内膜上形成致死效应。培养温度高、诱导OD过高都会加剧。
解决步骤:①把IPTG降到0.1-0.5 mM,诱导OD600从0.6起步,别等到1.0。②温度降到16-25°C,诱导12-16小时。③若仍堵塞,加0.5 M山梨醇或2.5 mM甜菜碱做渗透保护。④严重时改用组成型启动子低水平表达。
验证方法:测诱导后1、2、4、6小时的菌体OD和上清活性;做膜组分分离,看前体是否富集在内膜。
3. 周质空间折叠失败,被蛋白酶降解
现象:周质提取物里前体和成熟蛋白都很淡,上清更低,全菌裂解液检测也少。
原理:周质是氧化环境,二硫键形成依赖Dsb系统。目的蛋白含多个二硫键、宿主又缺DsbC过表达时,未折叠蛋白会被DegP、OmpT降解。带多个游离Cys的蛋白尤其容易出问题。
解决步骤:①宿主换成Origami 2或SHuffle,这两种菌的胞质呈氧化态,能促进二硫键形成。②共表达DsbC和DsbA,或直接换pET-39b(带DsbA信号肽和His标签)。③培养温度降至16°C,诱导16小时以上。④培养基加1 mM DTT不行——周质氧化环境会被破坏;改用0.1 mM CuCl₂辅助氧化。
验证方法:非还原SDS-PAGE看二硫键异构体;加蛋白酶抑制剂PMSF后重做,看条带是否变深。
4. 成熟蛋白被胞外蛋白酶降解
现象:上清活性检测随时间先升后降;Western能看到多条小分子降解带。
原理:大肠杆菌外膜有OmpT、OmpP等蛋白酶,分泌到胞外的目的蛋白暴露在培养基中,被降解的概率比胞内高。培养基里缺氨基酸、培养时间过长都会放大这个问题。
解决步骤:①宿主换BL21(DE3)的ompT缺失株(如BL21(DE3) pLysS本身不带,但可用Lon/OmpT双缺株)。②诱导后8-12小时收样,别等到过夜18小时。③上清加1 mM PMSF或Complete蛋白酶抑制剂。④培养基用TB或2×YT,比LB缓冲能力强。
验证方法:同一批样品取0、4、8、12、24小时五个时间点跑胶,看目标带什么时候开始变淡。
5. 检测方法灵敏度不够
现象:活性检测读数为阴性,但浓缩上清后Western能出带。
原理:分泌表达量常低于1 mg/L,直接测活性或直接跑胶容易漏检。信号肽还可能影响蛋白N端表位,抗体识别下降。
解决步骤:①上清用10 kDa超滤管浓缩10-20倍再检测。②Western用C端标签抗体,别用N端。③活性检测前先做梯度稀释验证线性范围。④改用更灵敏的荧光底物或ELISA。
验证方法:浓缩前后做回收率对照,确认浓缩没损失目标蛋白。
6. 培养条件与诱导时机不对
现象:不同批次差异大,有时候能出,有时候完全阴性。
原理:分泌表达对溶氧和pH敏感。摇瓶装液量超过1/5体积,溶氧不足,转运效率下降;葡萄糖作碳源会产生乙酸,抑制生长和表达。
解决步骤:①250 mL摇瓶装液量控制在50 mL以内。②碳源用甘油0.5%代替葡萄糖。③诱导时机固定OD600=0.6-0.8。④培养基pH用磷酸缓冲液稳定在7.0。⑤收样时间固定在诱导后12小时。
验证方法:每批平行做三个摇瓶,记录OD、pH、上清活性,找出波动来源。
第三步:进阶疑难问题
情况一:信号肽正确、转运正常,但成熟蛋白被"卡"在膜上。 这是膜蛋白型分泌的典型问题。用碳酸钠提取法(0.1 M Na₂CO₃,4°C,30分钟)区分外周结合和整合膜蛋白,若目标蛋白出现在膜组分,说明疏水段太强,考虑截短C端疏水区或换哺乳动物表达系统。
情况二:周质表达成功但没有释放到胞外。 大肠杆菌没有主动分泌到培养基的通用机制。可以加0.5% Triton X-100或氯仿做温和渗透处理,或者用培养16小时后自然渗漏得到部分胞外蛋白。更彻底的办法是换枯草芽孢杆菌,它有完整的Sec分泌途径。
情况三:信号肽序列被预测为强分泌但实验无效。 计算工具只看疏水性和电荷,不看你目的蛋白的折叠速度。蛋白折叠太快,转运通道来不及接收,前体就会堆积。把诱导温度降到16°C、IPTG降到0.05 mM,给转运留时间。
避坑总结+实操建议
三条核心结论:第一,分泌表达失败先从构建测序查起,移码和标签位置错误占初期问题的六成以上。第二,前体堆积和前体消失是两种完全不同的故障,前者查转运,后者查降解。第三,信号肽不是越强越好,与宿主转运能力、目的蛋白折叠速度匹配才是关键。
两个日常习惯:①每次做分泌表达保留诱导前、诱导后4小时、12小时、24小时四个时间点样品,出现问题时不用重做实验。②建立自己的"信号肽-宿主-条件"小矩阵记录表,每做一次记一次,三个月后你就有自己的经验库了。
需要做信号肽筛选、密码子优化或蛋白可溶性预测时,站内工具可以帮上忙:引物设计工具先确认构建读框;密码子优化工具按宿主偏好调整序列,避免稀有密码子拖慢转运;蛋白可溶性优化工具能提前评估你的目的蛋白在周质环境里的折叠风险,少走几轮试错。工具只是起点,关键还是把每一步的样品留好,问题自然查得清。